ウイルス複製
ウイルス複製 (英: viral replication)は、標的宿主細胞における感染過程での生物学的ウイルスの形成である。ウイルスは、ウイルス複製が起こる前に、まず細胞内に侵入する必要がある。ウイルスは、そのゲノムの豊富なコピーを生成し、これらのコピーをパッケージ化することで、新しい宿主に感染し続ける。ウイルス間の複製は大きく異なり、ウイルスに関与する遺伝子の種類に依存する。ほとんどのDNAウイルスは核内で集合するのに対し、ほとんどのRNAウイルスは細胞質内でみで発生する[1]。
ウイルスの生成/複製
ウイルスは生きた細胞内でのみ増殖する。宿主細胞は、ウイルスのタンパク質と核酸の合成に必要なエネルギーおよび合成機構ならびに低分子量前駆体を提供しなければならない[2]。
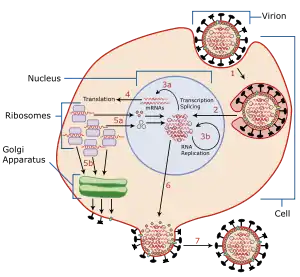
ウイルスの複製は、次の7つの段階で行われる。
付着
これはウイルス複製の第一段階である。ウイルスは宿主細胞の細胞膜に付着する。次に、宿主にそのDNAまたはRNAを注入して感染を開始する。動物細胞では、これらのウイルスは、動物細胞の細胞膜とウイルスの融合およびウイルスエンベロープの融合を介して動作するエンドサイトーシスのプロセスを介して細胞に侵入し、植物細胞では、ウイルスのピンチ(摘み取り、英: pinching)で動作するピノサイトーシス(飲作用)のプロセスを介して侵入する。
転写/mRNA生成
一部のRNAウイルスでは、感染したRNAはメッセンジャーRNA (mRNA) を生成する。これは、ゲノムのタンパク質産物への翻訳である。マイナス鎖RNAとDNAを持つ他のウイルスでは、ウイルスは転写の後に翻訳によって生成される。
mRNAは、ウイルス成分を作るように宿主細胞に指示するために使用される。ウイルスは、既存の細胞構造を利用して自己複製を行う。
ウイルス成分の合成
次の成分は、宿主の既存の小器官を利用してウイルスによって製造される。
ボルティモア分類
ウイルスは7種類の遺伝子に分類され、それぞれにはウイルスファミリーがあり、異なる複製戦略を持っている。ノーベル賞を受賞した生物学者デビッド・ボルティモアは、ボルティモア分類システムと呼ばれるシステムを考案し、独自の複製戦略に基づいて異なるウイルスを分類した。このシステムに基づく7つの異なる複製戦略がある (ボルティモアクラスI、II、III、IV、V、VI、VII)。次に、7つのクラスのウイルスを簡単かつ一般的に示す[3]。
クラス1:2本鎖DNAウイルス
このタイプのウイルスは通常、複製する前に宿主の核に侵入しなければならない。これらのウイルスの中には、ゲノムを複製するために宿主細胞のポリメラーゼを必要とするものもあれば、アデノウイルスまたはヘルペスウイルスのように、それ自身の複製因子を符号化するものもある。ただし、どちらの場合でも、ウイルスゲノムの複製は、DNA複製を許容する細胞状態 (したがって細胞周期) に大きく依存する。ウイルスは、細胞を強制的に細胞分裂させるように誘導でき、それが細胞の形質転換、そして最終的には癌(がん)につながる可能性がある。この分類に含まれるファミリーの例は、アデノウイルス科がある。
クラス1のウイルスファミリーの中で、核内で複製しない、よく研究されている例が1つだけある。これは、脊椎動物に感染する高病原性ウイルスからなるポックスウイルス科である。
クラス2:1本鎖DNAウイルス
このカテゴリーに分類されるウイルスには、十分に研究されていないが、脊椎動物に非常に関連しているウイルスが含まれる。2つの例として、サーコウイルス科とパルボウイルス科がある。それらは核内で複製し、複製中に2本鎖DNA中間体を形成する。この分類には、トルクテノウイルス(TTV)と呼ばれるヒトアネロウイルスが含まれており、ほぼすべてのヒトに見られ、ほぼすべての主要臓器で無症状に感染する。
クラス3:2本鎖RNAウイルス
2本鎖RNAウイルスは、RNAゲノムを持つほとんどのウイルスと同様に、DNAゲノムを持つウイルスのように複製を宿主ポリメラーゼに依存しない。2本鎖RNAウイルスは、他のクラスほどよく研究されていない。このクラスには、レオウイルス科とビルナウイルス科の2つの主要なファミリーが含まれている。複製はモノシストロン性であり、個々の分割されたゲノムが含まれる。つまり、より複雑な翻訳を示す他のウイルスとは異なり、各遺伝子は1つのタンパク質のみを符号化する。
クラス4および5:1本鎖RNAウイルス
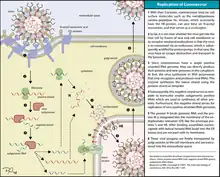
これらのウイルスには2つのタイプがあるが、どちらも複製は主に細胞質内で行われ、複製はDNAウイルスほど細胞周期に依存しないという点で共通している。このクラスのウイルスは、2本鎖DNAウイルスと並んで、最も研究されているウイルスの一つでもある。
クラス4:1本鎖RNAウイルス(mRNAとして作用)- ポジティブセンス
ポジティブセンスRNAウイルス、そして実際にポジティブセンスとして定義されているすべての遺伝子は、宿主リボソームから直接アクセスして、すぐにタンパク質を形成することができる。これらは2つのグループに分けることができ、どちらも細胞質内で複製する。
クラス5:1本鎖RNAウイルス - ネガティブセンス
ネガティブセンスRNAウイルス、および実際にネガティブセンスとして定義されたすべての遺伝子は、宿主リボソームが直接アクセスしてタンパク質を即座に形成することができない。その代わりに、それらはウイルスポリメラーゼによって「読み撮り可能な」相補的ポジティブセンスに転写されなければならない。これらは、次の2つのグループに分けることもできる。
- 複製の最初のステップは、ウイルスRNA依存性RNAポリメラーゼによるネガティブ鎖ゲノムからの転写であり、さまざまなウイルスタンパク質を符号化するモノシストロン性mRNAを生成する、非セグメント化ゲノムを含むウイルス。その後、ネガティブ鎖ゲノムを生成するためのテンプレート(鋳型)となるポジティブセンスゲノムコピーが生成される。複製は細胞質内で行われる。
- 細胞質内で複製が行われ、ウイルスRNA依存性RNAポリメラーゼが各ゲノムセグメントからモノシストロン性mRNAを生成する、分割されたゲノムを持つウイルス。
このクラスの例としては、オルトミクソウイルス科、パラミクソウイルス科、ブニヤウイルス科、フィロウイルス科、およびラブドウイルス科 (狂犬病を含む) が含まれる。
脚注
- Roberts RJ, "Fish pathology, 3rd Edition", Elsevier Health Sciences, 2001.
- Geo. F. Brooks, M.D et al. "Jawetz, Melnick & Adelberg's MEDICAL MICROBIOLOGY.pdf, 26th Edition, McGraw Hill, 2013, ISBN 978-0-07-181578-9
- N.J. Dimmock et al. "Introduction to Modern Virology, 6th edition." Blackwell Publishing, 2007.