エフリン
エフリン(英: ephrin)は、Eph受容体のリガンドとして機能するタンパク質ファミリーである。Eph受容体は受容体型チロシンキナーゼ(RTK)であり、RTKの最大のサブファミリーを構成している。
| エフリン | |||||||||
|---|---|---|---|---|---|---|---|---|---|
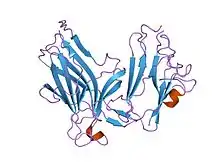 EphB4-エフリンB2タンパク質複合体の細胞外ドメイン | |||||||||
| 識別子 | |||||||||
| 略号 | Ephrin | ||||||||
| Pfam | PF00812 | ||||||||
| Pfam clan | CL0026 | ||||||||
| InterPro | IPR001799 | ||||||||
| PROSITE | PDOC01003 | ||||||||
| SCOP | 1kgy | ||||||||
| SUPERFAMILY | 1kgy | ||||||||
| CDD | cd02675 | ||||||||
| Membranome | 70 | ||||||||
| |||||||||
エフリンリガンドとEph受容体はどちらも膜結合タンパク質であり、両者の結合とEphとエフリンを介した細胞内シグナル経路の活性化は直接的な細胞間接触によってのみ生じる。Eph/エフリンシグナルは、軸索の成長円錐の誘導(軸索誘導)[1]、組織境界の形成[2]、細胞遊走、分節化を含む、胚発生時のさまざまな生物学的過程を調節する[3]。さらに近年では、Eph/エフリンシグナルは長期増強[4]、血管新生[5]、幹細胞の分化[6]など成体でもいくつかの過程の維持に重要な役割を果たしていることが発見されている。
分類
エフリンリガンドは、その構造と細胞膜への結合様式に基づいて、エフリンAとエフリンBの2つのサブクラスに分類される。エフリンAはグリコシルホスファチジルイノシトール(GPI)によって膜へ固定されており、細胞質ドメインを欠いている。一方、エフリンBは1回膜貫通ドメインによって膜へ結合しており、細胞質側には短いPDZ結合モチーフが含まれている。エフリンAとエフリンBをコードする遺伝子はそれぞれEFNA、EFNBではじまる名称がつけられている。エフリンAまたはエフリンBのどちらに対して結合親和性を有するかに基づいて、Eph受容体はEphAとEphBへ分類される[7]。
ヒトで同定されている8種類のエフリンのうち5種類がエフリンA(エフリンA1–5)で、9種類のEphA(EphA1–8、10)と相互作用する。そして残りの3種類がエフリンB(エフリンB1–3)で、5種類のEphA(EphB1–4、6)と相互作用する[4][8]。特定のサブクラスのEphは対応するサブクラスの全てのエフリンに対して高い親和性で結合することが示されており、一般的には異なるサブクラスのエフリンに対する交差結合はほとんど見られない[9]。しかし、このサブクラス間の結合特異性にはわずかな例外が存在し、近年ではエフリンB3がEphA4に結合して活性化することや、エフリンA5がEphB2に結合して活性化することが示されている[10]。EphA/エフリンA間相互作用は一般的に親和性が高く、その理由の1つはエフリンAが「鍵と鍵穴」機構によってEphAに結合し、EphAのコンフォメーション変化がほとんど必要ないためである。対照的に、EphB/エフリンB間相互作用は一般的にはEphA/エフリンA間相互作用よりも親和性が低いが、その理由の1つはエフリンBの結合の際にEphBのコンフォメーションにより大きな変化が必要となる「誘導適合」機構が用いられているためである[11]。
機能
逆行性シグナル伝達
エフリンリガンドの性質として独特なのは、その多くが逆行性シグナル(reverse signal)を開始することができるという点である。これはEph受容体を発現している細胞で活性化される順行性シグナル(forward signal)とは異なるものである。逆行性シグナル伝達の機構は完全には理解されていないが、エフリンAとエフリンBの双方で、対応する受容体の活性化に関係したものとは異なる細胞応答を媒介することが示されている。具体的にはエフリンA5は脊椎の運動神経の成長円錐の拡大を促進し[12]、エフリンB1は樹状突起スパインの成熟を促進することが示されている[13]。
軸索誘導
中枢神経系の発生過程において、Eph/エフリンシグナル伝達はいくつかのタイプの神経軸索が標的部位への細胞間接触を介して移動する際に重要な役割を果たしている。Eph/エフリンシグナル伝達は、軸索の成長円錐の生存を阻害する能力によって、移動中の軸索のEph/エフリン活性化部位に対する反発を引き起こすことで、軸索誘導を制御する[12]。移動中の軸索の成長円錐は、接触している細胞のEphやエフリンの絶対的レベルに対して単純に応答するのではなく、Ephとエフリンの相対的発現レベルに対して応答する。その結果、Ephまたはエフリンのいずれかを発現している軸索は、標的部位のEph/エフリン発現勾配に従って、軸索の成長円錐の生存の完全な阻害が起こらなくなる地点へ向かって移動することが可能となる[12]。
Eph-エフリンの活性化は通常、成長円錐の生存の低下と移動中の軸索の反発と関係しているが、近年では成長円錐の生存は単にEph-エフリンの活性化に依存しているのではなく、Eph受容体による順行性シグナルやエフリンリガンドによる逆行性シグナルが成長円錐の生存に及ぼす影響の差に依存していることが示されている[12][14]。
レチノトピックマッピング
上丘(下等脊椎動物では視蓋と呼ばれる)における組織化されたレチノトピックマップの形成には、網膜神経節細胞(RGC)の軸索が網膜から上丘の特定の領域へ適切に移動することが必要であり、この過程は網膜から移動するRGCと上丘の双方に存在するEphとエフリンの発現勾配によって媒介される[15]。エフリンAの発現勾配は上丘の後部で高くそして前部で低いため、上述した軸索の成長円錐の生存低下機構によって、高レベルのEphA受容体を発現している網膜の耳側領域のRGCは上丘の前部へ、低レベルのEphA受容体を発現している網膜の鼻側領域のRGCは上丘の後部へ向かって移動する[16][17][18]。同様に、上丘の内側-外側軸に沿ったエフリンB1の勾配によって、背側、腹側のEph発現RGCはそれぞれ外側、内側へ向かって移動する[19]。
血管新生
エフリンは生理的条件と病理学的条件(がんや脳動静脈奇形における新血管形成など)の双方で血管新生を促進する[20][21]。特に、エフリンB2とEphB4は内皮細胞の動脈と静脈への運命を決定し、VEGFシグナル伝達経路の発現を調節することで血管新生を調節する。エフリンB2は、順行性・逆行性シグナル伝達経路によってVEGF受容体(VEGFR3など)に影響を与える[22]。エフリンB2はリンパ管新生にも影響を与え、培養リンパ管内皮細胞でVEGFR3の内部移行を引き起こす[22]。発生過程での血管新生におけるエフリンの役割は解明されているが、腫瘍での血管新生における役割は未解明である。エフリンA2欠損マウスでの観察に基づくと、エフリンA2は腫瘍の血管新生における順行性シグナル伝達に関係している可能性がある。しかし、このエフリンは発生過程での血管の奇形には関係していない[23]。エフリンB2とEphB4は発生過程における役割に加えて腫瘍での血管新生にも寄与している可能性があるが、その正確な機構は未解明である[23]。エフリンB2/EphB4とエフリンB3/EphB1ペアは血管新生に加えて脈管形成にもより多くの寄与をしているが、エフリンA1/EphA2ペアは血管新生のみに寄与しているようである[24]。
乳がん、大腸がん、肝臓がんを含むヒトのがんでは、いくつかのタイプのエフリンとEph受容体がアップレギュレーションされている[24]。他のタイプのエフリンと受容体のダウンレギュレーションも腫瘍形成に寄与し、EphA1のダウンレギュレーションは大腸がん、EphB6はメラノーマに寄与する[24]。
腸管上皮細胞の移動因子
エフリンファミリーとEphBファミリーの細胞表面受容体との相互作用は、腸管上皮細胞が陰窩から絨毛へ安定して規則正しく特異的に移動することを可能にしている。腸陰窩の深部ではWntタンパク質がEphB受容体の発現の引き金を引き、前駆細胞がより表面へ移動するほどEphの発現は低下し、エフリンリガンドの発現は上昇する[25][26]。移動は双方向性シグナル伝達機構によって引き起こされ、エフリンリガンドとEphB受容体との結合がアクチン細胞骨格のダイナミクスを調節して反発を引き起こす。相互作用が止まると、細胞はその場にとどまる。粘液を分泌する杯細胞と吸収上皮細胞は内腔へ向かって移動するが、成熟したパネート細胞は反対方向、腸陰窩の底部へ移動し、そこにとどまる[26]。
Eph受容体のノックアウトマウスを用いて行われた実験では、さまざまな細胞種の分布の異常がみられており[26]、受容体が発現していない場合、エフリンリガンドは正確な細胞の配置を行うには不十分であることが示されている[27]。ノックアウトマウスを用いた近年の研究では、エフリン-Eph間の相互作用が大腸がんの抑制に間接的な役割を果たしているという証拠が得られている。大腸の腺腫性ポリープは、エフリン-Eph間相互作用によって制御されている上皮細胞が無制御に増殖することによって形成される。APCに変異を有するマウスでは、エフリンBタンパク質が存在しなければEphB陽性腫瘍細胞の拡大を防ぐ手段が存在しないこととなる[28]。
出典
- “Bidirectional Eph-ephrin signaling during axon guidance”. Trends in Cell Biology 17 (5): 230–238. (May 2007). doi:10.1016/j.tcb.2007.03.004. PMID 17420126.
- Hamada, Hiroshi, ed (Mar 2011). “EphrinB/EphB signaling controls embryonic germ layer separation by contact-induced cell detachment”. PLoS Biology 9 (3): e1000597. doi:10.1371/journal.pbio.1000597. PMC 3046958. PMID 21390298.
- “Ephrin signaling in vivo: look both ways”. Developmental Dynamics 232 (1): 1–10. (Jan 2005). doi:10.1002/dvdy.20200. PMID 15580616.
- “Mechanisms and functions of Eph and ephrin signalling”. Nature Reviews Molecular Cell Biology 3 (7): 475–486. (Jul 2002). doi:10.1038/nrm856. PMID 12094214.
- “Regulation of angiogenesis by Eph-ephrin interactions”. Trends in Cardiovascular Medicine 17 (5): 145–151. (Jul 2007). doi:10.1016/j.tcm.2007.03.003. PMID 17574121.
- “Ephrins and Eph receptors in stem cells and cancer”. Current Opinion in Cell Biology 22 (5): 611–616. (Oct 2010). doi:10.1016/j.ceb.2010.08.005. PMID 20810264.
- “Unified nomenclature for Eph family receptors and their ligands, the ephrins. Eph Nomenclature Committee”. Cell 90 (3): 403–404. (Aug 1997). doi:10.1016/S0092-8674(00)80500-0. PMID 9267020.
- “Eph/ephrin molecules--a hub for signaling and endocytosis”. Genes & Development 24 (22): 2480–2492. (Nov 2010). doi:10.1101/gad.1973910. PMC 2975924. PMID 21078817.
- “The Eph family of receptors”. Current Opinion in Cell Biology 9 (5): 608–615. (Oct 1997). doi:10.1016/S0955-0674(97)80113-5. PMID 9330863.
- “Repelling class discrimination: ephrin-A5 binds to and activates EphB2 receptor signaling”. Nature Neuroscience 7 (5): 501–509. (May 2004). doi:10.1038/nn1237. PMID 15107857.
- “Ectodomain structures of Eph receptors”. Seminars in Cell & Developmental Biology 23 (1): 35–42. (Feb 2012). doi:10.1016/j.semcdb.2011.10.025. PMID 22044883.
- “Coexpressed EphA receptors and ephrin-A ligands mediate opposing actions on growth cone navigation from distinct membrane domains”. Cell 121 (1): 127–139. (Apr 2005). doi:10.1016/j.cell.2005.01.020. PMID 15820684.
- “Grb4 and GIT1 transduce ephrinB reverse signals modulating spine morphogenesis and synapse formation”. Nature Neuroscience 10 (3): 301–310. (Mar 2007). doi:10.1038/nn1858. PMID 17310244.
- “Ephrin-B2 elicits differential growth cone collapse and axon retraction in retinal ganglion cells from distinct retinal regions”. Developmental Neurobiology 70 (11): 781–794. (Sep 2010). doi:10.1002/dneu.20821. PMC 2930402. PMID 20629048.
- “Eph and ephrin signaling in the formation of topographic maps”. Seminars in Cell & Developmental Biology 23 (1): 7–15. (Feb 2012). doi:10.1016/j.semcdb.2011.10.026. PMC 3288406. PMID 22044886.
- “Multiple roles of EPH receptors and ephrins in neural development”. Nature Reviews. Neuroscience 2 (3): 155–164. (Mar 2001). doi:10.1038/35058515. PMID 11256076.
- “Complementary gradients in expression and binding of ELF-1 and Mek4 in development of the topographic retinotectal projection map”. Cell 82 (3): 371–381. (Aug 1995). doi:10.1016/0092-8674(95)90426-3. PMID 7634327.
- “In vitro guidance of retinal ganglion cell axons by RAGS, a 25 kDa tectal protein related to ligands for Eph receptor tyrosine kinases”. Cell 82 (3): 359–370. (Aug 1995). doi:10.1016/0092-8674(95)90425-5. PMID 7634326.
- “Topographic mapping in dorsoventral axis of the Xenopus retinotectal system depends on signaling through ephrin-B ligands”. Neuron 35 (3): 461–473. (Aug 2002). doi:10.1016/S0896-6273(02)00786-9. PMID 12165469.
- “Essential roles of EphB receptors and EphrinB ligands in endothelial cell function and angiogenesis”. Advances in Cancer Research 114 (2): 21–57. (2012). doi:10.1016/B978-0-12-386503-8.00002-8. ISBN 9780123865038. PMC 3500853. PMID 22588055.
- “Ephrin B2 and EphB4 selectively mark arterial and venous vessels in cerebral arteriovenous malformation”. The Journal of International Medical Research 42 (2): 405–15. (Apr 2014). doi:10.1177/0300060513478091. PMID 24517927.
- “Ephrin-B2 controls VEGF-induced angiogenesis and lymphangiogenesis”. Nature 465 (7297): 483–486. (May 2010). doi:10.1038/nature09002. PMID 20445537.
- “Eph receptors and ephrins in cancer: bidirectional signalling and beyond”. Nature Reviews. Cancer 10 (3): 165–80. (Mar 2010). doi:10.1038/nrc2806. PMC 2921274. PMID 20179713.
- Mosch, Birgit; Reissenweber, Bettina; Neuber, Christin; Pietzsch, Jens (2010). “Eph Receptors and Ephrin Ligands: Important Players in Angiogenesis and Tumor Angiogenesis”. Journal of Oncology 2010: 1–12. doi:10.1155/2010/135285. ISSN 1687-8450. PMC 2836134. PMID 20224755.
- Alberts, Bruce; Johnson, Alexander; lewis, Julian; Raff, Martin; Roberts, Keith; Walter, Peter (2007). Molecular Biology of the Cell. Garland Sciences. p. 1 440–1441. ISBN 978-0815341055
- “Wnt signalling and EphB-ephrin interactions in intestinal stem cells and CRC progression”. 2007 Scientific Report. 2020年8月24日閲覧。
- “Developmental expression of Eph and ephrin family genes in mammalian small intestine”. Digestive Diseases and Sciences 55 (9): 2478–88. (Sep 2010). doi:10.1007/s10620-009-1102-z. PMC 3947671. PMID 20112066.
- Pitulescu, Mara (2010). “Eph/ephrin molecules-a hub for signaling and endocytosis”. Genes & Development 24 (22): 2480–2492. doi:10.1101/gad.1973910. PMC 2975924. PMID 21078817.