オピストコエリカウディア
オピストコエリカウディア(Opisthocoelicaudia "後方が空洞の尾"の意味)は、白亜紀後期に生息した体長12 mほどの竜脚類恐竜の属である。化石は1965年、モンゴルとポーランドの研究者によりモンゴルのゴビ砂漠で発見された。白亜紀には現在のモンゴル一帯には砂漠ではなく緑豊かなジャングルと濁った沼地が存在し、オピストコエリカウディアはこの中をかきわけて生きていたと考えられている。
| オピストコエリカウディア | |||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
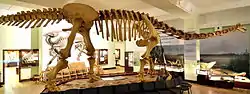 MEPANに展示されている復元骨格 | |||||||||||||||||||||||||||||||||||||||
| 地質時代 | |||||||||||||||||||||||||||||||||||||||
| 白亜紀後期 | |||||||||||||||||||||||||||||||||||||||
| 分類 | |||||||||||||||||||||||||||||||||||||||
| |||||||||||||||||||||||||||||||||||||||
| 学名 | |||||||||||||||||||||||||||||||||||||||
| Opisthocoelicaudia Borsuk-Białynicka, 1977 | |||||||||||||||||||||||||||||||||||||||
| 下位分類(種) | |||||||||||||||||||||||||||||||||||||||
この属は1977年にMaria Magdalena Borsuk-Białynickaによりカマラサウルス科の新属として記載された。属名は古代ギリシャ語で「後」を意味するοπισθή( opisthe)と「空洞」を意味するκοιλος(koilos)、ラテン語で「尾」を意味するcaudaから派生していて「後方が空洞の尾」という意味である[1]。Salgado&Coria (1993)ではカマラサウルス科ではなく、サルタサウルス科(Saltasauridae)のティタノサウルス類であるとされている[2]。頭骨および頸部は発見されておらず、埋没まえに失われていたとみられる。骨盤と上腕骨には目立った歯型が残されており、 Borsuk-Białynickaはティラノサウルス類のスカベンジャーにより死体が食べられてできたものと示唆している[1]。頭骨も頸部も発見されていないため、現在のところ復元は出来ない。
特徴
オピストコエリカウディアは比較的小型の竜脚類である。ほぼ完全に近い形の個体の骨格から推定された頭から尾の先までの全長は11 mほどである[3][4]。体重は8.4 t[3]もしくは10.5 t[4]、もしくは13 t[5]と研究者により複数の推定がなされている。
頭骨と頸部は保存されていないが、項靱帯からは頸部の長さは中程度で水平もしくはやや下向きに配置されていたことが示唆される。 [1]他のティタノサウルス類と同じように、付加的な椎骨の関節であるハイポスフェン-ハイパントラム関節(en)がなく背中は非常に柔軟で[6] 、骨盤は第6の仙椎が加わることでより頑丈になっていた[1]。自然な状態では、胴体の椎体は真直ぐに固定されていた[7]。伝統的にオピストコエリカウディアは背中が水平になった状態で復元されている。しかし、Daniela Schwarzらは2007年、実際には後方に向かって下がっていたことを示した。肩甲骨が以前に考えられていたより急傾斜で水平に対して55–60°傾いており、結果として肩の位置が上がっていたのだ[7]。同椎では棘突起が二分岐していて、突起に沿って2列の骨質の突起が並んでいる[8]。この特徴はティタノサウルス類に独特の特徴であるものの、ディプロドクスやエウヘロプスなど別の系統でも見られる[9]。別の独特の特徴が尾の前半部に見られる。この部位の椎骨はopisthocoelous、つまり前側が凸、後側が凹んだ形状になり、ボール・ソケット関節(en)を形成している[1]。このopisthocoelousな尾椎によりオピストコエリカウディアと名づけられ、この特長により他の全てのティタノサウルス類と区別される[10]。他のティタノサウルス類では一般的に前半部の尾椎ではprocoelous、つまり前が凹み、後側が凸な形状で特徴づけられる[2]
骨盤は腸骨、坐骨、恥骨と名づけられた3つの骨で構成される。他の多くのティタノサウルス類と同様に、坐骨は比較的短く、恥骨の長さの2/3ほどである。坐骨、恥骨は双方とも全長の大部分に渡って骨化しており、これらの骨の間に通常見られる隙間(thyroid fenestra)が閉じていて、他の全てのティタノサウルス類と区別される[10]。四肢は他のティタノサウルス類に比べて比例して短い[11]。完全に近い標本では前肢の長さが1.87 mで、長さ2.64 mであった後肢の約2/3である[1]。他のティタノサウルス類と同じように、四肢は胴体に垂直ではなくやや外側に広がっていた[12]。
マヌス(手)はたった5つの中手骨で構成され、これらは垂直方向に配向し半円状に並んでいる。他のティタノサウルス類同様手根骨は欠失している[1][13]。指骨と鉤爪は他ティタノサウルス類では著しく退化しているものの残っているのに対して、オピストコエリカウディアでは完全になくなっている。足では距骨は他のティタノサウルス類と同様に非常に縮小していて、オピストコエリカウディアでは踵骨が完全になくなっている[1]マヌスとは対照的に足では趾と鉤爪が発達している。 phalangeal formula(趾骨の状態を表す番号)2-2-2-1-0である。オピストコエリカウディアでは足の骨格が完全に保存されており、現在のところティタノサウルス類では他に2例知られているのみである。これらでは異常なphalangeal formulaが見られる[14]。
現在までに40以上ティタノサウルス類の属が知られ、そのうち10の属で皮骨(en)、つまり胴体を覆う骨質のプレートが見つかっている。オピストコエリカウディアではほぼ完全骨格でも皮骨は欠いており、この属には皮骨はなかったようだ。ティタノサウルス類ではおそらく皮骨は何度も独立して進化したものとみられる[15]。
発見と標本
ホロタイプ標本(標本番号ZPAL MgD-I/48)は頭骨と頸椎を欠くものの完全に近い骨格である。 この化石はモンゴル南部、ウムヌゴビ県にあるAltan Ula IVで発見された。この場所はネメグト盆地にある3つの累層のうち最も新しい時代のものであるネメグト累層(en)に属している。Altan Ula IVは有名な脊椎動物化石の宝庫であり、他に重要な恐竜の化石としてトロオドン科のボロゴヴィア[16]、曲竜類のタルキア[17]などが発見されている。標本は老齢な個体のものであった。発見時、椎骨はおおむね関節状態で、胴椎8個、仙椎6個、尾椎34個で構成されていた。1連の椎骨から孤立した3個の椎骨が見つかっており、これは頸椎と胴椎の遷移領域のものとみられる。これらの化石は死体の元々の解剖学的な位置からやや外側にずれていた[1]。
タイプ標本とともにBorsuk-Białynickaは同じ場所で発見された肩甲骨と烏口骨(ZPAL MgD-I/25c)を記載している。これらの骨は互いに癒合しておらず幼若な個体のものとみられる[1]。2003年、フィリップ・カーリー( en)らは断片的な尾である標本(MPD 100/406)についてもオピストコエリカウディアのものであると言及している。この尾の化石が発見されたネメグト周辺からはティタノサウルス類のネメグトサウルスの頭骨も発見されている[18]
タイプ標本は1965年6月10日から23日に行われたポーランド-モンゴル共同調査の中で地質学者Riszard Gradzinskiにより発見された。起伏の多い地形での標本を搬出するには様々な技術的問題が起こった。化石は非常に硬い砂岩に埋没していて、トラックが使えない場所だったので骨を含む大きな岩のブロックを580 mもそりで移動しなければならなかった。これらのブロックは総計で12 tに及んだ。7月9日、化石は35個の塊はダルンザドガドへと送り出された。塊の多くは重量1 tを超えていた[19]。現在、これらの標本はウランバートルにあるモンゴル科学アカデミー(en)地質学研究所に収蔵されている[20]。
タイプ種Opisthocoelicaudia skarzynskiiは1977年、ポーランドの古生物学者Maria Magdalena Borsuk-Białynickaにより命名、記載された。属名は(古代ギリシャ語で「後」を意味するοπισθή( opisthe)と「空洞」を意味するκοιλος(koilos)、ラテン語で「尾」を意味するcaudaから派生していて)独特の尾椎の状態に由来し、種小名 skarzynskii は骨格のプレパレーターであるWojciech Skarżyńskiに献名されたものである[1]
タフォノミー(化石形成論)
タイプ標本には特に骨盤と大腿骨に噛まれた跡があり、肉食動物が死体を食べた跡と見られる。頭部と頸部は失われており、肉食動物が持ち去ってしまったようだ[1]。標本は仰向けの姿勢で発見された[21]。注目すべきことに、左肢と左側の肋骨がともに体に右側から見つかり、反対に右側の肢と肋骨が体に左側から発見された。死体は軟部組織が完全に腐る前に、短期間で洪水より運ばれ、その後、堆積物で覆われた可能性がある[1]。
分類
オピストコエリカウディアは初めカマラサウルス、エウヘロプスとともにカマラサウルス科(Camarasauridae)に分類された。この分類は骨格にあるいくつかの共通した特徴の中で胴椎の神経棘が二分岐していることを最重視することに基づいている。Borsuk-Białynicka (1977)ではカマラサウルスよりエウヘロプスに近縁と考えられ、エウヘロプス亜科(Euhelopodinae)に分類された[1]。 他方で、Coombs&Molnar (1981)では比較的カマラサウルスの方に近縁であると考えられカマラサウルス亜科(Camarasaurinae)に分類された[22]。今日ではエウヘロプスとオピストコエリカウディアは共にカマラサウルス科以外に分類されている。1993年、Leonardo SalgadoとRodolfo Coriaはオピストコエリカウディアがティタノサウルス類の特徴を示し、ティタノサウルス科(Titanosauridae)に分類されるとした[2]。ティタノサウルス科の名前は多くの研究者により無効であるとみなされ[23]リトストロティア(Lithostrotia)の名で同じグループを記載している[10]。
多くの系統解析においてオピストコエリカウディアはティタノサウルス科/リトストロティアを含むティタノサウルス類の中で北アメリカの属であるアラモサウルスに最も近縁であると示される。両属はおそらくサルタサウルスとネウクエンサウルス(Neuquensaurus)に近縁で、サルタサウルス亜科(Saltasaurinae)と呼ばれるグループを形成する。アラモサウルスとオピストコエリカウディアが単系統で、両者でオピストコエリカウディア亜科(Opisthocoelicaudiinae)を形成し、サルタサウルス亜科の姉妹群であるとする研究者もいる。一方で、アラモサウルス+オピストコエリカウディアは多系統で、両属ともサルタサウルス亜科の外群であると結論する研究者もいる[24]。他のほとんど研究と矛盾するが、Upchurchet al.(2004)ではアラモサウルスとオピストコエリカウディアは全く近縁ではないと主張している。この説ではアラモサウルスはペレグリニサウルス(Pellegrinisaurus)に最も近縁であり、サルタサウルス科(Saltasauridae)の外群で、一方、オピストコエリカウディアはサルタサウルス科であると考えられている[10]。
以下のクラドグラムは2つの主要な仮説に基づいたものである:オピストコエリカウディアを単系統のオピストコエリカウディア亜科に分類した場合(左側、Wilson 2002に拠る[8]);オピストコエリカウディア亜科が多系統だった場合 (右側, Calvo& Gonzáles-Riga 2003に拠る[25])。
|
|
ネメグトサウルスのシノニムである可能性
ネメグト累層の別の竜脚類であるネメグトサウルスは頭骨しか知られていない。他方で、オピストコエリカウディアは頭骨と頸部が失われており、直接の比較が不可能で、両属が同種(シノニム)のものではないかという疑義が排除できない。国際動物命名規約(ICZN)に従えば、古い方の名前が新しいシノニムに優先権を持ち、もしオピストコエリカウディアがネメグトサウルスのシノニムであると示されればネメグトサウルスが正統なものとして残り、オピストコエリカウディアは無効になってしまう[18]
Borsuk-Białynicka (1977)ではオピストコエリカウディアとネメグトサウルスは別の属を表すものと判断された。この時点ではネメグトサウルスはディクラエオサウルス科(Dicraeosauridae)に属し、一方、オピストコエリカウディアは異なったグループであるカマラサウルス科に属するとみなされていたからである。さらにBorsuk-Białynickaは同じ生息地で別の竜脚類の属が共存しているのは珍しくないと主張した。これは北アメリカのモリソン累層(en)では全く明らかで、ここでは5つ以上の竜脚類の種が共存していた[1]。
現在では、オピストコエリカウディアとネメグトサウルスはともにティタノサウルス類に分類されており、Jeffrey Wilson (2005)ではシノニムである可能性が否定できないとしている[26]。 Currieet al.(2003) ではシノニムである可能性が高いと主張しネメグトサウルスの頭骨が発見されたのと同じ場所で発見されたオピストコエリカウディアのものとされる断片的な尾椎の化石を報告した。しかし、この問題を更なる決定的な発見が必要であると結論している[18]
参照
- Maria Magdalena Borsuk-Białynicka (1977): A new camarasaurid sauropod Opisthocoelicaudia skarzynskii gen. n., sp. n. from the Upper Cretaceous of Mongolia. Palaeontologia Polonica 37, pp. 5–64. (PDF)
- Salgado, L. and Coria, R.A. (1993). Considerations on the phylogenetic relationships of Opisthocoelcaudia skarzynskii (Sauropoda) from the Upper Cretaceous of Mongolia. translated by: Jeffrey A. Wilson University of Chicago Department of Organismal Biology & Anatomy June, 1997.
- G. S. Paul, 1997: Reproductive behavior and rates. In: P. J. Currie and K. Padian (editors): Encyclopedia of dinosaurs, pp. 630–637. Academic Press, San Diego.
- Seebacher, Frank (2001). “A new method to calculate allometric length-mass relationships of dinosaurs”. Journal of Vertebrate Paleontology 21 (1): 51–60. doi:10.1671/0272-4634(2001)021[0051:ANMTCA]2.0.CO;2.
- G. C. Packard, T. J. Boardman and G. F. Birchard, 2009: Allometric equations for predicting body mass of dinosaurs. In: Journal of Zoology, Volume 279, pp. 102–110.
- Sebastián Apesteguía (2005): Evolution of the Hyposphene-Hypantrum Complex within Sauropoda. In: Thunder-Lizards: The Sauropodomorph Dinosaurs. Virginia Tidwell and Kenneth Carpenter (editors), Indiana University Press, ISBN 0-253-34542-1
- Daniela Schwarz, Eberhard Frey, Christian Meyer (2007): Novel Reconstruction of the Orientation of the Pectoral Girdle in Sauropods. In: The Anatomical Record, 290. pp. 32–47. (PDF)
- Wilson, Jeffrey (2002). “Sauropod dinosaur phylogeny: critique and cladistic analysis”. Zoological Journal of the Linnean Society 136: 217–276.
- Taylor, Michael P.; Mathew J. Wedel (2013-02-12). “Why sauropods had long necks; and why giraffes have short necks”. PeerJ 1: e36. doi:10.7717/peerj.36. ISSN 2167-8359.
- Upchurch, Paul; Paul M. Barret, Peter Dodson (2004). “Sauropoda”. In David B. Weishampel, Peter Dodson, Halszka Osmólska. The Dinosauria (2. ed.). Berkeley: University of California Press. pp. 297, 311, 314. ISBN 978-0-520-25408-4
- Carrano, Matthew T. (2005). “The Evolution of Sauropod Locomotion – morphological diversity of a secondarily quadrupedal radiation”. In Curry Rogers, Jeffrey Wilson. The Sauropods: Evolution and Paleobiology. University of California Press. ISBN 0-520-24623-3
- Wilson, Jeffrey A.; Carrano, Matthew T. (1999). “Titanosaurs and the origin of "wide-gauge" trackways: a biomechanical and systematic perspective on sauropod locomotion”. Paleobiology 52 (2): 252–267.
- Sebastián Apesteguía (2005): Evolution of the Titanosaur Metacarpus. In: Thunder-Lizards: The Sauropodomorph Dinosaurs. Virginia Tidwell and Kenneth Carpenter (editors), Indiana University Press, ISBN 0-253-34542-1.
- González Riga, Bernardo J.; Jorge Orlando Calvo, Juan Porfiri (2008). “An articulated titanosaur from Patagonia (Argentina): New evidence of neosauropod pedal evolution”. Palaeoworld 17: 33–40.
- d’Emic, Michael D.; J. A. Wilson, S. Chatterjee (2009). “The titanosaur (Dinosauria: Sauropoda) osteoderm record: review and first definitive specimen from India”. Journal of Vertebrate Paleontology 29: 165–177.
- Osmólska, Halszka (1987). “Borogovia gracilicrus gen. et sp. n., a new troodontid dinosaur from the Late Cretaceous of Mongolia”. Acta Palaeontologica Polonica 32: 133–150.
- Maryańska, Teresa (1970). “Remains of armoured dinosaurs from the uppermost Cretaceous in Nemegt Basin, Gobi Desert”. Acta Palaeontologia Polonica 21: 23–32.
- Currie, Philip J.; Badamgarav, Demchig; Koppelhus, Eva B. (2003). “The First Late Cretaceous Footprints from the Nemegt Locality in the Gobi of Mongolia”. Ichnos 10: 1–12. doi:10.1080/10420940390235071.
- Kielan-Jaworowska, Zofia; Dovchin, Naydin (1968). PDF “Narrative of the Polish-Mongolian Expeditions 1963–1965”. Acta Palaeontologia Polonia (19).
- Teresa Maryańska (2000). Sauropods from Mongolia and the former Soviet Union. In: M.J. Benton, M.A. Shishkin, D.M. Unwin, and E.N. Kurochkin (eds.), The Age of Dinosaurs in Russia and Mongolia. Cambridge University Press, Cambridge. p. 457–458
- Gradziński, Ryszard (1969). “Sedimentation of Dinosaur-bearing Upper Cretaceous Deposits of the Nemegt Basin, Gobi Desert”. Acta Palaeontologia Polonica (21).
- Coombs, W. P.; Molnar, R. E. (1981). “Sauropoda (Reptilia, Saurischia) from the Cretaceous of Queensland”. Memoirs of the Queensland Museum 20 (2): 351–373.
- Wilson, Jeffrey A.; Paul Upchurch (2003). “A Revision of Titanosaurus Lydekker (Dinosauria - Sauropoda), the first dinosaur genus with a 'gondwanan' distribution”. Journal of Systematic Palaeontology 1 (3): 125–160.
- Wilson, Jeffrey (2005). “Overview of Sauropod Phylogeny and Evolution”. In Curry Rogers, Jeffrey Wilson. The Sauropods: Evolution and Paleobiology. University of California Press. ISBN 0-520-24623-3
- Calvo, Jorge O.; Gonzáles Riga, Bernardo J. (2003). “Rinconsaurus caudamirus gen. et sp nov., a new titanosaurid (Dinosauria, Sauropoda) from the Late Cretaceous of Patagonia, Argentina”. Revista Geologica de Chile 30 (2): 342.
- Wilson, Jeffrey A. (2005). “Redescription of the Mongolian Sauropod Nemegtosaurus mongoliensis Nowinski (Dinosauria: Saurischia) and comments on Late Cretaceous Sauropod diversity”. Journal of Systematic Palaeontology 3 (3): 283–318. doi:10.1017/S1477201905001628.