カリフォルニアカスザメ
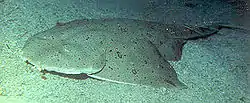
カリフォルニアカスザメ Squatina californica はカスザメ属に属するサメの一種。北東太平洋の沿岸の砂底に生息する。他のカスザメ類同様、平たい体と大きな胸鰭・腹鰭を持つ。本種の特徴としては1対の円錐形の髭を持つこと、胸鰭の先端の角度が小さいこと、灰色から茶色の体色に、多数の小さな黒斑があることが挙げられる。最大で1.5mになる。
| カリフォルニアカスザメ | |||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
 | |||||||||||||||||||||
| 保全状況評価[1] | |||||||||||||||||||||
| NEAR THREATENED (IUCN Red List Ver.3.1 (2001))  | |||||||||||||||||||||
| 分類 | |||||||||||||||||||||
| |||||||||||||||||||||
| 学名 | |||||||||||||||||||||
| Squatina californica Ayres, 1859 | |||||||||||||||||||||
| シノニム | |||||||||||||||||||||
|
Rhina philippi Garman, 1913(不明確) | |||||||||||||||||||||
| 英名 | |||||||||||||||||||||
| Pacific angelshark | |||||||||||||||||||||
 分布 |
待ち伏せ型捕食者で、海底に隠れ硬骨魚やイカを捕食する。捕食は視覚に頼って行われる。夜間には待ち伏せに適した場所を求めて定期的に移動を行う。胎生で、春に6匹程度の仔魚を産む。
刺激されなければ人は攻撃しない。カリフォルニア州で肉を目的とした商業漁業が行われていたが、現在はその中心はメキシコに移っている。IUCNは保全状況を準絶滅危惧としている。
分類
カリフォルニア科学アカデミーの最初の魚類学キュレーターであるウィリアム・オービル・エアーズによって1859年に記載された[2]。種小名は標本がサンフランシスコ(カリフォルニア州)から得られたことに由来する。地元では単にangel shark、monkfish、またはCalifornia angel sharkと呼ばれることもある[3]。
Kato, Springer and Wagner (1967) によって、南米太平洋岸に分布するSquatina armata と本種が同種とされていた。だが、その後レオナルド・コンパーニョによって暫定的に再び分離されている[4][5]。東太平洋に分布するカスザメ類としてはこの2種のみが記載されているが、この地域にはさらに1種以上の未記載種が存在する可能性がある。例えば、カリフォルニア湾に生息するカスザメは他の地域の個体より性成熟時の大きさが小さく、別種であることが示唆されている[4]。
2010年のmtDNAをもちいた分子系統解析では、本種は北西大西洋に分布するカリブカスザメと近縁であるという結果が得られた。この2種の分岐はおよそ610万年前で、パナマ地峡が形成された時代と概ね一致する。また、カリフォルニア湾の個体と他の地域の個体の比較も行われたが、種レベルの遺伝的差異があるという結果は得られなかった[6]。
分布
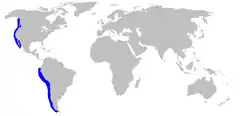
アラスカ南東からバハ・カリフォルニア半島、カリフォルニア湾までの冷温帯から暖温帯に分布する。特にカリフォルニア州の中部から南部で最もよく見られる。エクアドルやチリに分布するとしているものもあるが、この記録は不明確である。底生で、河口や湾内の柔らかく平らな沿岸近くの底質を好む。岩礁・海底谷・海中林の近くでもよく見られる。時折、海底から15–91mも離れて泳いでいる姿が見られることもある[3]。カリフォルニアでは主に水深3–45m、最大で205mから報告がある[7]。
分布域の北部を通して多数の進化的に重要な単位としての個体群が同定されている。コンセプション岬からアラスカにかけて複数の個体群が存在しており、南カリフォルニア沿岸でも、本土とチャンネル諸島の北部、南部に最低でも3つの個体群が存在する。バハカリフォルニア沿岸の個体群も、カリフォルニア湾内の個体群とは異なる[3]。本種は出生地を大きく離れて回遊することがなく、また、深海が個体群間の交流を妨げているため、これらの個体群は時間とともに別種へと分化していくと予想される。遺伝的多様性の指標であるヘテロ接合型の割合は、調査された他のサメ類よりも高い.[8]。
形態
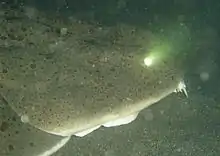
他のカスザメ類と同様、平たい体と大きな胸鰭を持ちエイに似ているが、頭部側面にある5対の鰓裂、胸鰭の前端が頭部から分離することはエイと異なる。眼は頭部上方に位置し、その後方に噴水孔がある。頭部側面には皮褶があるが、特に葉状の突出部は持たない。口は非常に幅広くて吻端に位置し、その上に先端が匙状になった1対の円錐形の髭を持つ[3][4]。片側の歯列は、上顎で9・下顎で10。中央には歯のない隙間がある。各歯は基部が幅広く、1本の細く、縁の滑らかな尖頭を持つ[2]。
胸鰭と腹鰭は幅広く、先端は角張って尖る。2基の背鰭は体後部に位置し、臀鰭はない。尾鰭下葉は上葉より大きい。背の正中線上には小さな棘の列が走る。吻と眼の上にも棘の塊がある[4]。成長とともに棘は小さくなり、消失することもある。背面は灰色、茶色、赤褐色などで、暗色の斑点が散らばる。成体では大きな斑点は小さな斑点の輪で取り巻かれ、幼体では複数対の眼状紋がある。腹面は白で、これは胸鰭・腹鰭の縁まで広がる[9]。全長1.5m、体重27kgになる[2]。
生態
他のカスザメ類同様に夜行性で、日中に遊泳することは少なく、海底で堆積物を被って休息している。夜間にも動かずに待ち伏せを続ける個体もいるが、他の個体は堆積物から出るか、積極的に泳ぎ回る[10]。ホホジロザメ・エビスザメ・キタゾウアザラシが本種を捕食することが知られている[3][11]。寄生虫として、皮膚に寄生するカイアシ類のTrebius latifurcatus、胆嚢に寄生する粘液胞子虫のChloromyxum levigatum、螺旋腸に寄生する条虫のParaberrapex manifestus が知られている[12][13][14]。ウオビル科のBranchellion lobata が総排泄孔、腸内、子宮内の胎児にまで寄生することがある[15]。
摂餌
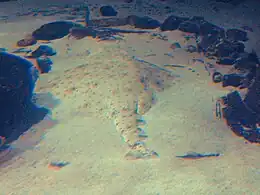
底生の待ち伏せ型捕食者で、主にケルプバス, ニベ科・カレイ類・スズメダイ科・サバ類・サーディンなどの硬骨魚を食べる。冬から初春にかけては繁殖期のイカが大量に出現するため、これが主要な獲物となる[3]。カリフォルニア湾南部での餌生物を重要度順に並べるとムロアジ属のDecapterus macrosoma、イサリビガマアンコウ属のPorichthys analis、アカエソ属のSynodus evermanni、アカマツカサ属のMyripristis leiognathus、イシエビ属のSicyonia penicillata となる[16]。サンタカタリナ島では、主にスズメダイ属のChromis punctipinnis・ニベ科の Seriphus politus を捕食していた[10]。成体も幼体も餌の種類はほぼ同じである[16]。
各個体はそれぞれ待ち伏せに適した場所を探す。多くの魚が隠れ家とする岩礁に近い、砂底と岩石底の境界を好み、岩棚などの垂直構造物に向き合うか、平行な姿勢を取る。斜面の上に体を向ける傾向があり、上から落ちてくる堆積物に潜りやすい、岩礁から下降流に乗って降りてくる魚を捕食できる、逆光となるため魚の影を認識しやすいなどの利点があると考えられる[10]。
一旦適した場所に落ち着くと、捕食行動のたびに位置を変えながら10日間程度はその場所に留まる。獲物も捕食者の位置を学習するため、定期的に、数km離れた新しい場所に夜間に移動する。サンタカタリナ島での調査では、13–25時間以上、9匹の個体がたった1.5 km2の範囲に留まっていた。その後の長期の調査では、3ヶ月で75kmを、島を周回するように移動していることが分かった。ある個体は夜間に7.3kmを遊泳した[10][17]。
自然条件下の実験では、電気的・化学的刺激や動き・振動を示さない魚型の模型にも攻撃したため、捕食は視覚に頼って行っているようである。夜間の捕食は、獲物の動きによる渦鞭毛虫や貝形虫の生物発光を目印として行う[17]。本種の視覚システムはこれらのプランクトンの発する波長に敏感で、夜間の狩りが重要であることを示している。前方から近づく獲物を積極的に攻撃するようである[10]。大抵は獲物が15cm以内に近づくまで待機し、これ以上の距離だと捕食の成功率は落ちる[3]。攻撃行動の流れは毎回ほぼ一定で、胸鰭の前部を底に押し付けて、頭部を上方90°までの角度に急激に押し出す。口を開けて筒状とすることで吸引力を生み、顎を突き出し、鋭い歯の間に獲物を吸い込むようにする。攻撃中、眼球は保護のために後方に引き込まれる。攻撃は0.1秒ほどで完了される[10]。
生活史
無胎盤性の胎生で、胎児は卵黄嚢から栄養を得る。繁殖は毎年行われる。雌は左側の卵巣のみが機能するが、稀に両方が機能する個体もいる。輸卵管にはよく卵黄が詰まっており、受精しなかった卵を再吸収していると考えられる。初期の胎児は35mm程度で、透明な皮膚と突き出た両眼、外鰓を持つ。70mm程度で色素の斑点が形成され、110mm程度で最初の歯が生える。150mm程度で口が吻端に移動し、体の模様が完成する。卵黄嚢は縮み始め、卵黄は体内へと移動して最終的には腸で消化される。卵黄は出生時には完全に吸収されるが、未熟な状態で出生した場合は卵黄の吸収が終わるまで餌を食べない[18]。
妊娠期間は10ヶ月程度で、サンタバーバラでは出産は3-6月である。その後すぐに交尾が行われる。産仔数は1-11(平均6)だが、13匹という記録もある。母体の大きさと産仔数に相関はない[18]。出産は、おそらく捕食者との遭遇を避けるために深度55-90mで行われる[17]。胚の成長速度は、初期には45mm/月で、出産前には10mm/月に落ちる。出生時は25-26cmで、その後も14cm/年程度の成長を続けるが、成体になると成長速度は2cm/年程度に落ちる。雌雄ともに90-100cm、8-13歳で性成熟する[18][19]。カリフォルニア湾内の個体はこれより小さい、雄で78cm・雌で85cmの大きさで性成熟する[3]。成体になるまで生き残る新生児は約20%である[20]。寿命は25-35年と推定されている[19]。他のサメと異なり、年単位ではなく個体の大きさに比例して椎骨に成長輪ができるため、年齢の測定が難しい[17]。
人との関わり
他のカスザメ類同様、積極的に人を攻撃することはないが刺激されると噛み付き、ひどい裂傷を負わせる[3]。商業的には主にバハカリフォルニアで漁獲され、肉は生・冷凍で販売される。特にカリフォルニア南部において、本種を対象とした遊漁者が存在し、少数が釣り、スピアフィッシング、素手などで捕獲されている。カリフォルニア湾ではエビ漁の底引き網で混獲され、魚粉へと加工される[4]。繁殖力と移動性が低いため、集中的な漁獲圧に耐えることは難しい[20]。
1976年、サンタバーバラ沖でのカリフォルニアビラメ (Paralichthys californicus) の刺し網漁が、本種を対象とするように拡張された。本種は季節的に漁獲されるマオナガの代替として売り込まれ、新たな加工技術が開発された。重量にして約50%が利用され、皮膚・軟骨・粗は捨てられた。1980年代には需要量の増大に応じて、本種のために設計された中程度の目の刺し網が導入された。水揚げ量は、処理後の重量にして、1977年の0.1t (148kg) から1983年には117t、1984年には277tへと急激に増加した。ピークは1985-1986年で、年間550tが水揚げされ、カリフォルニアで最も捕獲されているサメであった。これは持続不可能な漁業であり、1986年には小型個体の捕獲に規制が入ったが、乱獲により1990年の水揚げ量は112tへと低下した[20][21]。
1991年より、カリフォルニア沿岸での刺し網漁は有権者発案 (提案132号) によって禁止された。禁止領域は本種の主要な生息域を含み、漁獲圧は減少した。この結果、1994年には本種の水揚げ量は10tにまで低下し、カリフォルニア中部でのヒラメ/カスザメ漁は終焉を迎えた。現在も水揚げ量はこの水準にある。これはメキシコへのカスザメ産業の移転を招き、"pangas"と呼ばれる小型漁船による刺し網漁によって、カリフォルニアでの本種の需要が満たされている[20][21]。IUCNは保全状況を準絶滅危惧としている。カリフォルニアでは個体数が増加しており、統計モデルからは資源量が健全な状態にあると予測されるが[19]、メキシコでの規制されていない大量の漁獲が個体数に与えている影響は未知である。保護状況への懸念が優先されてはいるが、カリフォルニアでも商業漁業の再開に向けた根強い動きがある[20]。
脚注
- Cailliet, G.M. (2005). "Squatina californica". IUCN Red List of Threatened Species. Version 2010.1. International Union for Conservation of Nature. 2010年4月24日閲覧。
- Bester, C. Biological Profiles: Pacific Angelshark. Florida Museum of Natural History Ichthyology Department. Retrieved on June 22, 2009.
- Ebert, D.A. (2003). Sharks, Rays, and Chimaeras of California. University of California Press. pp. 76–80. ISBN 0-520-23484-7
- Compagno, L.J.V. (2002). Sharks of the World: An Annotated and Illustrated Catalogue of Shark Species Known to Date (Volume 2). Rome: Food and Agriculture Organization. pp. 144–145. ISBN 92-5-104543-7
- Lamilla, J. & Romero, M. (2004). "Squatina armata". IUCN Red List of Threatened Species. Version 2008. International Union for Conservation of Nature. 2009年6月22日閲覧。
- Stelbrink, B., T. von Rintelen, G. Cliff, and J. Kriwet (2010). “Molecular systematics and global phylogeography of angel sharks (genus Squatina)”. Molecular Phylogenetics and Evolution 54 (2): 395–404. doi:10.1016/j.ympev.2009.07.029. PMID 19647086.
- Froese, Rainer and Pauly, Daniel, eds. (2009). "Squatina californica" in FishBase. June 2009 version.
- Gaida, I.H. (December 9, 1997). “Population Structure of the Pacific Angel Shark, Squatina californica (Squatiniformes: Squatinidae), around the California Channel Islands”. Copeia (American Society of Ichthyologists and Herpetologists) 1997 (4): 738–744. doi:10.2307/1447291. JSTOR 1447291.
- Compagno, L.J.V., Dando, M. and Fowler, S. (2005). Sharks of the World. Princeton University Press. pp. 140–141. ISBN 978-0-691-12072-0
- Fouts, W.R. and Nelson, D.R. (May 7, 1999). “Prey Capture by the Pacific Angel Shark, Squatina californica: Visually Mediated Strikes and Ambush-Site Characteristics”. Copeia (American Society of Ichthyologists and Herpetologists) 1999 (2): 304–312. doi:10.2307/1447476. JSTOR 1447476.
- Sinclair, E.H. (1994). “Prey of juvenile northern elephant seals (Mirounga angustirostris) in the Southern California Bight”. Marine Mammal Science 10 (2): 230–239. doi:10.1111/j.1748-7692.1994.tb00267.x.
- Deets, G.B. and Dojiri, M. (March 1989). “Three species of Trebius Krøyer, 1838 (Copepoda: Siphonostomatoida) parasitic on Pacific elasmobranchs”. Systematic Parasitology 13 (2): 81–101. doi:10.1007/BF00015217.
- Jameson, A.P. (December 1931). “Notes on Californian Myxosporidia”. The Journal of Parasitology (The American Society of Parasitologists) 18 (2): 59–68. doi:10.2307/3271964. JSTOR 3271964.
- Jensen, K. (2001). “Four New Genera and Five New Species of Lecanicephalideans (Cestoda: Lecanicephalidea) From Elasmobranchs in the Gulf of California, Mexico”. Journal of Parasitology 87 (4): 845–861. doi:10.1645/0022-3395(2001)087[0845:FNGAFN]2.0.CO;2. PMID 11534651.
- Moser, M. and Anderson, S. (1977). “An intrauterine leech infection: Branchellion lobata Moore, 1952 (Piscicolidae) in the Pacific angel shark (Squatina californica) from California”. Canadian Journal of Zoology 55 (4): 759–760. doi:10.1139/z77-098.
- Escobar-Sanchez, O., Abitia-Cardenas, L.A. and Galvan-Magnan, F. (2007). “Food habits of the Pacific angel shark Squatina californica in the southern Gulf of California, Mexico”. Cybium 30 (4): 91–97.
- Martin, R.A. Sandy Plains: Pacific Angel Shark. ReefQuest Centre for Shark Research. Retrieved on June 22, 2009.
- Natanson, L.J. and Cailliet, G.M. (December 23, 1986). “Reproduction and Development of the Pacific Angel Shark, Squatina californica, off Santa Barbara, California”. Copeia (American Society of Ichthyologists and Herpetologists) 1986 (4): 987–994. doi:10.2307/1445296. JSTOR 1445296.
- Cailliet, G.M., Mollet, H.F., Pittenger, G.G., Bedford, D. and Natanson, L.J. (1992). “Growth and demography of the Pacific Angel Shark (Squatina californica), based upon tag returns off California”. Australian Journal of Marine and Freshwater Research 43 (5): 1313–1330. doi:10.1071/MF9921313.
- Fowler, S.L., Cavanagh, R.D., Camhi, M., Burgess, G.H., Cailliet, G.M., Fordham, S.V., Simpfendorfer, C.A. and Musick, J.A. (2005). Sharks, Rays and Chimaeras: The Status of the Chondrichthyan Fishes. International Union for Conservation of Nature and Natural Resources. pp. 233–234. ISBN 2-8317-0700-5
- Leet, W.S., Dewees, C.M., Klingbeil, R. and Larson, E.J., ed (2001). “Pacific Angel Shark”. California's Living Resources: A Status Report (fourth ed.). ANR Publications. pp. 248–251. ISBN 1-879906-57-0