キメララクネ
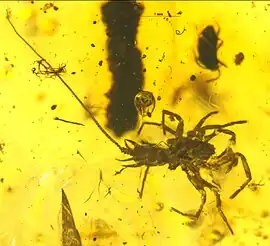
キメララクネ(Chimerarachne)は、約1億年前の白亜紀に生息したキメララクネ科の化石クモ類の一属[3][2][4]。原記載ではキメララクネ科はミャンマー産の琥珀(Burmese amber)から見つかったキメララクネ・インギ(Chimerarachne yingi)という1種のみによって知られており[4]、のちに同科あるいは同属とされる種が記載されている[4][5]。「尾のあるクモ」として知られ[3]、クモやその決定的な特徴の起源に重要な情報を与えた古生物である[1][6][7][3][4]。
| キメララクネ | |||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
 | |||||||||||||||||||||||||||
| 保全状況評価 | |||||||||||||||||||||||||||
| 絶滅(化石) | |||||||||||||||||||||||||||
| 地質時代 | |||||||||||||||||||||||||||
| 中生代白亜紀(約1億年前)[1] | |||||||||||||||||||||||||||
| 分類 | |||||||||||||||||||||||||||
| |||||||||||||||||||||||||||
| 学名 | |||||||||||||||||||||||||||
| Chimerarachne Wang et al., 2018[1] | |||||||||||||||||||||||||||
| タイプ種 | |||||||||||||||||||||||||||
| Chimerarachne yingi Wang et al., 2018[1] | |||||||||||||||||||||||||||
| シノニム | |||||||||||||||||||||||||||
| 種 | |||||||||||||||||||||||||||
名称
学名「Chimerarachne」は、様々な動物の特徴を掛け合わせたギリシア神話の怪物キマイラ(Χίμαιρα、chimera)と、古代ギリシア語で「クモ」を意味する「アラクネ」(ἀράχνη、arachne)の合成語である[1]。模式種(タイプ種)の種小名「yingi」は本種の化石の収集家 Yanling Ying に因んで名付けられた[1]。プラトニック編著 (2020) では「サソリオグモ属」の和名が与えられているが[8]、本属とサソリの「尾」は類似性が低く、相同器官でもない(本属の尾は尾節単体由来の数珠状の鞭状体、サソリの"尾"は最終5節の体節と鉤状の短い尾節からなる)[9]。
形態
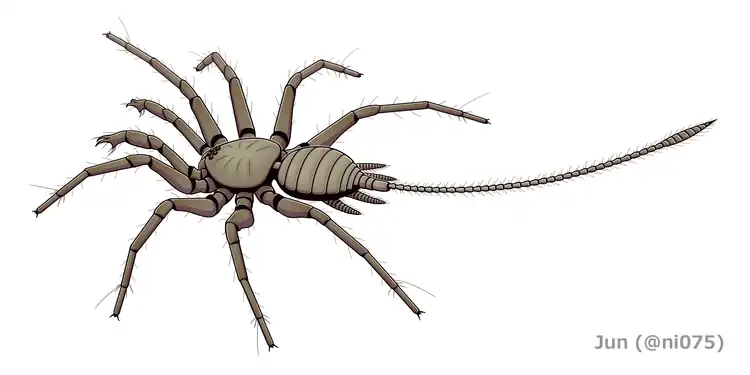 キメララクネの全身復元図
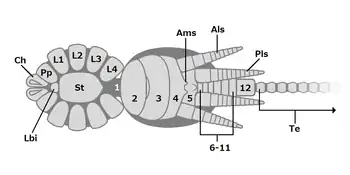
全体的にはハラフシグモ類に尾を足したような姿をもつ[10]。尾節と付属肢を除く体長は約2.5mmで[7][1]、体は大きく背甲に覆われる前体と体節が見られる後体からなり、その間は顕著にくびれ、後体の末端は約3mm[7]の鞭状の尾節(鞭状体)がある[1]。オス成体の化石標本のみによって知られる[1][6]。
前体
前体(prosoma, 頭胸部 cephalothorax)は先節と第1-6体節の癒合でできており、楕円形の背甲(carapace, prosomal dorsal shield)に覆われ、その先頭には単眼(1対の中眼と数対の側眼)をもつと考えられる隆起がある[1]。他のクモガタ類と同様、前体には各1対の鋏角(chelicera)と触肢(pedipalp)、および4対の脚という計6対の付属肢(関節肢)をもつ。腹面は触肢の間にある下唇(labium)と、脚の間にある腹板(sternite)をもつ[1]。
鋏角は他のクモと同様に2節からなり、末端の肢節は牙状で剛毛がない[1]。中疣類(ハラフシグモ亜目)や原蛛類(トタテグモ下目)のように、牙は平行に近い角度で配置される(orthognath)[1]。クモとして一般的な毒腺の有無は不明[1]。
触肢は脚よりやや短く、一般に6節をもつと考えられる[1][6]が、7節で、1節の跗節(最終肢節)と思われる部分は2節(蹠節/基跗節と跗節/端跗節)であるという説もある[4]。オスの触肢は跗節の先端に1対のソーセージ状の突起と尖った嚢状の構造体があり、これらはクモに特有の触肢器(palpal organ、移精器官 copulatory organ)で、特に後者は移精針(embolus)という、クモのオスが交接で精子をメスの生殖孔に打ち込む機能を果たす器官であったと考えられる[1]。
脚は発達で後方ほどわずかに長くなる。7節からなり、腿節(第3肢節)は最も頑丈で膝節(第4肢節)以降は細くなる。数多くの剛毛が生えており、蹠節(第6肢節)は先端近くに聴毛(trichobothria、音などを感知するために特化した刺毛)がある[1]。それぞれの跗節の先端には3本の櫛状の爪があり、中央の爪はやや短く、その下には爪間盤(pulvillus)がある[1]。
後体
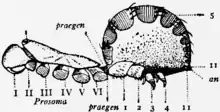
後体(opisthosoma, 腹部 abdomen)は腹柄を含めて12節からなり、ほとんどの体節は背板(tergite)と腹板によって顕著に表れる[1]。前体に連結した後体第1節はくびれた腹柄(pedicle)で、途中の第2-8節は膨らんで楕円形の輪郭を描き、最終4節の第9-12節は細くなる[1]。
後体第2と第3節の腹面は各1枚の蓋板(operculum)に覆われ[1]、2対の書肺はその左右の裏側にあったと考えられる[3][4]。後体第2節の蓋板(生殖口蓋 genital operculum)の後端中央、いわゆる生殖孔(gonopore)の部分は楕円形の構造体がはみ出している[1]。
6対の糸疣(spinneret, クモの出糸器官)は後体第4-5節の腹板の後縁から突き出し、前外糸疣(Anterior lateral spinneret)と前内糸疣(Anterior median spinneret)は第4節、後外糸疣(Posterior lateral spinneret)は第5節に配置される[1]。その中で前内糸疣は目立たない突起物であり、前外糸疣と後外糸疣は後体からはみ出るほど発達し、十数節の環状節に細分される[1]。ただし基盤的なクモ(例えばハラフシグモ)に見られる後内糸疣(Posterior median spinneret)は見当たらず[1]、本属の系統群で二次的に退化消失したと考えられる[3]。
後体第12節の末端には鞭状体(flagellum)という鞭のような尾節(telson)がある。体長を超えるほど長く伸び、剛毛のある30-50節ほどの環状節に細分されており、末端数節は紡錘状に膨らんでいる[1]。紡錘状の末端以外の環状節は、個体によって全て同形、もしくは長短を繰り返している[1]。
本属の現生クモとの主な違いは後体に現れており、後体第4節以降の体節に腹板をもつことと尾節を有することが挙げられる[1]。
生態
キメララクネは他のクモのように、昆虫などを捕食する肉食動物であったと思われる[7]。琥珀(天然樹脂の化石)に閉じ込められていたことから、おそらく木の幹かその周辺に生息していたと考えられる[7]。また知られる化石標本は全てがオス成体であることから、これらの個体は、交接対象のメスを探すために外を徘徊する途中で、天然樹脂に囚われたものだと推測される[10]。キメララクネは発達した糸疣をもつため糸は出せるが、その用途は不明で、少なくとも派生的なクモのような、空中の昆虫を獲るための網は作れなかったと考えられる[7]。鞭状体になった尾節は同じ特徴をもつ他のクモガタ類と同様、感覚器の役割を担ったと推測される[7][10]。
分類と発見の意義
| |||||||||||||||||||||||||||||||||||||||||||||||||||
| Wang et al. (2018)、Wunderlich (2019, 2020)、Wunderlich & Müller (2022) に基づいた、クモガタ類におけるキメララクネの系統的位置[1][3][4]。 |



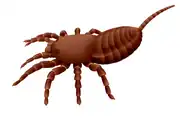 ウララネイダ類の Attercopus fimbriunguis の復元図
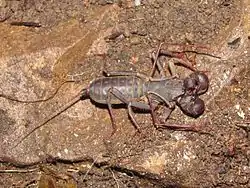
キメララクネが発見される以前では、かつて原始的なクモと考えられ、のちにクモの起源に近いものと区別されるようになった化石クモガタ類がいくつかあり、おもに Idmonarachne とウララネイダ類(Uraraneida)か挙げられる[2]。これらのクモガタ類は疑いなくクモに近いものの真のクモとして認められないのは、不完全な糸疣しか持たないことと、化石証拠の不足により触肢器の有無も不明であることが主要な原因となり、特にウララネイダ類は、クモとして異質であるサソリモドキのような鞭状体も備わっていた[9]。このような尾節はクモとこれらのクモガタ類の共通祖先から受け継いだ祖先形質で、クモに至る系統で退化していたと考えられる[3]。
しかしキメララクネは前述のウララネイダ類のように鞭状の尾節をもつと同時に、クモとして最も重要な共有派生形質である触肢器と発達した糸疣を兼ね備えており[1]、その糸疣と背板の形態も最も基盤的な現生クモである中疣類(ハラフシグモ類)を思わせる[10]。そのため、キメララクネは現生クモと前述のクモガタ類を繋げたミッシングリンクとされ[7]、クモに至る系統は尾節の退化以前に既に触肢器と発達した糸疣を進化させていたことを示し、従来のクモの定義を覆しかねないほどの情報を与えていた[1][3]。クモは3億19万年前の石炭紀後期で既に他のクモガタ類と分岐していたため、1億年前の白亜紀に生息したキメララクネはクモの共通祖先ではなく、代わりにその祖先形質を2億年以上も色濃く受け継いだ基盤的な系統群の生き残りと考えられる[1][7][10]。
キメララクネに対して最初の記載を行った Wang et al. (2018) と Huang et al. (2018) はいずれもキメララクネのクモとの深い関わりを認めるが、それ以降の分類、主にキメララクネはクモに含めるか否かについて意見が分かれており[2][1][6][3]、前者はキメララクネをクモであると認め[1]、後者はキメララクネをウララネイダ類と見なしている[6]。従来のクモの定義は主に触肢器と発達した糸疣を有することに基づいたが、キメララクネの発見によって、尾節の有無もその基準の1つとして検討がなされている(尾節のあるクモはありえる、もしくは尾を欠くこともクモの定義の1つとなる)[1][3]。例えば Wunderlich (2019) や Wunderlich & Müller (2022) はクモ目(Araneida)をキメララクネが所属するキメララクネ科(後述)と残り全てのクモ(狭義のクモ目、Araneae)を含んだ分類群と再定義し、キメララクネ科をキメララクネ亜目(Chimerarachnida)に含めて現生のクモ(Araneae)と区別した[3][4]。
近縁と下位分類
キメララクネ(サソリオグモ属 Chimerarachne)はキメララクネ科(Chimerarachnidae)の模式属(タイプ属)である[3][4]。本科は創設当初では単型としてキメララクネ・インギ(Chimerarachne yingi)のみ含んでいたが[3]、Wunderlich & Müller (2022) では Wunderlich によって2つ目の属パラキメララクネ(Parachimerarachne longiflagellum)が記載され、体長の倍以上に長い尾節で本属から区別されている[4]。なお、Wunderlich (2023) では P. longiflagellum がキメララクネ属として再分類されると同時に、3種(C. alexbeigel、C. patrickmueller、C. spiniflagellum)が新たに記載された[5]。
脚注
- Wang, Bo; Dunlop, Jason A.; Selden, Paul A.; Garwood, Russell J.; Shear, William A.; Müller, Patrick; Lei, Xiaojie (2018-04). “Cretaceous arachnid Chimerarachne yingi gen. et sp. nov. illuminates spider origins” (英語). Nature Ecology & Evolution 2 (4): 614–622. doi:10.1038/s41559-017-0449-3. ISSN 2397-334X.
- Dunlop, J. A., Penney, D. & Jekel, D. 2023. A summary list of fossil spiders and their relatives. In: World Spider Catalog. Natural History Museum Bern, online at http://wsc.nmbe.ch, version 23.5. Accessed on 02 May 2023.
- J. Wunderlich. 2019. What is a spider?. Beiträge zur Araneologie 12:1-32
- Wunderlich, Joerg & Müller, Patrick (2022). “Some fossil spiders in Cretaceous amber from Myanmar (Burma) (Araneida: Chimerarachnida and Araneae)”. In: Wunderlich, Joerg (ed). Five papers on extant spiders (Araneida) as well as on fossil spiders and Ricinulei. Beiträge zur Araneologie (Beitr. Araneol.). Vol. 15. Joerg Wunderlich. pp. 119–173.
- Wunderlich, J. (2023). “Contribution to the spider (Araneida: Araneae and Chimerarachnida) fauna in Upper (Mid) Cretaceous Burmese (Kachin) amber”. Beiträge zur Araneologie 16: 162-215.
- Huang, Diying; Hormiga, Gustavo; Cai, Chenyang; Su, Yitong; Yin, Zongjun; Xia, Fangyuan; Giribet, Gonzalo (2018-04). “Origin of spiders and their spinning organs illuminated by mid-Cretaceous amber fossils” (英語). Nature Ecology & Evolution 2 (4): 623–627. doi:10.1038/s41559-018-0475-9. ISSN 2397-334X.
- “Remarkable Tailed Arachnid Found in Burmese Amber | Paleontology | Sci-News.com” (英語). Breaking Science News | Sci-News.com. 2020年9月2日閲覧。
- Norman I. Platnick, Gustavo Hormiga, Peter Jäger, R. Jocqué, Martín J. Ramírez, Robert J. Raven 著、西尾香苗 訳、ノーマン・I・プラトニック 編『世界のクモ 分類と自然史からみたクモ学入門』奥村賢一・小野展嗣 監修、グラフィック社、2020年11月、26, 40頁。ISBN 978-4-7661-3399-8。OCLC 1227249501。
- Dunlop, Jason A.; Lamsdell, James C. (2017). “Segmentation and tagmosis in Chelicerata” (英語). Arthropod Structure & Development 46 (3): 395. ISSN 1467-8039.
- “Why This Ancient Spider Had a Tail” (英語). National Geographic News (2018年2月6日). 2020年9月2日閲覧。