キリノミタケ
キリノミタケ(Chorioactis geaster)は、子嚢菌門チャワンタケ綱に属し、チャワンタケ目キリノミタケ科に置かれるキノコの一種である。
| キリノミタケ | ||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
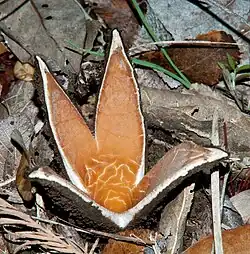 成熟・裂開したキリノミタケ(北アメリカ産) | ||||||||||||||||||||||||||||||
| 分類 | ||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||
| 学名 | ||||||||||||||||||||||||||||||
| Chorioactis geaster (Peck) Kupfer ex Eckblad | ||||||||||||||||||||||||||||||
| 和名 | ||||||||||||||||||||||||||||||
| キリノミタケ | ||||||||||||||||||||||||||||||
| 英名 | ||||||||||||||||||||||||||||||
| Devil's Cigar |
形態
テレオモルフ
幼い子実体は球状であるが次第に伸長して倒涙滴形ないし倒卵形をなし、基部はしばしば短く不明瞭な柄状を呈することがあるが、これを欠くことも少なくなく、表面はくすんだ赤褐色ないし灰褐色で、微毛を密布してビロード状の触感があり、高さ 5-7 cm 程度になる。未熟な段階では楕円体状の頭部も細い円筒状の柄状部もともに白色の菌糸で満たされているが、頭部の中には次第に空隙を生じ、その内面に、胞子を形成する子実層(ハイメノフォア Hymenophore)が作られ始める[1]。じゅうぶんに成熟すれば子実体の先端から垂直に亀裂が入り、4-7枚の裂片となって裂開し、おのおのの裂片は外側に大きく反転して全体の径10-12 cm の星状をなし、内面の子実層を露出する。子実層は肉眼的には平滑あるいはかすかなしわを備え、橙褐色ないし淡赤褐色あるいはクリ色を呈し、無数の子嚢と側糸とで構成される。
子嚢は細長い円筒状で無色・やや厚壁、基部はときにくびれ、さらに尾状に著しく細まっており[2]、頂端に明瞭な円盤状の蓋(オパーキュルム Operculum)を備え、内部に8個ずつの胞子を形成し、外壁はヨウ素溶液で染まらない(非アミロイド性)。一個の子実体の内部に形成される子嚢は、すべてがほぼ同時に成熟して胞子を射出する[3]。胞子は一側がやや平たくつぶれた紡錘状で無色・薄壁ないしやや厚壁、表面は平滑(ただし透過型電子顕微鏡による観察では、ごく微細な点状の窪みを密布する[3])、内部に1-5個の油滴を含み、ヨウ素溶液で呈色しないが、メチルブルーの乳酸溶液で全体が青く染まる。側糸は薄壁、ときに分岐し、はじめはその全長にわたって等径で糸状をなす[4][5]が、老成すれば上端から三番目以下の細胞が球状に膨れ、全体としては数珠状を呈し[2][6][7]、淡褐色の内容物を含む。子実体の髄層は不規則に絡み合った無色の菌糸で構成されており、菌糸はゼラチン化しない。子実体の外皮層は、髄層よりもさらに密に絡み合った菌糸からなり、個々の菌糸は褐色を帯びる。外皮層の構成菌糸の末端からは、厚い細胞壁を備えた黒褐色の毛状菌糸(互いにもつれ合うことは少なく、先端はやや丸みを帯び、外壁への色素粒沈着はない)を生じている。この毛状菌糸の外面は、光学顕微鏡下では滑らかにみえるが、走査型電子顕微鏡のもとでは無数の円錐状の突起におおわれている[8]。
アナモルフ
キリノミタケのアナモルフはKumanasamuha geaster の学名で呼ばれる(後述)が、ジャガイモ=ブドウ糖寒天培地その他の上では分生子を形成せず、ワイツマン=シルヴァ=ハンター氏の寒天培地(WSH培地:硫酸マグネシウム7水塩1 g、リン酸二水素カリウム 1 g、硝酸ナトリウム 1 g、クェーカー社製オートミール10 g、寒天20 gを蒸留水1000 mlに加えて加熱・滅菌する)を用いる必要がある[9]。この培地上に、滅菌したイチイガシ・ツクバネガシ・アラカシ (Quecus glauca Thunb.)・ウラジロガシ (Quercus salicina Blume)・シラカシ(Quecus myrsinifolia Blume)などの葉の断片を載せて25℃前後で培養すれば、葉面にK. geaster の集落が形成され、分生子が作られる。集落は黒褐色を呈し、ビロード状に毛羽立ち、キリノミタケの子実体が発生した木材表面に形成されたものと区別がつかない。また、K. geaster は、キリノミタケの子実体の発生地で集められた樹木の枯れ葉(あるいは生葉)を用い、表面殺菌処理の後で素寒天培地に植えつけることによっても培養することができ、ホソバタブ(Machilus japonica Kosterm.)やアラカシあるいはハナガガシ(Quercus hondae Makino)などの常緑樹の葉面に径 1 mm以下の集落を作り、多数の分生子を形成する[9]。
K. geaster の集落は褐色・綿毛状をなし、基質の上を這う菌糸と空中に立ち上がる菌糸(気中菌糸)とからなる。これらの菌糸はともに淡褐色を呈し、その外面は不規則ないぼ状突起におおわれている。分生子形成構造(コニディオフォア Conidiophore)は気中菌糸に混在して形成され、上部で分岐し、菌糸外面は細かく不規則ないぼ状突起を備える。上部の分岐の先端に、2-15本の分生子形成細胞(上端が細まり、アンプル状ないし瓶状を呈し、暗褐色を呈するが先端部に近づくほど淡色となる)を作り、その上に分生子を形成する。個々の分生子は粘液におおわれることなく乾いており、卵状ないし楕円体状で暗褐色かつ薄壁、粗大ないぼを備え、内部に隔壁を持たない[9]。
アナモルフの形態学的な所見に基づく所属については、Conoplea 属の一種とし、C. elegantula (Cooke) M. B. Ellis に近いものであろうとする説[10]と、Kumanasamuha 属の一種K. kalakadensis Subram. & Bhat であると考える説[11]とがあったが、九州におけるキリノミタケ発生地に自生する、各種の常緑樹の生葉を用いた培養試験によって得られた菌株を詳細に検討した結果Kumanasamuha 属に所属すると結論された。さらにKumanasamuha 属の他の種では、分生子形成細胞は球状ないし楕円体状をなす[12][13][14][15]のに対し、キリノミタケのアナモルフにおいては、分生子形成細胞が特徴的なアンプル状を呈することから、一新種としてK. geaster H. Nagao, S. Kurogi & E. Kiyota の学名が与えられた[9]。なお、Kumanasamuha の別の一種であるK. sundara P. Rag. Rao & D. Rao は、クロチャワンタケ科のオオゴムタケ属(Galiella)に置かれるG. javanica (Schw.) Nannf. & Korf(日本未産)のアナモルフである[16]。
生態
北アメリカではニレ属の一種(Ulmus crassifolia Nutt.)[17]、日本ではハイノキ(Symplocos myrtacea Sieb. et Zucc.)[2][18]・イチイガシ(Quercus gilba Blume)[2]およびツクバネガシ(Quercus sessilifolia Blume)[19]の倒木上、あるいは切り株の周囲(おそらくは地中の根の上)に発生する。北アメリカの産地においては、子実体は、比較的冷涼で降水量にも恵まれた10月から翌年4月までの期間に多く発生するとされる[5]が、日本での子実体の発生は10月上旬[20]から中旬[2]ないし下旬[18]から11月下旬[11]に記録されているが、ごく幼い子実体(原基)の形成は6月にはすでに始まっているという[20]。また、年間の子実体の発生数は、5-6月の降水量に大きな影響を受ける[11]。発生基質となった材は黒変するとともにきわめて堅く、数十年単位できわめてゆっくりと分解されると考えられている[20]。材が黒変した部分には縦横に菌糸が侵入し、導管の壁を破ってその内壁にも蔓延しつつ、周囲の木材細胞を徐々に分解すると推定されるが、材の表面から10 mm 程度より深い部分では黒変は認められず、菌糸の侵入もほとんど観察されない[11]。なお、アナモルフであるK. geaster は、キリノミタケの子実体が発生した木材の表面に、淡褐色のフェルト状ないしマット状を呈する集落として、主に初夏と晩秋とに出現する[10][20]。
子実体が形成され、成熟・裂開して胞子を射出し、さらに消滅するまでの過程については観察された例が少ないが、宮崎県下での例によれば、子実体の裂け目は必ずしも一度に形成されるものではないという。この例では、裂開が開始されてから最後(6本め)の裂け目が入って裂開が終了するまでの所要時間は約2時間半であり、裂開が終了してから4日めには、子実体の収縮と子実層の変色とが起こった。さらに7-8日を経過すると、子実体はいっそう収縮して痛みがさらに目立ち始めるという。この例は、キリノミタケの子実体が成熟する時期としてはやや遅いシーズンに観察されたものであり、上記の過程よりも迅速に裂開・成熟・消滅が進む場合もあると考えられる[11]。なお、同じく宮崎県下での野外観察によれば、成熟・裂開したキリノミタケの子実体から射出された胞子は、周囲の気象条件(特に風力・風向)にもよるが、子実体の周囲2 m、地表からの高さ40 cm(あるいはそれ以上)の範囲にわたって飛散することが確認されている[11]。
日本産のキリノミタケの胞子は、特殊な処理を要することなくジャガイモ=ブドウ糖寒天培地・麦芽エキス寒天培地・コーンミール寒天培地など、菌類の培養に際して常用される各種の培地上で発芽させることができる[2]が、北アメリカ産キリノミタケについては、培地上での胞子発芽や培養には成功していない[9][10]。 日本のキリノミタケの胞子から分離・培養を行った場合、得られた菌株の、ジャガイモ=ブドウ糖寒天培地上における生育至適温度は25℃前後[19]で、胞子の接種後2週間程度で7 cm径のペトリ皿全面に菌糸が蔓延するが、分生子その他の無性繁殖器官はこれらの培地上では形成されない[2][10]。なお、広葉樹(ブナ科・ニレ科あるいはカエデ科など)のおが屑上でも菌糸はよく育ち、イチイガシのおが屑上では、25-30℃の温度域においてごく幼い子実体(原基)が形成されることがある[19]。
分布
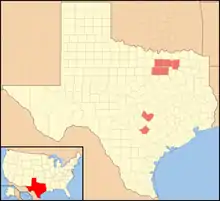
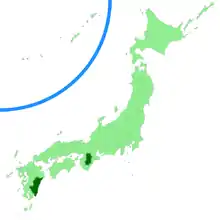
現在までのところ、北アメリカと日本とにのみ限定されて分布するとされている。基準産地は北アメリカのテキサス州オースチンの近郊である[21]が、タイプ標本は所在不明となっている。その後も、その発生はオースチン付近でのみ記録され、北アメリカ国内においてさえ、他の場所からの記録は知られていなかった[6]が、1937年10月、宮崎県須木村(現小林市須木)において、やや未熟でまだ裂開していない子実体が見出され、本種が日本にも分布することが初めて明らかになった[18][22] 。その後、宮崎大学田野演習林(現「田野フィールド(演習林)」:宮崎県宮崎郡田野町)において未裂開のものから完全に成熟して星状をなしたものまで複数の子実体が発見され、顕微鏡的特徴や培養所見が調査された[2]。さらに、宮崎県小林市でも新たな発生地が見出されたが、本種の希少性に鑑み、詳しい地名などはあきらかにされていない[9][11][20]。分子時計の解析結果では、北アメリカに分布する集団と日本に産する集団とが分離してから、少なくとも1900万年以上が経過しているとされている[10]。
分類上の位置づけ
初めはエツキクロコップタケ属(Urnula)の一種とされ、U. geaster Peck の名のもとに新種記載された[21]。のち、子実体の髄層と外皮層とが、ともに不規則に菌糸が絡み合った構造をなすことや、子実体外面の毛の表面が平滑で、色素粒の沈着が認められないことなどを根拠として新属Chorioactis が設立された[4]が、これを認めず、従来のU. geaster の学名を用いるべきであるとの意見もあった[5][6][23][24][25]。しかし、Urnula 属のタイプ種であるエツキクロコップタケとキリノミタケとの間で、子実体の構造・子嚢や側糸の特徴・子実体外面の毛の所見などを詳細に比較した結果、Urnula 属からはやはり独立させるのが妥当であると判断され、再びChorioactis geaster の学名が用いられることとなった[2][7][22][26][27]。U. geaster の学名のもとに提唱された新種設立に当ってはラテン語による記載も記相も与えられていなかったため、ながらく国際藻類・菌類・植物命名規約に規定された有効名の要件を満たしていない裸名のままであったが、Urnula 属からChorioactis 属への所属の再変更に伴ってラテン語記相が与えられ、正式な学名となった[26]。
エツキクロコップタケ属はクロチャワンタケ科(Sarcosomataceae)に置かれるが、この科の菌では子実層は鮮明な色調(白色・赤色・ピンク色・橙色・肌色など)を呈することはなく、幼時から青黒色・黒褐色ないし黒色である。キリノミタケは、エツキクロコップタケ属から分離された後もしばらくはクロチャワンタケ科に置かれた[28]が、のちにはクロチャワンタケ科からも除外され、ベニチャワンタケ科(Sarcoscyphaceae)に分類されることとなった[7][8]。さらに、子嚢の壁の構造がベニチャワンタケ科に置かれる他の属のそれと異なること[8]が報告されるとともに、胞子(および側糸を構成する個々の細胞)が多数の核を含んでいることなどの特徴および分子系統学的情報[29]をも踏まえ、独立したキリノミタケ科(Chorioactidaceae)が設立されるに至った[30]。キリノミタケ科はクロチャワンタケ科の菌から進化したものと考えられており、キリノミタケ属とともにマツバノヒゲワンタケ属(Desmazierella:マツバノヒゲワンタケ D. acicola Lib. など4種を含む)・Neournula 属(N. nordamanensis Paden & Tylutki など2種を含む)・Wolfina 属(W. aurantiopsis (Ellis) Seaver を含め、3種が知られる)[31]の計4属が含まれている[30]。なお、キリノミタケ属はキリノミタケ一種のみからなる単型属である。
類似した分類群
子実体の形質の上からは、類似した菌はほとんどない。クロチャワンタケ科のオオゴムタケ属(Galiella)に分類されているキツネノサカズキ(G. japonica (Yasuda) Otani)は、暗褐色ないしほとんど黒色の子実体を形成し、成熟すれば子実体の先端が放射状に裂開し、赤褐色ないし橙褐色の子実層を露出させることで、ややキリノミタケに似た点があるが、上部の裂片がごく短いために成熟・裂開した子実体の上面観はむしろ歯車状を呈すること・子実体の外皮層が、厚壁で多角形の細胞群で構成されること・側糸が数珠状をなさないこと・胞子の表面に微細ないぼ状突起を備えることなどにおいて異なっている[7][32]。さらに、アカマツ(Pinus densiflora Sieb. & Zucc.)[32][33]やモミ(Abies firma Sieb. & Zucc.)[34]などの、針葉樹の樹皮・枯れ枝・枯れ葉などから発生する生態においても相違する。なお、キツネノサカズキは現在までのところ日本特産種であるとされている。また、その培養上の性質・アナモルフの形質・分子系統学的位置づけについては明らかにされていない。
和名と英名
和名は、未裂開の子実体が先端の尖った倒涙滴形をなし、キリ(Paulownia tomentosa (Thunb.) Steud.)の果実を連想させることによる[18][35]。
基準産地である北アメリカのテキサス州オースチンでは、子実体の外形と、成熟に伴って白煙状に激しく胞子を射出させる性質とに基づき、Devil’s Cigar(悪魔の葉巻煙草、の意)の英名が与えられている[6][36]。
保護状況
非常に偏った分布を示すため、日本では環境省のレッドデータブック上で絶滅危惧I類(CR+EN)にカテゴライズされている[37]。また、宮崎県においても、県独自のレッドデータブックにおいて、同じく絶滅危惧I類に指定している[38]。ただし、具体的な保護対策は特に講じられていない。
1997年には、キリノミタケを「テキサス州のきのこ」として正式に指定しようとの議案が提出された[39]が、この議案は否決されている[40]。
脚注
- Pfister DH. (1978). “Apothecial development in Cookeina tricholoma with comments on some related species”. Mycologia 70 (6): 1253–7. doi:10.2307/3759326. JSTOR 3759326.
- Imazeki, R., and Y, Otani, 1975. Rediscovery of Chorioactis geaster (PECK) ECKBLAD, in Kyushu, Japan. Transactions of the Mycological Society of Japan 16: 222-229.
- Pfister, D. H., and S. Kurogi, 2004. A note on some morphological features of Chorioactis geaster (Pezizales, Ascomycota). Mycotaxon 89: 277-281.
- Kupfer, E.. M., 1902, Studies on Urnula and Geopyxis. Bulletin of the Torrey Botanical Club 29; 137-144.
- Heald, F. D., and F. A. Wolf, 1910. The structure and relationship of Urnula geaster. Botanical Gazette 49; 182-188.
- Seaver, F. J., 1937. Photographs and descriptions of cup-fungi - XXV. Urnula geaster. Mycologia 29: 60-65.
- 大谷吉雄、1980.日本産ベニチャワンタケ亜目.日本菌学会会報21: 149-179.
- Bellemère, A., Meléndez-Howell, L. M., Chacun, H., and M. C. Malherbe, 1994. Les asques du Chorioactis geaster (Ascomycetes, Pezizales, Sarcoscyphaceae), leur déhiscence et leurs ascospores: étude ultrastructurale. Nova Hedwigia 58: 49-65.
- Nagao, H., Kurogi, S., Kiyota, E., and K. Sasatomi, 2009. Kumanasamuha geaster sp. nov., an anamorph of Chorioactis geaster from Japan. Mycologia 101: 871-877.
- Peterson, K. R., Bell, C. D., Kurogi, S., and D. H. Pfister, 2004. Phylogeny and biogeography of Chorioactis geaster (Pezizales, Ascomycota) inferred from nuclear ribosomal DNA sequences. Harvard Papers in Botany 8: 141-152.
- 黒木秀一・長尾英幸・清田悦司、2007.絶滅危惧菌類「キリノミタケ」の経年発生調査.宮先件総合博物館研究紀要28: 7-40.
- Rao, P. R., and D. Rao, 1964. Kumanasamuha a new genus of Dematiaceae. Mycopathologia Mycological Application 22: 330–334.
- Hunter, L. J., and W. B. Kendrick, 1977. Kumanasamuha nova-zelandica, a new dematiaceous hyphomycete from New Zealand. New Zealand Journal of Botany 15: 585-588.
- Raman, T., Rao, B. R., and D. Rao, 1978. A new species of Kumanasamuha. Current Science (India) 47:470–471.
- Subramanian, C. V., and D. J. Bhat, 1989 [1987]. Hyphomycetes from South India I.. Some new taxa. Kavaka, 15: 41–74.
- Wang, Y.-Z., 2011. The Sarcosmataceous Discomycetes in Taiwan. Fungal Scoence 26: 49-56.
- Keller, H. W., and K. C. Rudy, 1996. Ecological and life history observations of a rare ascomycete, Chorioactis geaster, the devil's cigar Inoculum 47 (3): 15.
- 今関六也、1938.奇菌 Urnula geaster Peck 九州ニ産ス.植物研究雑誌14: 680-684.
- 中島豊,・清田悦司、2000.キリノミタケについて.日本林学会九州支部研究論文集53: 159-160.
- 黒木秀一・長尾英幸・清田悦司、2001.絶滅危惧菌類「キリノミタケ」の発生状況とその環境調査.宮崎県総合博物館研究紀要23: 23-45.
- Peck, C. H., 1893. Report of the state botanist (46). Annual Report of the New York State Museum 46: 39.
- 今関六也・本郷次雄、1973. カラー自然ガイド きのこ. 保育社. ISBN 978-4586400089.
- Seaver, F. J., 1928. The North-Ameriican Cup-Fungi (Operculates). Published by the author, New Nork.
- Seaver, F. J., 1939. Urnula geaster. Mycologia 31: 367-368.
- 川村清一、1954. 原色日本菌類図鑑(第七巻 嚢子菌類).風間書房、東京.
- Eckblad, F.-E., 1968. The genera of the opeculate Discomycetes. A re-evaluation of their taxonomy, phylogeny and nomenclature. Nytt Mag.asin for Botanik 15: 1-191.
- Korf, R.P., 1972. Synoptic key to the genera of the Pezizales. Mycologia 64: 937-994.
- Korf, R. P., 1973. Discomycetes and Tuberales. in The Fungi. An Advanced Treatise (ed. Ainsworth, G. C., Sussman, A. S., and F. K. Sparrow) 4A: 137-144. Academic Press, New York. ISBN 0120456044.
- Harrington, F. A., Pfister, D. H., Potter, D., and M. J. Donoghue, 1999. Phylogenetic studies within the Pezizales.I. 18S rRNA sequence data and classification. Mycologia 91: 41-50.
- Pfister D. H., Slater, C., and K. Hansen, 2008. Chorioactidaceae: a new family in the Pezizales (Ascomycota) with four genera. Mycological Research 112: 513-527.
- Seaver, F.J., 1937. Photographs and descriptions of cup-fungi – XXVIII. A proposed genus. Mycologia 29: 678-680.
- 大谷吉雄、1982.興味深い日本産チャワンタケ2種について.日本菌学会会報23: 379-384.
- 安田篤、1921.菌類雑記(109).植物学雑誌35: 92.
- 井口 潔,1985.東京大学千葉演習林の菌類相(1).盤菌類チャワンタケ目. 清澄 11:13-15.
- 今関六也・本郷次雄、1965.続原色日本菌類図鑑.保育社、大阪. ISBN 978-4-586-30042-6.
- Rudy, K. C., and H. W. Keller, 1996. The rare and fascinating Devil's Cigar, Chorioactis geaster. Mycologist 10: 33–35.
- 環境省自然保護局野生生物課(編)、2000.改訂・日本の絶滅のおそれのある野生生物-レッドデータブック-9.植物II(維管束植物以外).財団法人 自然環境研究センター、東京. ISBN 4-915959-72-4.
- 宮崎県(編)、2011.宮崎県の保護上重要な野生生物(2010年度版) 改訂・宮崎県版レッドデータブック.鉱脈社、宮崎. ISBN 978-4-86061-382-2.
- 75(R) SCR 27 Engrossed version - Bill Text. Texas Legislature.
- Kelso. J., 2006. Texas Curiosities, 3rd: Quirky Characters, Roadside Oddities & Other Offbeat Stuff (Curiosities Series). Guilford, Connecticut: Globe Pequot. ISBN 0-7627-4109-0.
外部リンク
- キリノミタケ Chorioactis geaster(奈良県産) -きのこ雑記.
- キツネノサカズキ Galiella japonica(千葉県産) -KinokoLabo.
- キツネノサカズキ Galiella japonica(兵庫県産) -但馬変人倶楽部-但馬の自然-.