クリ胴枯病
クリ胴枯病(クリどうがれびょう、英名:chestnut blight)とはクリ属の樹木に発生する感染症である。
クリの病気の中でも最も有名で、症状も重いために恐れられているもののひとつ。単なる一つの病気としてだけでなく、偶発的に侵入したアメリカ大陸において猛威をふるい抵抗性のない現地のクリ類を壊滅状態まで激減させたことでよく知られる。このために本病にニレ立枯病(オランダニレ病)と五葉マツ類発疹さび病を加えた3つを樹木の世界三大病害と呼ぶ。
症状
葉の萎れ、および幹や枝に形成される病斑(canker)などと呼ばれる褐色に変色した病変部[1][2]が特徴。病班は滑らかな樹皮を持つ若い木や細枝では分かりやすいが、年老いて樹皮の凹凸が目立つと分かりづらい。病班には大きく分けて急速に拡大する急性型とゆっくり拡大する慢性型の2つが知られており、一般に前者は予後が悪い。急性型の患部は平滑であるが、慢性型ではクリ側の抵抗の結果患部の膨張が見られる。重症例では病変部より上部が急激に枯死する。落葉は見られず葉を付けたまま枯れるのも特徴とされる。病変部には凹凸状の発疹が形成される。これは病原菌の子実体であり新たな感染源となる。
病変部直下から萌芽が見られることも多いのも外見的特徴の一つ。病勢は乾燥と高温が続く晩夏から初秋の時期に最も強くなり、抵抗性のあると言われる種類でも急速に枯れることがある。
日本産種の苗木を観察した結果では発病部位は梢端部や接ぎ木の接合部分などに多いという。また、感染はしているが外見上症状のない状態(不顕性感染)の個体がかなり含まれていると見られ、植え替えなどの刺激で発病する例が多いという[3]
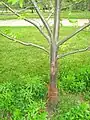 胴枯病を発病したアメリカグリ。幹下方に褐色に変色した病変部が見える。
 幹に見られる発疹状の病原菌子実体
 罹病木切断面。外縁部に変色が見られる
原因
クリ胴枯病菌Cryphonectria parasitica (シノニム Endothia parasitica)の感染による。この病原菌は幹や枝の傷口からクリの樹体内に侵入する[1]。
この菌はクリの傷口から侵入すると、シュウ酸を作り出して周囲を酸性化し形成層を攻撃しこれを殺して増殖する。形成層が殺された部分はクリが防御反応でコルク形成層を作るために腫れあがるように膨らんでくる[4]。幹や枝の形成層を一回り全て殺されてしまうと、水を吸い上げられなくなることにより病変部より上部が枯死する。
病原菌 Cryphonectria parasitica
ニューヨークで胴枯病が報告された翌年の1906年、同じくニューヨークの植物園に勤めていた菌類学者William Murrillが原因菌を分離し、新種Diaportha parasiticaと名付けて報告した[1]。1912年Andersonらは属が違うのではと考え、Endothia属に含まれるEndothia parasiticaを提案、この名前が長らく通用していた。1980年代に入りBarrはMurrillの分類を再評価しCryphonectria属に含まれるCryphonectria parasiticaを提案した。現在はCryphonectriaの方を使うことが多いが、Endothiaを使う者も一定数いる。
ニューヨークで被害が明らかになった当初から、この病原菌はアジア原産ではないかと見られていた[5]。やがて同種菌が中国[6][7]および日本[8]から発見され、この仮説が正しかったことが証明された。公式に論文になったのは1904年のニューヨークでの被害以後であるが、その10年ほど前からこのような被害があったと見られている。その1890年前後ではこの周辺で特に日本産種(Castanea crenata)を用いて品種改良をしようと同種の取引が活発に行われていた記録があり、これに乗じて侵入してきた可能性が高いと見られている。中国産種(C. mollisima)はアメリカに持ち込まれたのはやや遅くまた場所もニューヨークではなくワシントン周辺であったという。
クリの防御手段の一つとしてタンニンという化学物質がありこの組成や量がクリの抵抗性を左右しているのではないかと言う見方は古くからあり、多数の研究が行われた。ピロガロールタンニン(今は加水分解型タンニンの名称が一般的)を多く含む中国種は強い抵抗性を持つのに、カテコールタンニンとピロガロールタンニンを含む日本産種やアメリカ種は弱いという報告がある[9][10]。クリ胴枯病菌はクリに含まれるタンニンを分解する酵素を持つ[11][12][13]。
生態系・人間生活への影響
クリ類は萌芽力が高く、根さえ残っていれば芽を出して再生する。また、この病気は根の組織を侵さないために、発病し枯死したように見えても個体としての死には至らず萌芽で再生することが可能である。実際にアメリカの森林ではこのようにして若いクリとなって多数が残っていると言われている。このようなクリはある程度大きくなると病原菌の再感染を受け再び枯死する。このような状態を繰り返すだけでは十分な果実や木材が供給されずそれを利用して生きているものには影響があると考えられる。実際にアメリカではクマに対する影響の研究がいくつか報告されている。
また、クリの木材は非常に腐りにくいために各分布地では各種の建築や鉄道の枕木に使われる。日本の国鉄の資料ではクリ材を使用した枕木の寿命は防腐加工なしでも10年弱になるという報告もある[14]。特にアメリカグリはクリ属の中でも最大級になる種で、現地では他の広葉樹以上に高値で取引されていた。しかし胴枯病の蔓延によって優良大径木は姿を消し、稚樹は前述のように満足に育たずクリ材の市場は崩壊した。(腐りにくいために現在も再生材などの形で手に入れることは可能なようである。) クリ材が腐りにくいのは材に豊富に含まれるタンニンによるとされる。アメリカでは皮をなめすのにクリ由来のタンニンが使われていたが、胴枯病の蔓延はこの市場も壊すなど意外なところに影響が出ることになった。
発病要因
クリの種類
クリの種類により感受性に差がある。欧米産種は感受性が高く、特にアメリカ産種は強感受性である。東アジア産の種はこの病気に対して抵抗性を持つ。
その他の要因
クリの木の健康状態が悪い場合や傷口がある場合は感染・発病の誘因になる。土壌では特に水分状態に左右され、乾燥しやすい南向きや西向きの斜面ではこの病気がよく見られるという。また窒素分は多すぎても少なすぎてもよくないと言われている。 剪定による傷口は病原菌の門戸になっているが、かといって剪定をせずに枝を伸び放題にしたりするのも良くない。
寒冷地では凍害の影響も言われる。幹内の水分が凍ることで膨張し幹に裂傷を付けると暖かくなった時に病原菌の感染を受けてしまう。商業的にクリを栽培する場合、接ぎ木苗を用いることが多いが前述のように接合部が侵される例が多く接合がしっかりしているかを確認することが必要である。凍害による胴枯病はクリだけでなくモモなどでも同様の被害が報告されている[15]。 植物の凍結耐性は色々な要因で決まっていると言われている。気温・日長などを感じ取り、体を凍結に適応できる状態に変化させているという説が一般的である。準備が不十分な時期に凍結したり、逆に春先に気温が急に上がりそのあと低下すると細胞は障害を受けやすい。生枝を-3℃で3週間処理すると劇的に耐凍性が高まるという報告がある[16]。北国の多くの樹木では2段階に分けて耐凍性を獲得しているようであり、気温10~20℃の環境下に置かれることで簡単な耐凍性を手に入れ、さらに-5~0℃に晒されることにより強い耐凍性を手に入れる[17]。
対策
2種の水銀剤を用いた苗木定植前の薬剤処理による感染・発病予防では同じ水銀系農薬でも効果に大きな差が出ており、発病数0のものもあれば、無処理区と変わらない程度の効果しかないものに二分された[3]。
ただし本病における薬剤による感染予防は病原菌の活動期間が長いこと、クリの土地生産性の低さが相まってコスト的な課題が大きいと言われる。たとえば日本で問題となっているマツ材線虫病(松くい虫)の場合、病原体の媒介者であるカミキリムシ成虫が羽化してくる初夏に一回だけ殺虫剤を散布すれば感染予防になるが、春から秋まで随時病原菌の感染が起こる本病の場合はこの方法が採りづらいという。また、クリは近年においてもhaあたりの収量が1t程度と他の果樹に比べ著しく低い(因みに柑橘類やリンゴで同20t弱、モモが12t、梅で5t程度)[18][19]。このため感染予防として剪定傷に殺菌剤を塗る程度で大規模な農薬散布にはなっていない。
発病後の対策としては抵抗性のあるアジア産種では、初期病変部の切除やボルドー液の散布も有効とされる。しかしながら感受性の高い欧米種や、アジア種であっても重症化した場合は打つ手がなかった。1960年代以降、下に挙げるようなウイルスによる病原菌の弱体化という新しい現象が明らかになり、これの応用による治療は欧米種にもよく効くので新しい流れになっている。
ウイルスによる病原菌の弱体化
1950年代、イタリアにおいて奇妙なヨーロッパグリ(強感受性種)が発見されたことがイタリア人学者Antonio Biraghiによって報告された。萌芽更新した芽も5年もしないうちに菌に再感染して枯死を繰り返すような胴枯病激害地であるにもかかわらず、その個体には胴枯病の典型的症状がほとんど見られないばかりか病気が治癒した痕跡さえ残っていた。フランス人菌類学者Grenteらがこの個体からサンプルが採取し分析した結果、このクリの病原菌はある種のウイルスに感染しており弱体化していたことが報告された[20]。この弱体化現象はhypovirulence(病原性の低下)、ウイルスはCryphonectria hypovirus(通称CHV、以下この名称を使用)と名付けられた。
CHVをはじめとした菌類に感染するウイルスは「マイコウイルス」と呼ばれ、基礎・応用問わず各分野での研究が進んでいる[21][22][23]。 。CHVは著名な病害の特効薬であるという点以外にも他のウイルスに比べ、宿主・ウイルス共にゲノム解読済み、生活環が短い、感染すると宿主菌に可視的な変化が出るなどいくつかの利点があり、マイコウイルス分野でのモデル生物として活用されている。
CHVの応用利用についても研究がすすめられ、強病原性菌に感染したクリに対してCHV陽性(感染済み)の弱病原性菌を接種してやるとCHVが強病原性菌に感染し弱病原性菌に変化、結果としてクリの症状が緩和され治癒するなどの方法が実用化されている。しかし、逆にCHV陽性弱病原性菌を事前接種することでクリに免疫をつけようというワクチンのような試みは上手くいっていない。
1977年にはアメリカにおいても弱病原性菌が発見され、鑑定の結果ヨーロッパのものとは違う系統だと判明した。
抵抗性種の植栽・開発
抵抗性の種を植えることも有効。日本産のクリ(Castanea crenata)は胴枯病には比較的強いと言われるが、品種によってはやや弱いものがある。胴枯病の被害が酷いアメリカでは胴枯病に強い遺伝子をアメリカグリ(C. dentata)に組み込むために、アジア産のクリと交配させることも行われている。1950年代植物学者のダンスタン博士(Dr. Robert T. Dunstan)がシナグリ(C. mollisima)とアメリカグリを交配して生み出された抵抗性雑種はDunstan chestnut(ダンスタンの栗)と呼ばれる。この雑種は遺伝子の半分がアジア産のクリであるが、最近では雑種に対してアメリカグリと戻し交配を行うことで抵抗性を持ちつつも、極力アメリカグリの遺伝子を残した雑種が生み出されている。 交配で遺伝子を組み込むのではなく、遺伝子組み換え技術によって効率的に耐性遺伝子を組み込むという研究も行われている。例えばコムギの持つシュウ酸耐性遺伝子をアメリカグリに組み込む研究に着手するということなどが報道されている。
アメリカにおける歴史
クリ胴枯れ病は1900年ごろにクリ材やクリの木にまぎれて北米に偶然にもたらされたと考えられている。1905年にこの病気を研究していたアメリカの菌類学者William Murrillは病原菌を分離した。
クリ胴枯れ病菌のアジア産のクリへの感染は1904年にニューヨーク州ロングアイランド(Long Island)で確認された。アメリカ北部に分布していた40年生に満たない40億本近い健全なクリが壊滅的な被害を受けた[24]。カリフォルニア州や太平洋岸北西部(Pacific northwest)に少数の集団が残るのみである。この病気のために、アメリカグリ材は10年間で市場から姿を消した。だが、まだ再生材(Reclaimed lumber)として手に入れることは可能である。現在残っている木は根元や根に菌に抵抗性のある台木を使用している。たくさんのアメリカグリの稚樹がまだ生き残っている。平行して病気に免疫のあるアジアのクリからの必要最小限の遺伝子の導入も行われた。このような努力は1930年代に始まり、クリの木を国に取り戻すためにマサチューセッツ州[25]をはじめ全米各地で今も続いている。1940年までにはアメリカクリの成木はこの病気の蔓延でほとんど絶滅状態となった[26]。
アパラチア山脈(Appalachian Mountains)の周辺では雑多な広葉樹4本に対してアメリカグリ1本が同等の価値と評価されていた。成木は真っ直ぐな幹で枝下高15m(30mに達するものも時々見られた)で、樹高は60m、胸高直径40㎝に達した。菌による胴枯病は40億本ものアメリカグリを枯死させ、東海岸ではまたたく間にその数を減らした。アメリカグリの一種チンカピングリ(Castanea pumila)は特に胴枯病に感受性が強い。ヨーロッパグリや西アジアのクリも感受性が強いがアメリカ産のものほどではない。病気に抵抗性を持つニホングリ(Castanea crenata)やシナグリ(Castanea mollissima)などの抵抗性品種はアメリカ産品種と掛け合わせて病気抵抗性品種を生み出すために使われている[27]。
アメリカグリ財団(The American Chestnut Foundation)では抵抗性を得たクリについて、21世紀初頭にも元々の分布域に再導入することを計画している。
関連項目
樹木の世界三大(四大)病害
- 五葉マツ類発疹さび病 - アジア産の病原菌がアメリカ大陸のマツに壊滅的被害をもたらしている病気
- ニレ立枯病(オランダニレ病)-アジア産の病原菌が欧米のニレに壊滅的被害をもたらしている病気
- クリ胴枯病-本項で解説
- マツ材線虫病-通称マツ枯れ病・松くい虫。アメリカ産の病原線虫がアジア・ヨーロッパの松に壊滅的被害をもたらしている病気
脚注
- William A. Murrill,(1906) A new chestnut disease. Torreya 6(9): 186-189.
- Sandra L. Anagnostakis, (1987) Chestnut blight: the classical problem of an introduced pathogen. Mycologia 79(1): 23-37.
- 内田和馬 (1971) クリ胴枯病の苗木による伝播とその防除. 関東東山病害虫研究会年報18
- 内田和馬(1981)クリ胴枯病の発生生態とその防除. 農林水産技術研究ジャーナル4(1),43-47.
- Metcalf H. and J. F. Collins (1911) The control of the chestnut bark disease. U.S. Department of Agriculture farmer's bulletin. 467
- D. Fairchild, (1913) The discovery of the chestnut bark disease in China. Science 38(974):297-299.
- Shear C. L., and N. E. Stevens (1913) The chestnut-blight parasite (Endothia parasitica) from China. Science 38:295-297.
- Shear, C. L. and N. E. Stevens (1916) The discovery of the chestnut-blight parasite (Endothia parasitica) and other chestnut fungi in Japan. Science 43:173-176
- Nienstacdt, H. 1956- Tannin as a factor in the resistance of chestnut, Castanea spp , to the chestnut blight fungus, Endothia parasitica (Murr.) A. and A. Phytopathology43: 32-38.
- 小林淳夫(1953)抄録-クリ胴枯病抵抗性の一因予としてのタンニン. 日本林學會誌 35(9): 305-306.
- 寺下隆喜代(1956)抄録-タンニンおよびフエノールを分解するクリの胴枯病菌の酵素について.日本林學會誌 38(1):44
- G. Bazzigher, (1957) Tannin- und phenolsaltende Fermente dreier parasitischer Pilze. Phytopathology29:299-304.
- 寺下隆喜代(1957)抄録-クリの胴枯病菌ほか2菌に存在するタンニンやフエノール類を分解する酵素について.日本林學會誌 39(11), 463
- 日本林業技術者協会編著. (1993). 新版林業百科事典. 丸善. 東京
- 宮本善秋ら(2004)岐阜県飛騨地方におけるモモの胴枯様障害の発生実態. 岐阜県中山間農業技術研究所研究報告(4)21-26.
- 酒井昭 (1964)木本類の耐凍性増大過程10: 枝の耐凍性を効果的にたかめる温度. 低温科学生物編22: 29-50.
- 斎藤満(1974)樹木の耐凍性の調べ方. 北海道立総合研究機構森林研究部光珠内季報23(1): 1-5.
- 農林水産省統計資料
- 元木靖 (2008) グローバル経済下における日本のクリ生産の動向と技術革新. 立正大学経済学会季報. 58(1):99-130.
- Grente J., (1965) Les forms Hypovirulence d’Endothia parasitica et de espoirs de lutte contre le chancre du chataignier. C.R. Hebd. Seances Acad. Agr. France51:1033-1037.
- Willium L. MacDonald, and Dennis W. Fullbright(1991) Biological control of chsetnut blight:Use and limitations of transmissible Hypovirulence. Plant desease75(7):656-661.
- 千葉壮太郎・近藤秀樹・兼松聡子・鈴木信弘 (2010) マイコウイルスとヴァイロコントロール. ウイルス60(2):163-176.
- 鈴木信弘.(2014) マイコウイルス宿主としてのクリ胴枯病菌~知られざるマイコウイルスの世界を紐解く新たな解析ツール~. ウイルス64(1): 11-24.
- The American Chestnut Foundation - Mission & History.
- The American Chestnut Returns. By Fred Thys, for WBUR news. July 18, 2008.
- Rogerson CT, Samuels GJ. (1996). Mycology at the New York Botanical Garden, 1985-1995. Brittonia 48(3):389-98
- New RHS Dictionary of Gardening. By A. Huxley ed. 1992. Macmillan ISBN 0-333-47494-5.
出典
- Wikipedia 英語版 en:Chestnut blight
- Wikipedia フランス語版 fr:Chancre de l'écorce
- 林業百科事典(日本林業技術協会著、丸善)
- 林業技術ハンドブック(全国林業改良普及協会)