テムノドントサウルス
テムノドントサウルス(学名:Temnodontosaurus)は約2億年前から1億7500万年前にあたるジュラ紀前期ヘッタンギアンからトアルシアンにかけて生息した魚竜の絶滅した属。ヨーロッパに分布しており、イングランド、フランス、ドイツ、ベルギーから化石が出土している。開けた海洋の深い海域に生息したとされていた[1]が、ドイツでの標本個体は浅い海域に生息した可能性があるという研究結果が2018年に発表された[2]。ブリストル大学の古生物学者ジェレミー・マーティンはテムノドントサウルスを「生態学的に最も異なる魚竜の属の1つ」として評価している[3]。
| テムノドントサウルス Temnodontosaurus | |||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
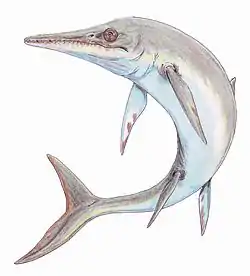 テムノドントサウルス | |||||||||||||||||||||||||||
| 地質時代 | |||||||||||||||||||||||||||
| ジュラ紀 | |||||||||||||||||||||||||||
| 分類 | |||||||||||||||||||||||||||
| |||||||||||||||||||||||||||
| 学名 | |||||||||||||||||||||||||||
| Temnodontosaurus Lydekker , 1889 | |||||||||||||||||||||||||||
| 種 | |||||||||||||||||||||||||||
|
テムノドントサウルスは最大の魚竜の1つである。テムノドントサウルスの全長の最大推定は9メートル[4]から12メートル[5]の範囲に収まる。最大の推定値であれば、かつて最大の魚竜と考えられていた巨大な魚竜ショニサウルス・ポピュラリスに匹敵する。
テムノドントサウルスは非常に大きい眼で知られており、直径は20センチメートルと推定され、既知の動物で最大とされている[6]。ジュラ紀の魚竜の特徴として尾が湾曲しているほか、顎にある連続した溝には円錐形の歯が並んでいた[7]。
テムノドントサウルスの種の数は年によって変動があり、Christopher McGowan は1992年時点でテムノドントサウルスは13種存在するとしている[7]。2000年には Michael Maisch がテムノドントサウルス・プラティオドン、テムノドントサウルス・トリゴノドン、テムノドントサウルス・アクティロストリス、テムノドントサウルス・ヌエルティンゲンシスをテムノドントサウルスの有効な種として列挙した[5]。
形態
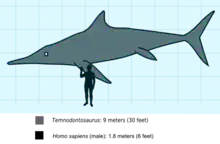
テムノドントサウルスの体型はマグロに類似し、長く頑強で細身であった[7]。尾は胴部と同等の長さかあるいはさらに長かった[5]。椎骨の数はおよそ90を下回る[8]。第1頚椎と第2頚椎は癒合し、遊泳中に安定性を得ていた[9]。腹肋骨は存在しなかった[9]。
前肢と後肢はほぼ同じ長さで、かなり細長かった[6][7]。これは後肢の2倍以上の長さの前肢を持つオフタルモサウルス科のような三畳紀以降の魚竜には珍しい形質である[3][7]。また腰帯が縮小しておらず、これも三畳紀以降の魚竜には珍しい[6]。他の魚竜と同様、指骨は複雑化していたが[6]、イクチオサウルスが主要な指骨を6 - 7本持つ一方でテムノドントサウルスのものは3本に過ぎなかった[7]。また、後軸方向に付属の指骨が存在した[5]。ヒレの遠位の骨が相対的に丸い形状を構成するのに対し、近位の骨はモザイク状になっていた[5]。ヒレの前側の縁には窪みが2つ存在した[5][6]。対になったヒレは櫂や推進装置の代わりに舵取りと安定化に用いられた[6]。腰帯は3つの骨から構成される[6]。三角形の背ビレが存在した。

他の魚竜と同様にテムノドントサウルスの視力は高く[10]、狩りの際には主要な感覚として視覚を用いていた。テムノドントサウルス・プラティオドンの眼の測定から、テムノドントサウルスの眼は魚竜、さらには計測された全ての動物の中で最大である[10]。ただし眼球の大きさに関わらず、眼球が向く角度の関係で頭部の直上には死角が存在した。テムノドントサウルスには強膜輪があり、眼球に強度がもたらされていた[7]。テムノドントサウルス・プラティオドンの強膜輪は最低で直径25センチメートルに達する[10]。
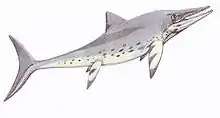
テムノドントサウルスの頭部には長く頑強な吻部および狭窄した眼窩が存在する[6]。また上顎骨[5]・頬骨[6]・後眼窩骨[5]が長い。基蝶形骨上の頸動脈孔は副蝶形骨で分断されてペアをなしている[5]。テムノドントサウルス・プラティオドンの頭骨は約1 - 1.5メートルと計測されている[4]。
テムノドントサウルス・ユーリケファルスは他の種と比較して短い吻部と上下に高い頭部を持ち、餌の破砕に役立てていた可能性がある[7]テムノドントサウルス・プラティオドンの吻部は細長く、背側に向かってわずかに湾曲していた[5]。テムノドントサウルス・トリゴノドンの吻部も細長いが、こちらは腹側に向かってわずかに湾曲していた[5]。テムノドントサウルス・アクティロストリスの吻部も細く、先端はさらに尖っていた[5]。
テムノドントサウルスは尖った円錐形の歯を連続した溝の中に数多く持っており、この歯の生え方は aulacodonty として知られている[6][7]。典型的なテムノドントサウルスの歯には2 - 3本の隆起が存在する[6]が、テムノドントアウルス・ヌエルティンゲンシスには存在しない[5]。テムノドントサウルス・ユーリケファルスは膨らんだ歯根を有する。
カーディフ国立博物館に所蔵されているテムノドントサウルスの頭骨標本にCTスキャンをかけ、内側と外側から筋肉の量と分布が解析された。この結果、顎の筋肉は4つのグループに大別され、5000立方センチメートルの体積があったことが判明した。また、顎は第3種てこのように作用し、顎関節が支点として後方に存在して下顎が回転して開く。筋肉が力点として下顎を惹きつけ、獲物に打撃を与える作用点では莫大な運動が得られる。その代わり最大の咬合力は顎の後方で得られ、その力はティラノサウルスには及ばないもののイリエワニやホホジロザメを上回る30,000ニュートン(約3,000キログラム)以上であったと推測されている[11]。
テムノドントサウルスの尾は角度35°未満で弱く湾曲しており[5]、尾ビレは三日月状[5]または半月状[6]に描写される。尾ビレは2つの突出物から構成され、上部が骨に支えられていない一方で下部は骨に支えられている[7]。尾は運動のための主要な推進力に使われ、ヒレは推進に関与しなかった[5]。
生態
摂食
テムノドントサウルスはジュラ紀前期の海において頂点捕食者であった[3]。主に魚類・首長竜・他の魚竜といった脊椎動物を主な食糧としており、頭足類を捕食した可能性もある[7]。なお、脊椎動物を常食としていたことが提案されたジュラ紀の魚竜はテムノドントサウルスのみである[3]。シュトゥットガルト自然史博物館に所蔵されているテムノドントサウルス・トリゴノドンの標本の腹部からはステノプテリギウスの遺骸が確認できる[12]。また、頑丈な歯と深い顎により、テムノドントサウルス・ユーリケファルスは他の魚竜のような大型の獲物を捕食していたと推定されている。一方でテムノドントサウルス・プラティオドンのような種は鋭いが控えめな大きなの歯を有し、魚のような小型の獲物や体の柔らかい獲物を捕食していた可能性がある[8]。テムノドントサウルスは捕食の際、口を開けた状態で獲物に向かって前進して摂食していた可能性が高い[13]。顎の動作は俊敏であり、捕食の際には咀嚼ではなく噛み付く手法を取っていたと考えられている[7]。
遊泳
他の魚竜と同様にテムノドントサウルスの遊泳速度は高速で[7]、テムノドントサウルスのようなジュラ紀の魚竜は柔軟な尾の先に存在する尾ビレを使って遊泳していた[9]。テムノドントサウルス・トリゴノドンの体は長く薄い上に非常に柔軟性が高く、椎骨の総数が多く局部的な差も小さかった[9]。巨大なヒレを櫂として用いていた[9]。遊泳スタイルはマグロに類似し、ウナギのように遊泳した基盤的な魚竜とは異なる[6]。半月状の尾ビレや、尾よりも胴部が短いことなどが、テムノドントサウルスなど三畳紀以降の魚竜の特徴として挙げられる[6]。
外傷
2018年10月24日に発表された論文でテムノドントサウルスの標本41個の解析が行われ、最も多く観察された病変は同種間での競争に端を発する外傷であり、頭骨・肋骨・胸骨・前肢に集中し、回復に向かう兆候が見られた。肋骨の骨折は大抵の標本において頭部など他の部位の外傷の数と相関が確認され、頭部の外傷は絶滅したクジラ類やモササウルス類のものと類似する。ただし、他の大半の海生有羊膜類とは異なりテムノドントサウルスの脊柱には外傷が見られなかったことから、これらの頂点捕食者には機能的な差異が存在したと考えられている[2]。
さらにドイツ南部から出土した標本には減圧症による阻血性壊死の痕跡が確認されず、この生物が浅海域に生息していた可能性がある。イギリスから出土したものには減圧症の症状が見られるため、両者には生息環境の違いがあったと考えられる[2]。
発見
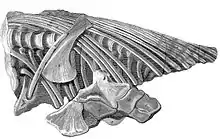
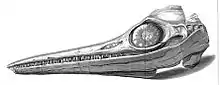
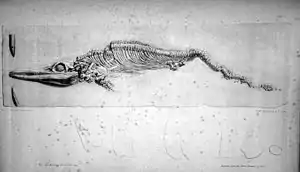
最初に発見された魚竜の頭骨はテムノドントサウルス・プラティオドンのものだった。その標本 BMNH 2149 は1811年にジョセフ・アニングがライムレジスのリアス海岸にて発見した[14]。骨格の残りの部分は1812年に彼の妹メアリー・アニングが発見したが、長きにわたって紛失されていた[14]。その後化石はエヴァラード・ホームが記載し、これが魚竜についての初めての科学的な記載であった。テムノドントサウルス・プラティオドンはテムノドントサウルスの模式種であり、かつ最も一般的な種である[7]。模式標本の頭骨はロンドン自然史博物館に所蔵されている[14]。標本はもともとイクチオサウルス・プラティオドンと命名されていたが、後にテムノドントサウルスに改名された[15]。
分類
テムノドントサウルスはテムノドントサウルス科に属する唯一の属である[16][17]。テムノドントサウルス科は C. McGowan により記載され[5]、Martin Sander が2000年に命名した単系統のグループ新魚竜類に属する。このグループにはテムノドントサウルス科のほかにレプトネクテス科とスエヴォレヴィアタン科が含まれる[5]。テムノドントサウルスは三畳紀以降の魚竜の中では最も基盤的なものの1つである[18]。
下のクラドグラムは Maisch and Matzke (2000)[19]および Maisch and Matzke (2003)[20]に基づき、分類群の名称は Maisch (2010)[21]に従う。
| メリアノサウルス類 |
| |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
種
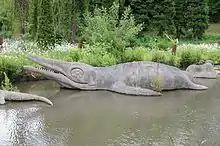
テムノドントサウルス・プラティオドンは1822年に William Conybeare によりライムレジスの BMNH 2003 から命名された[14]。この標本はロンドン自然史博物館に所蔵されている[14]。テムノドントサウルス・プラティオドンはヘッタンギアン後期からシネムーリアン前期にあたる層から出土し[5]、テムノドントサウルスの模式種である。テムノドントサウルス・プラティオドンの標本はイングランドのライムレジスとドイツの Herlikofen およびベルギーのアルロンから発見されている[5]。完全な骨格は BMNH 2003 のみだが、保存状態の良い BMNH R1158 も発見されている[4]。
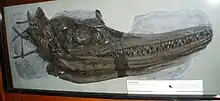
1995年、Christopher McGowan がかつてテムノドントサウルス・リソルに分類された標本が実際にはテムノドントサウルス・プラティオドンの幼体であることを、ライムレジスの東方に位置するブラック・ヴェンからデイヴィッド・ソールが1987年に回収した標本を用いて説明した。それまでテムノドントサウルス・リソルと考えられていた3つの頭骨標本は、巨大な眼窩と湾曲した吻部および小さな上顎骨を持っていた故にテムノドントサウルス・プラティオドンとして別種と扱われていたが、Mcgowan は頭骨に対する前肢の大きさから幼体として記載した。胴体部と比較して頭部が非常に長いことからも、やはり幼体と考えられる[4]。
テムノドントサウルス・アクティロストリスは1840年にリチャード・オーウェンが記載した[18]。ホロタイプ BMNH 14553 はイングランドヨークシャーのウィットビーに存在するトアルシアンの Alum Shale 層から発見された。Michael Maisch は2000年にその標本をテムノドントサウルスとして記載した[5]が、2010年に Maisch は標本がテムノドントサウルスではなくおそらくイクチオサウルスに属すると主張した[18]。
テムノドントサウルス・トリゴノドンは1843年に命名された[8]。模式標本はトアルシアン前期にあたる[5]ドイツの Banz から出土したほぼ完全な骨格である[8]。標本の長さは約9.8メートルで頭骨長は1.8メートルである[8]。ドイツでは他の標本も発見されているほか、フランスのヨンヌ県 Saint Colombe に位置するトアルシアンの層からも出土している[5]。
テムノドントサウルス・ロンギロストリスはトアルシアンにあたるイングランドヨークシャーのウィットビーから出土した不完全な骨格 BMNH 14566 に基づいて記載され[22]、他の標本もその付近から出土している[22]。この種の有効性については論争が繰り広げられており、Michael Maisch はテムノドントサウルス・ロンギロストリスを有効な属と認めていない[5] 一方で M・J・ベントンと M・A・テイラーは有効な属とみなしている[22]。
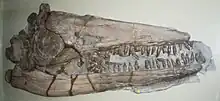
テムノドントサウルス・ユーリケファルスはホロタイプ標本 R 1157 しか発見されておらず、1974年に McGowan により命名された[5][17]。イングランドのドーセット州ライムレジスに位置するブロードレッジと呼ばれる石灰岩中で発見され、地質時代はシネムーリアンに該当する[17]。この標本はロンドン自然史博物館に所蔵されている[3]。
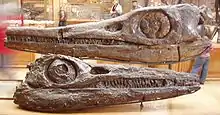
テムノドントサウルス・ブルグンディアエの有効性は議論されている。McGowan が1995年に本種をテムノドントサウルスに所属させるべきであると提案した[8]が、Michael Maisch はこれに反対しており、1998年には本種をテムノドントサウルス・トリゴノドンのジュニアシノニムとした[9]。マーティン・サンダーは2000年にドイツホルツマーデンとフランスから回収した標本をテムノドントサウルス・ブルグンディアエとして記載し、他の専門家は本種をこの標本を含むものとして解釈している[6]。
テムノドントサウルス・アゼルグエンシスは2012年にブリストル大学のジェレミー・マーティンにより記載され、トアルシアン中期の Bifrons ammonite zone から出土したほぼ完全な骨格であるホロタイプに基づいている。これは1984年にフランスのローヌ県 Belmont d’Azergues の Lafarge 採石場からデイジョブとローレントが発見したものである。発見された場所である採石場の付近にある河川と渓谷から種小名が名付けられた。
テムノドントサウルス・アゼルグエンシスは体格と胴体部の解剖学的特徴が他のテムノドントサウルスの種と似通っているが、頭骨の形態は異なる。吻部は長く薄く、方形骨が小さい。テムノドントサウルス・アゼルグエンシスの歯は極めて小さいかあるいは全く存在せず、固い外骨格や脊椎動物を捕食するのには非効率的であったと推定されており、他のテムノドントサウルスの種と比較してより小型でより柔らかい獲物を捕食していた可能性がある[3]。
古環境
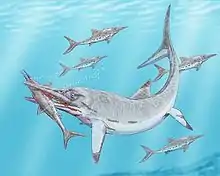
テムノドントサウルスの生息域は海岸線から離れた開けた海洋であり[1]、海底には関与しなかった[6]。
テムノドントサウルスの化石はイングランド、ドイツ、フランスにある海洋環境に関連した岩から発見されており、特にイングランドのドーセット州ライムレジスのリアス層が顕著である。リアス層は石灰岩と泥岩の変成岩から構成され、アンモナイトが豊富に含まれている[23]。
テムノドントサウルスの化石はドイツのホルツマーデンのポシドニア頁岩からも発見されている[12]。 ポシドニア頁岩は黒歴青頁岩と歴青石灰岩から構成されており、首長竜やワニ、アンモナイトなどの化石が豊富に発見されていることから、当時の環境は海洋だったと知られている[24]。
出典
- Motani R.(2000). “Rulers of the Jurassic seas”. Scientific American. 283 (6): 52-59
- Judith M. Pardo-Pérez et al. (2018). “Pathological survey on Temnodontosaurus from the Early Jurassic of southern Germany”. PLOS ONE. doi:10.1371/journal.pone.0204951.
- J.E. Martin et al.(2010). A longirostrine Temnodontosaurus (Ichthyosauria) with comments on Early Jurassic ichthyosaur niche partitioning and disparity. Palaeontology 55 (5), 995–1005
- McGowan, C. (1995). "Temnodontosaurus risor is a Juvenile of T. platyodon (Reptilia: Ichthyosauria)". Journal of Vertebrate Paleontology. 14 (4): 472–479
- Maisch MW, Matzke AT. (2000). The Ichthyosauria. Stuttgarter Beiträge zur Naturkunde Serie B (Geologie und Paläontologie) 298: 1-159
- Sander,P.M.(2000). "Ichthyosauria: their diversity, distribution, and phylogeny", Paläontologische Zeitschrift 74: 1–35
- McGowan, C. (1992). Dinosaurs, Spitfires and Sea Dragons. Harvard University Press
- McGowan C. (1996). "Giant ichthyosaurs of the Early Jurassic". Canadian Journal of Earth Sciences 33(7): 1011-1021
- Emily A. Buchholtz (2000). Swimming styles in Jurassic Ichthyosaurs. Journal of Vertebrate Paleontology, 21, 63-71
- Motani R.(2005). Evolution of fish-shaped reptiles (Reptilia : Ichthyopterygia) in their physical environments and constraints. Annual Review of Earth and Planetary Sciences. 33: 395-420
- “Big jaws, big bite?”. 英国放送協会. 2018年12月29日閲覧。
- Thies, D. & Hauff, R.B. (2013). A Speiballen from the Lower Jurassic Posidonia Shale of South Germany. – N. Jb. Geol. Paläont. Abh., 267: 117–124; Stuttgart
- Scheyer, Torsten M. et al. (2014). Early Triassic Marine Biotic Recovery: The Predators’ Perspective. PLoS ONE 9.3 (2014): e88987
- Davis, Larry E. (2009). "Mary Anning of Lyme Regis: 19th Century Pioneer in British Palaeontology". Headwaters: The Faculty Journal of the College of Saint Benedict and Saint John’s University 26: 96-126
- Pierce, P. (2006). Jurassic Mary: Mary Anning and the Primeval Monsters. Sutton Publishing
- HIERARCHICAL TAXONOMY OF THE CLASS EODIAPSIDA. Retrieved January 16, 2009.
- McGowan, C. (1974). "A revision of the longipinnate ichthyosaurs of the Lower Jurassic of England, with descriptions of two new species (Reptilia, Ichthyosauria)". Life Sciences Contributions, Royal Ontario Museum 97: 1–37
- Michael W. Maisch. (2010). "Phylogeny, systematics, and origin of the Ichthyosauria – the state of the art". Palaeodiversity 3, 152-65
- “The Ichthyosauria”. Stuttgarter Beiträge zur Naturkunde: Serie B 298: 159. (2000).
- “Observations on Triassic ichthyosaurs. Part XII. A new Lower Triassic ichthyosaur genus from Spitzbergen”. Neues Jahrbuch für Geologie und Paläontologie, Abhandlungen 229: 317–338. (2003).
- “Phylogeny, systematics, and origin of the Ichthyosauria – the state of the art”. Palaeodiversity 3: 151–214. (2010).
- 、Benton, M.J. and Taylor, M.A. (1984). Marine reptiles from the Upper Lias (Lower Toarcian, Lower Jurassic) of the Yorkshire coast. Proceedings of the Yorkshire Geological Society. 44: 399-429
- “The lithostratigraphy of the Blue Lias Formation (Late Rhaetian–Early Sinemurian) in the southern part of the English Midlands”. Proceedings of the Geologists' Association. 112(2): 97-110
- Bottjer, Etter, Hagadorn, Tang, editors (2001). “Exceptional Fossil Preservation”. Columbia University Press