ドロバチ亜科
ドロバチは膜翅目(ハチ目)スズメバチ科ドロバチ亜科(Eumeninae)に分類される昆虫の総称。トックリバチやスズバチもこの仲間である。ドロバチ亜科はドロバチ科(Eumenidae)とする場合もある[1]。
| ドロバチ亜科 | ||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
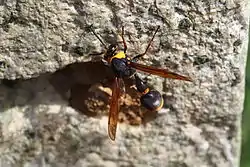 スズバチ Oreumenes decoratus | ||||||||||||||||||||||||
| 分類 | ||||||||||||||||||||||||
| ||||||||||||||||||||||||
| 英名 | ||||||||||||||||||||||||
| potter wasp |
本亜科はスズメバチ科の中で最大の亜科であり、世界から3500種以上が記載されている[2]。日本からは50~60種程度が記録されている[3][4][5]。
社会性狩りバチであるスズメバチ亜科やアシナガバチ亜科とは違って、基本的には単独性の狩りバチであり群れは作らない[3](ただし一部の種は、複数の♀成虫が共同で巣作りすることが知られている)[6][7]。
形態
体長は日本産の種では1.5〜2.5センチ程度。アシナガバチ亜科やスズメバチ亜科と同じように、複眼の内縁は深く湾入し、とまっているとき前翅は縦に折りたたまれる。体型はアシナガバチ亜科やスズメバチ亜科に似るが、後腹部(前伸腹節を除いた見かけ上の腹部。本来の腹部第2節以降の部分)の第一節が細く柄状になる種もおり、それらにはトックリバチとかスズバチの和名が付けられている。その他、中胸背板後縁の両端に小さな突起(亜肩板=parategula)があること、脚の附節の爪の先が二股に分かれることなどの特徴で、アシナガバチ亜科やスズメバチ亜科と区別される[3]。大アゴは、アシナガバチ亜科やスズメバチ亜科に比べて長く細い。熱帯アフリカに分布するSynagris属には、オスの大型個体が長くあるいは太く発達した大アゴを持つ種や、大アゴや頭楯に角のような顕著な突起を持つ種もいる[8]。♀成虫の体に共生ダニを収容する空間(ダニポケット=アカリナリウム)を持つ種もいる。体色は黒または褐色に黄色や橙色の縞や紋を持つものが多いが、熱帯には青や緑色などの光沢を持つ種もいる。
生態
本亜科に分類される多くの種が巣作りに際して泥を利用することから「ドロバチ」の名がある。ドロバチの巣とは、多くの単独性狩りバチと同様、基本的には幼虫を保育するための育房やその集合体のことであり、社会性狩りバチであるアシナガバチ亜科やスズメバチ亜科のような、多数の成虫が群れで生活する場ではない。♀成虫は巣を作成、産卵した後、捕獲した獲物を運び込んで貯蔵し、孵化した幼虫はそれを食べて発育する。一部の種で幼虫が孵化した後も♀成虫が継続的に給餌を行う亜社会性が見られるが、多くの種は♀成虫が幼虫の餌の貯蔵と産卵を行った後に開口部を塞いで巣を密閉する単独性昆虫であり、この場合幼虫と♀成虫が接触することはない。巣は通常、幼虫一頭ごとに小部屋(育房)が設けられる。営巣様式は掘坑型(土中や植物組織中に自ら穴を掘るもの)、借坑型あるいは筒住型(植物遺骸や他種の生物が利用した巣穴、人工物など既存の穴に泥と獲物を運び込むもの)、築造型(泥を固めて一から巣を作るもの)の三つに大別される。このうち地面に孔を掘る掘坑型の種は日本からは知られていない[3]。
築造性のトックリバチ類は、巣の口に徳利のような襟のついた壷を泥で作って育房とし、スズバチやクロスジスズバチでは複数の壷をまとめて作ったあとさらに全体を泥で上塗りする。ハラナガスズバチでは上塗りと壷の集団との間に隙間を設ける。巣の素材は、上述のように、泥(乾いた土を吐き戻した水でこねて泥にする)が多いが、フタスジスズバチなど一部の種は泥でなく、噛み潰した葉を使う[3][9][10]。東南アジアのCalligaster属では葉を使って複数の育房をまとめて作り、1つの巣とする[11]。筒住型の種(竹筒など既存坑に一列に育房を作る種)では、奥の育房にはメスを、入口側にオスを産む傾向がある[10]。卵は短い糸で巣の内壁からぶら下がる。カギモントックリバチでは糸はなく垂直の壁面に接着する[10]。幼虫の餌として鱗翅目やハムシの幼虫を利用する[2][4][12]。
配偶行動として、オスは交尾相手のメスを獲得するため、メスが吸蜜や巣作りや巣作りの泥を採取に来る場所で、パトロールしたり待ち伏せしたりすることが知られている。先に生まれたオスが、あとから羽化する妹にあたるメスを待つ種もいる[13]。オスが長く発達した大アゴを持つSynagris cornutaでは、それを使ってメスを巡る闘争が行われる[8]。
天敵・共生
成虫にはスズバチネジレバネが寄生する[14]。巣には、ドロバチヤドリニクバエ、クロヒラタコバチ、コウヤツリアブ、ヒメバチ、ムモンオオハナノミ、セイボウ類が捕食寄生[15]または労働寄生[16]し、いずれの場合も寄生されたドロバチの幼虫や蛹は死んでしまう[17]。
枯れ枝の髄を掘って巣を作るアトボシキタドロバチは♀成虫の体(胸部と腹部)に共生ダニを収容する空隙(ダニポケット=アカリナリウム)を持ち、そこに多数のダニが潜む。ハチが育房に餌を貯蔵して封をする際にダニが育房に移り、何もなければそのまま餌の蛾の幼虫やドロバチの幼虫の体液を吸って増殖するが[18]、ヒラタコバチに寄生された場合には侵入してきたコバチを殺し、ドロバチの子供が守られることが明らかにされた[19]。
日本の主な種
学名と分布は寺山守(2016)日本産有剣膜翅類目録[5]に依拠。
- オオフタオビドロバチ Anterhynchium flavomarginatum (Smith, 1852)
- 筒住性
- 分布:北海道、本州、四国、九州、佐渡島、対馬、伊豆諸島、琉球列島、小笠原諸島
- ミカドドロバチ Euodynerus nipanicus Schulthess, 1908
- 筒住性
- 分布:北海道、本州、四国、九州、対馬、屋久島、大隅諸島、伊豆諸島、琉球列島、大東諸島、小笠原諸島(人為的移入)
- ナミカバフドロバチ Pararrhynchium ornatum (Smith, 1852)
- 筒住性、亜社会性を示す
- 分布:本州、四国、九州、対馬
- フカイオオドロバチ Rhynchium quinquecinctum (Fabricius, 1787)
- 筒住性
- 分布:本州、四国、九州、対馬、琉球列島、火山列島(硫黄島)
- キオビチビドロバチ Stenodynerus frauenfeldi (Saussure, 1867)
- 筒住性
- 分布:北海道、本州、四国、九州、対馬、屋久島、種子島、大隅諸島、奄美大島、伊豆諸島、小笠原諸島
- スズバチ Oreumenes decoratus (Smith, 1852)
- 築造性
- 分布:北海道、本州、四国、九州、奥尻島、佐渡島、対馬、屋久島、種子島、口永良部島、八重山諸島(人為的移入?)
- ミカドトックリバチ Eumenes micado Cameron, 1904
- 築造性
- 分布:北海道、本州、四国、九州、佐渡島、対馬、屋久島、種子島
- クロスジスズバチ Delta esuriens(Fabricius, 1787)
- 築造性
- 分布:琉球列島(奄美大島以南)
- ハラナガスズバチ Phimenes flavopictus(Blanehard, 1841)
- 築造性
- 分布:琉球列島(先島諸島)
- カギモントックリバチ Pseumenes depressus(Saussure, 1855)
- 筒住性
- 分布:琉球列島(先島諸島)
- フタスジスズバチ Discoelius zonalis(Panzer, 1801)
- 筒住性
- 分布:北海道、本州、四国、九州、対馬、屋久島、奄美大島、伊豆諸島
分類、系統
ここではドロバチ亜科をZethini族を含む単系統群として解説したが、Zethini族(日本産の種ではフタスジスズバチのみが含まれる)の扱いには異論がある。従来、形態や、単独性狩りバチという習性が似ていることから1960年代以降はZethinae亜科としてドロバチ科に[21]、1980年代からはZethini族としてドロバチ亜科に含められてきた[22][2]。
2000年代になってDNA解析が行われるようになると、Zethini族はほかのドロバチ亜科よりも、アシナガバチ亜科+スズメバチ亜科に近縁との結果が得られ、このことからZethini族をドロバチ亜科から分離して、独立した亜科Zethinae、もしくはZethinaeとRaphiglossinaeの2亜科とする見解が出された[23][24]。一方で従来のZethini族を含むドロバチ亜科を単系統とする見解を支持するDNA解析結果を含む研究もあり[25]、まだ分類は流動的である。
人間との関係
本亜科を初めとする管住性ハチ類の調査法として、営巣トラップ(日本では竹筒がよく利用されることから竹筒トラップとも称される)が利用される。管住性ハチ類は種によって好む穴のサイズが異なることが知られており、異なる口径の筒を利用することで異なる種の管住性ハチ類を観察することができる[26][27][28]。また、人工物の穴に営巣する場合があるため、時に事故の要因となり得る[29]が、いずれも本亜科に特有の生態ではないため、注意が必要である。
脚注
- 寺山守 (2011年). “日本産有剣膜翅類目録(2011年版)”. 2020年11月27日閲覧。
- Marcel G. Hermes; Gabriel A. R. Melo; James M. Carpenter (2013). “The higher‐level phylogenetic relationships of the Eumeninae (Insecta, Hymenoptera, Vespidae), with emphasis on Eumenes sensu lato”. Cladistics 30 (5). doi:10.1111/cla.12059 2020年11月27日閲覧。.
- 山根正気 (1990). “A REVISION OF THE JAPANESE EUMENIDAE (HYMENOPTERA, VESPOIDEA)”. Insecta matsumurana. New series : journal of the Faculty of Agriculture Hokkaido University, series entomology. 43: 1-189 2020年11月28日閲覧。.
- 遠藤知二. “カリバチのくらし方(膜翅目細腰亜目の生活2)”. 2020年11月27日閲覧。
- 寺山守 (2016年). “日本産有剣膜翅類目録(2016年度版)Ver.5”. 2020年11月27日閲覧。
- Mary Jane West-Eberhard (1987). “Observations of Xenorhynchium nitidulum (Fabricius) (Hymenoptera, Eumeninae) a primitively social wasp”. Psyche 94 (3-4): 317-323.
- Mary Jane West-Eberhard (2005). “Behavior of the primitively social wasp Montezumia cortesioides Willink (Vespidae Eumeninae) and the origins of vespid sociality”. Ethology Ecology & Evolution 17: 201-215.
- Robert W. Longair (2004). ““Tusked Males, Male Dimorphism and Nesting Behavior in a Subsocial Afrotropical Wasp, Synagris cornuta, and Weapons and Dimorphism in the Genus (Hymenoptera: Vespidae: Eumeninae)”.”. Journal of the Kansas Entomological Society 77: 528-557.
- 岩田久二雄 (1971). “本能の進化-蜂の比較習性学的研究-”. 真野書店.
- 岩田久二雄「“自然観察者の手記-昆虫とともに五十年-”. 朝日新聞社.」1975年。
- Hari Nugroho; Rosichon Ubaidillah; Jun-ichi Kojima (2016). “Taxonomy of the Indo-Malayan presocial potter wasp genus Calligaster de Saussure (Hymenoptera, Vespidae, Eumeninae) ”. Journal of Hymenoptera Research. 48: 19-38.
- 市野 隆雄「ドロバチ類の個体群動態に関する比較生態学的研究」『香川大学農学部紀要』第62巻、1997年、1-206頁、ISSN 04530764、NAID 110000134391、2020年11月27日閲覧。
- David P. Cowan (1979). “Sibling Matings in a Hunting Wasp: Adaptive Inbreeding?”. Science New Series, 205 (4413): 1403-1405.
- 前田泰生 1963 Some biological notes on Pseudoxenos iwatai Esaki : (I) Its biology and life history 昆蟲 31 (1); 1-15.
- 宿主を食い殺してしまう寄生方法。寄生昆虫のほとんどは捕食寄生性である。
- 宿主の貯えた獲物を横取りする寄生
- 日本竹筒ハチ図鑑 森林総合研究所 https://db.ffpri.go.jp/BBee/index.html
- ドロバチの幼虫の成長は妨げない本来の寄生
- Okabe, K. & Makino, S. (2008b) Parasitic mites as part-time bodyguards of a host wasp. Proceedings of Royal Society B, 275, 2293–2297.
- 森林総合研究所 (2005年). “エントツドロバチ (Orancistrocerus drewseni) - 竹筒ハチ図鑑”. 2020年11月27日閲覧。
- Rechards, O.W. 1962 A revisional study of the Masarid wasps (Hymenoptera, Vespoidea).
- Carpenter, J.M. 1982 The phylogenetic relationships and natural classification of the Vespoidea (Hymenoptera). Systematic Entomology 7, 11–38.
- Hines, H.M., J.H. Hunt, T.K. O’Connor, J.J. Gillespie and S.A. Cameron 2007 Phylogeny reveals eusociality evolved twice in vespid wasps. Proceedings of the National Academy of Sciences of the United States of America 104(9): 3295-3299.
- S.Bank, M. Sann, C. U. Mayer and K. Meusemann 2017 Transcriptome and target DNA enrichment sequence data provide new insights into the phylogeny of vespid wasps (Hymenoptera: Aculeata: Vespidae). Molecular Phylogenetics and Evolution 116:213–226
- K. M. PIckett and J.M. Carpenter 2010 Simultaneous Analysis and the Origin of Eusociality in the Vespidae (Insecta: Hymenoptera).Arthropod Systematics & Phylogeny 68 (1) 3 – 33
- 森林総合研究所 (2005年). “営巣トラップ”. 2020年11月26日閲覧。
- 橋本佳明、遠藤知二「管住性ハチ類からみたニュータウンの環境形態とタウン内残存林のビオトープとしての活用」『人と自然』第7巻、1996年、65-71頁、doi:10.24713/hitotoshizen.7.0_65、NAID 130007738961、2020年11月27日閲覧。
- 橋本佳明、遠藤知二「竹筒トラップの形式が管住性ハチ類のサンプリングに与える影響」『人と自然』第25巻、2014年、75-83頁、doi:10.24713/hitotoshizen.25.0_75、NAID 130007569073、2020年11月27日閲覧。
- “Invasive keyhole wasp builds nests in aircraft instruments, may pose 'significant risk' to air safety”. ABC News (2020年11月26日). 2020年11月26日閲覧。