ミヤマクワガタ
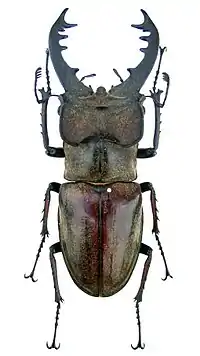
ミヤマクワガタ Lucanus maculifemoratus Motschulsky, 1861 [6][8](漢字表記: 「深山鍬形[9]」もしくは「深山鍬形虫[10][11]」)は、コウチュウ目クワガタムシ科ミヤマクワガタ属に属する昆虫の一種[6]。日本および東アジア(中国・朝鮮半島・ロシアなど)に分布する種として複数の亜種に分類されていたが、亜種とされていた海外産の個体群はミヤマクワガタとは別種であり、ミヤマクワガタは日本固有種であるとする学説もある(後述)[12]。和名のミヤマは深山幽谷を意味し、その名の通り山地に多いクワガタムシである[13]。学名の種小名 maculifemoratus は「斑紋のある脚をもった」という意味である[6][8]。
| ミヤマクワガタ | |||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
 | |||||||||||||||||||||||||||||||||||||||
| 分類 | |||||||||||||||||||||||||||||||||||||||
| |||||||||||||||||||||||||||||||||||||||
| 学名 | |||||||||||||||||||||||||||||||||||||||
| Lucanus maculifemoratus Motschulsky, 1861 | |||||||||||||||||||||||||||||||||||||||
| シノニム | |||||||||||||||||||||||||||||||||||||||
| 和名 | |||||||||||||||||||||||||||||||||||||||
| ミヤマクワガタ | |||||||||||||||||||||||||||||||||||||||
| 英名 | |||||||||||||||||||||||||||||||||||||||
| Miyama Stag Beetle[7] |
日本産のクワガタムシとしては大型の種で[14][15]、オスの成虫は最大で体長[注 2]80 mm以上に達する個体が記録されている(後述)[16][17]。日本では北海道から九州まで分布する普通種であり[8]、コクワガタやノコギリクワガタとともに一般的なクワガタムシとして知られ、人気も高い[18]。採集や販売、ペットとしての飼育の対象にもされている(後述)[19]。日本本土(北海道・本州・四国・九州)には原名亜種 Lucanus maculifemoratus maculifemoratus Motschulsky, 1861 が、伊豆諸島には亜種 L. m. adachii Tsukawaki, 1995 が分布するが[6][8]、本項目では原名亜種を中心に解説する。
分布
原名亜種である L. m. maculifemoratus Motschulsky, 1861 の場合、日本国内では北海道・本州・四国・九州および、択捉島、利尻島、礼文島、焼尻島、奥尻島、飛島、佐渡島、隠岐諸島、瀬戸内海島嶼部、五島列島[注 3]、甑島列島、熊毛諸島の黒島に分布する[18]。また国後島を分布域に含める場合[6][20][22]、および択捉島を除外する場合もある[22]。タイプ産地は Japan (日本)である[20]。
伊豆諸島に分布する亜種 ssp. adachii や、かつて亜種関係にあるとされていた海外産の近縁種については後述の「亜種」節を参照されたい[20][23]。
形態
成虫の体長[注 2]は、オスで22.9 - 78.6 mm、メスで25.0 - 46.8 mmである(いずれも2013年時点)[8]。なお飼育下ではこれを上回る体長80 mm以上のオス個体が記録されている(後述)。一般的に採集される個体の平均体長は60 mm前後とされ、67 mm超の個体は大型とされる[25]。このような成虫のサイズは生息環境に著しく左右されるため、大型個体が観察できる地域はミヤマクワガタの生息に適した自然環境が豊富に残っている地域と考えられる[25]。また安達鉄美 (1958) は兵庫県の妙高山[注 4]麓で、1957年7月から8月に約20回にわたってミヤマクワガタの雌雄成虫を採集し、ミヤマクワガタのオス123頭の出現期ごとの個体の大きさについて調査したところ、翅の長さの平均は7月前半に採取した26個体で19.5 mm、8月前半に採取した44頭では23.9 mmであり、メスも8月前半の方が7月前半よりわずかに大きかったと報告している[27][28]。サトウキビに穿孔するカブトムシの一種 Podischnus agenor の場合、小型のオスは大型のオスより早く出現し、早い時期に交尾することで体格のハンデを克服しているという報告があることから、活動前年に羽化してそのまま地中で越冬するミヤマクワガタについてもこの傾向が当てはまると仮定した場合、同年に羽化した個体たちの中でも、小型個体の方が大型個体より早く活動を開始しているという可能性が指摘されている[28]。
オスの大顎を除いた体長を27 - 51 mm、大顎の長さを7.5 - 22 mmとする文献もある[1]。犬飼哲男は1917年から1919年にかけ、北海道帝国大学の構内でノコギリクワガタとミヤマクワガタそれぞれの雌雄を多数採取し、その個体変異に関する統計を集計した[29]。同論文によれば、調査対象となったミヤマクワガタのオス320頭の大顎を除いた体長は28 - 50 mmと連続的な変異があり[30]、44 mの個体が最多(42個体)だった[31]。またノコギリクワガタのオス(町田個体数は1362頭)と同じく、その変異は2つの頂点を有する双頂曲線に文化する傾向があるとした上で、その原因はオスの内在性によるものであり、異種族の混在や外界の影響などではないと述べている[30][32]。メスに関しても809頭を調査した結果、変異の幅は25 - 39 mmとオスより著しく限定されており[30]、33 mmの個体が最多(175頭)だった[33]。犬飼はこの調査結果より、種属の原型はメス形であり、オス形はメス形から変化発達したものであると述べている[30][32]。なおクワガタムシの大顎の相対変異(体の特定の部分に対する他の部分の割合の変異)は「前胸の長さ+上翅の長さ」と「大顎の長さ」で示されるが、ノコギリクワガタの場合はいずれも優調変異を示す一方、ミヤマクワガタの場合は上翅の長さ25 mmまで優調変異を示すが、それ以上の場合は等調もしくは低調変異となる[34]。
体の背面には光沢があるが、大顎と頭部前方はこれを欠く[35]。触角の先端から4節目までは長く鰓状に伸びているが、綿毛がなく光沢を有する[36]。また眼縁突起は複眼の半分に達さない[36]。雌雄とも腹面には灰褐色の毛が生えている[35]。
雌雄とも各脚の腿節に黄褐色の部分があることで他種と区別できる[37]。また中脚の脛節には3 - 5本、後脚の脛節には2 - 4本の棘がある[1][38]。日本産クワガタムシのほとんどの種の場合、中脚・後脚の脛節に生えている棘は0 - 1本の場合が多く、この点でもミヤマクワガタを他種と区別できる[37]。また前脛節は幅広で内側に湾曲する[39]。日本産のミヤマクワガタ属であるミヤマクワガタや、ミクラミヤマクワガタ L. gamunus Sawada & Watanabe, 1960 およびアマミミヤマクワガタ L. ferriei Planet, 1898 の3種に共通する特徴として、前脛節の先端に生えている2本の外歯(脛節の外側に生えている棘)が発達していることが挙げられる[40]。
最大記録
野外における成虫の最大個体は、オスは大阪府妙見山(北摂山系)で採集された体長78.6 mmの個体[41]、メスは栃木県で採集された体長46.8 mmの個体である[6]。
むし社の調査によれば、飼育下ではオス成虫は最大体長80.8 mm[注 5][16][17]、最小体長29.9 mmの個体がそれぞれ記録されている[44]。また、メス成虫は最大体長50.3 mmの個体が記録されている[45]。
オス
オスの体色は赤褐色から黒褐色で[39]、体の表面には金色の微毛が密に生えている[6]。この微毛は羽化直後は全身を覆っているが、活動するに従って徐々に脱落していく[11][39]。この微毛は乾燥時は金色だが濡れると黒っぽくなるもので、小島啓史は乾燥時は熱線を反射しやすくなって体温上昇を抑えている一方、濡れると黒っぽくなることで熱線吸収効率が上がると考察している[46]。また腹面にも毛が生えている[36]。
ミヤマクワガタ属の特徴として、オス成虫の頭部後方には耳状の突起があり[47]、頭部後方から両側へ大きく張り出している[39]。この突起を耳状突起(じじょうとっき)もしくは頭冠と呼び[48]、「王冠」とも形容される[49]。ミヤマクワガタの耳状突起はよく発達する傾向にあり[50]、特に大型個体ほど目立つ傾向にある[39]。一方で小型個体では突起の張り出しが弱まり、L字型の隆条のみとなる個体もいる[1]。安達鉄美 (1958) によれば、上翅の長さが18 mm以下の小型のオスではこの突起はわずかに残るのみとなる[51]。土屋利行 (2014) によれば、体長約32 mmの小型個体では耳状突起は消失する[52]。この耳状突起の裏側には大顎を閉じる筋肉が収まっている[53]。この筋肉が発達していることにより、大顎で挟む力は強力なものになっている[53]。耳状突起の大きさは前蛹期の気温の高低に左右され、前蛹期に涼しい環境で過ごした個体はより前蛹期間が伸び、耳状突起も大型化する傾向にある[54]。また原名亜種と伊豆諸島に分布する亜種イズミヤマクワガタ L. m. adachii の2亜種のみ、大型のオスは前頭部中央に上方を向いた台形の衝立状の突起を有するという特徴がある[6]。この突起も大型個体ほど明瞭で、小型個体の場合は消失する場合もある[1]。頭楯は細長く舌状で、先端は鋭く尖る[1]。また頭楯は横隆条を欠き[1]、前方斜め下へ伸びている[39]。
黒島で採取された個体の場合、本土産の個体と比して耳状突起の発達が若干悪く、頭部が丸みを帯びるほか、脛節・腿節の黄色部分が広範囲により強く現れ、跗節も長いという特徴が確認されているが、その標本を調べた土屋利行は伊豆諸島亜種よりも遥かに本土産に近い外部形態であったと評している[55]。
大顎
オスの大顎は緩やかな弓状に湾曲しており、先端で二又に分岐する[6]。大顎の基部には大きな内歯があり、その内歯から先端部にかけて3 - 5本のやや大きい棒状の内歯が並ぶが、以下のように3つの型が見られる[6]。原名亜種の場合、腿節基部には大きな黄褐色紋がある[6]。この黄褐色紋は腿節の背側と腹側の両方にあり、中脚・後脚では脛節の先端部寄りにも同様の紋がある個体もいるが、後述の「エゾ型」では発達が弱く、時にまったくない場合もある[39]。
山口進は、オスの大顎は闘争時に相手を挟むことよりも土を掘ったり物を掴んだりすることに適した形であり、土中の蛹室から脱出する際に役に立つ形状であると評し[56]、またその形状から幼虫が腐葉土などの中にいることが推定され、長らく謎だった生態が解明される鍵になったと述べている[57]。
大顎のタイプ
オスの大顎は、大きく分けて基本型(もしくはヤマ型)、エゾ型、フジ型(もしくはサト型)の3タイプが知られている[6]。このような変化は大型個体ほど顕著であるが、中型・小型個体にも認められる[39]。
これらの形態の変化は幼虫期(特に前蛹期)の温度に左右され、温度が低いとエゾ型に、高いとフジ型になるとされる(後述)[8]。またこのような変化の要因の一つとして、種間競合との関係も指摘されている(後述)。
基本型とエゾ型の中間型はよく見られるが、基本型とフジ型の中間型はあまり見られない[8]。また、メスではこれらの型を区別することは困難である[36]。
| 名称 | エゾ型[6] forma hopei Parry, 1862[5] |
基本型[6] forma maculifemoratus Motschulsky, s. str.[注 6][5] |
フジ型[6] forma nakanei Y. Kurosawa, 1976[5] |
|---|---|---|---|
| 大顎先端の二又部の開き | 基本型より大きい[8]。 先端は鋭くかつ大きく二又に分かれ、端歯は3型で最も強く外方を向く[58]。 |
エゾ型とフジ型の中間[6]。 大顎基部の内歯(第1内歯)と第3内歯[注 7]はほぼ同じ長さになる[8]。 先端は鋭くかつ大きく二又に分かれ、端歯は細くて鋭く、外方を向く[58]。蛹の時点では第一内歯同士は離れている[59]。 |
基本型より小さい[8]。 先端の二又は最も弱く、端歯は内方に向いていて鈍い[58]。また下方の歯は端歯より短い[58]。 |
| 大顎基部の内歯(第1内歯)の大きさ | 小さい[6]。第3内歯より短くなる[8]。 | かなり大きい[6]。第3内歯より長くなる[8]。第1内歯同士を合わせると大顎の先は離れる[56]。蛹の時点で第一内歯同士がほとんど接している場合がある[59]。 | |
| 記録地(1987年時点)[60] | 樺太南部、南千島(国後島・択捉島)、北海道、本州、九州[60]、飛島[58] | 北海道南西部、本州、四国、九州、佐渡、隠岐、対馬[注 8]、五島列島、屋久島 | 本州、四国、佐渡、伊豆諸島[注 9] |
| 備考[62] | エゾミヤマクワガタとも[63][58]。f. hopei は、ミヤマクワガタのシノニムとされた L. hopei Parry, 1864 のタイプ標本がエゾ型と同じ型であることに由来する[59]。 北限(南樺太・南千島)は「宮部線」と一致する[62]。本州では標高1,000 m程度の産地で見られる[64]。 腿節の黄褐色部が発達せず、個体によってはまったくない場合もある[39]。頭部前縁中央の横長の突起はやや小さく、中型のオスでは消失する[65]。 |
ミヤマクワガタ基本型とも[58]。「基本型」の名前は、モスクワ大学のタイプ標本がこの型であることに由来する[59]。 北限は北海道南西部の黒松内低地帯[62]。 |
フジミヤマクワガタとも[63][58]。富士山周辺や伊豆諸島に多い[62]。 頭部の前方中央の突起は中型のオスでも発現する[36]。 |
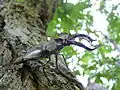 撮影地:北海道(エゾ型)
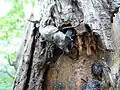 撮影地:北海道(基本型)
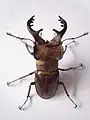 ミヤマクワガタ「フジ型」のオス成虫
 フジ型のミヤマクワガタの標本
気候などの影響
大まかに分ければ、温暖な地方の個体ほどフジ型に、寒冷な地方の個体ほどエゾ型にそれぞれ近い傾向があるが[6][66]、地域によってそれぞれの発生温度帯は変化する[8]。特に北海道の大半(道南以外)はエゾ型が、富士山周辺や箱根・伊豆半島、伊豆諸島などではフジ型のみが産出されるとされていたことから、これらの3型は亜種のようにも思えるが、多くの地域では2型が混産され、3型すべてが混産されている地域もあることから、亜種ではないとされている[58]。小島啓史 (2013) によれば、3つの型の中ではフジ型のみが日本全国で見られる一方、基本型とされる型は関東甲信越で著しく減少しており、かつてはエゾ型が多く見られた北海道でも同じシーズンに複数の型が交互に発生している場合もあることから、小島はむしろ「フジ型」を「基本型」と呼ぶ方が合理的ではないかと指摘している[67]。また3つの型すべてが出現する場所は標高600 m以上の場所が多く、そのような場所ではまずエゾ型や基本型が早く出現し、フジ型はそれらの型より遅れ、カブトムシやノコギリクワガタといった競合種と近い時期(山梨県では7月後半以降)に出現することが多い[68]。
これらのミヤマクワガタの型については保育社の『原色日本昆虫図鑑』 (1969) で初めてその存在について言及がなされ、北隆館の『原色昆虫大図鑑 甲虫編』 (1981) では、2013年時点で用いられている「フジ型」「基本型」がそれぞれ「基本型」「山地型」と呼称されており、また北海道から東北に分布するとされていた「エゾ型」は別亜種[69] subsp.elegans [59]とみなされ、エゾミヤマクワガタという和名を与えられていた[69]。なお「エゾミヤマクワガタ」は1898年に北海道から L. elegans Planet, 1898 として記録されていたが、1972年には中根猛彦によってミヤマクワガタのシノニムであることが確認されている[59]。その後、双葉社の『最新図鑑クワガタムシのすべて』 (1983) [70]では「フジ型」「基本型」「エゾ型」に相当する型が、それぞれ「サト型」「ヤマ型」「エゾ型」と呼称されることになったが、保育社の『原色日本甲虫図鑑II』 (1985) では2013年と同じく「フジ型」「基本型」「エゾ型」という呼称が用いられるようになった[69]。現行の名称は黒澤良彦が『日本産甲虫目録 第1集 クワガタムシ科』 (1976) において提唱したもので、それまで「サト型」と呼ばれていた型を富士箱根伊豆国立公園付近に多い[注 10]ことを理由として、「フジ型」と呼称したものである[72]。
一方で小島 (1996) は、福島・新潟の県境で採集したエゾ型の新成虫を東京都目黒区の自宅に持ち帰って繁殖してみたところ、全てエゾ型ではなく基本型かフジ型になったと報告しており、またエゾ型が北海道だけでなく九州で、基本型が北海道南部で、フジ型が四国・佐渡でそれぞれ見られることなどから、形態の違いは地域型というよりはむしろ標高差もしくは緯度による周年温度の差や、植生の差が関係しているのではないかと指摘している[73]。その後、小島は国立環境研究所博士の五箇公一に協力を得て、この型の発現理由を調べる研究を行った[74]。この研究は国立環境研究所の恒温室で[54]、北海道・栃木県・茨城県・埼玉県・山梨県それぞれの産地で採取されたミヤマクワガタの種親たち(いずれも父親であるオスの型や採集地点の標高が異なる)から採卵した幼虫たちを、それぞれ23℃、20℃、16℃で飼育してみるというものであったが、結果は栃木県の標高1,000 m地点で採取されたエゾ型のオスの子たちがどの温度帯で育成してもエゾ型になった例を除き、複数の地域で親とは異なる型の子も出現しており、親子の型と飼育温度の相関関係はあまり明瞭ではなかったものの、複数の型が出現した地域個体では温度が低いほどエゾ型に近い個体が、温度が高いほどフジ型に近い個体がそれぞれ発生しやすい傾向が見られたと報告している[注 11][75]。また谷田浩一 (1999) によれば、宮城県の産地(採集される個体はほとんどが基本型である)で採集したミヤマクワガタの子供たちをそれぞれ登記最低温度15℃と25℃の条件で飼育したところ、15℃で飼育した個体はエゾ型として、25℃で飼育した個体は基本型としてそれぞれ羽化したと述べている[76]。一方、24℃に保って飼育していたエゾ型の子がエゾ型として羽化した事例もある[77][78]。
また同一の山系でも標高1,000 m地点ではフジ型が多く見られた一方、そこから登りながら採集を行うと標高1,100 m付近で基本型やエゾ型が出現し始め、標高1,300 m近くの浅間牧場付近ではエゾ型のみが見られたという事例や、かつては3つの型すべてが見られた地域ではフジ型と基本型しか見られなくなったり、基本型のみ見られていた地域ではフジ型のみに切り替わったりしている例から、ミヤマクワガタのオスの型の変化については「環境温度など、産卵〜幼虫〜前蛹の時期の周囲の環境によって決定される場合」「遺伝子依存だった場合」の2つの仮説を提唱した上で、型の変化が発生している地域ではより温暖な地域に多い型(フジ型>基本型>エゾ型の順に温暖な地域に多い)への入れ替わりとなっていることから、それらの地域では温暖化が型の変化に影響している可能性を指摘している[79]。フジ型のみが産出されると言われていた伊豆半島や富士山でも、前者では伊豆市の標高400 m程度の場所で基本型が採集されており[71]、後者でも氷穴など寒冷な場所ではエゾ型が確認されている[64]。
種間競合との関係
小島はミヤマクワガタがこのように多型になる要因として、それぞれの生息地で競合する他種のクワガタムシやカブトムシに対抗するためではないかと考察している[53]。
例えばフジ型は平地や低山地で見られ、出現時期もカブトムシやノコギリクワガタに近いが[68]、先端の二又が小さいことから挟む力が分散しにくく、相手の外骨格を凹ませたり、場合によっては穴を開けて致命傷を負わせたりすることも可能であるため、里山で最大の競合相手と考えられるカブトムシ相手にもある程度競合できるのではないかと考察している[53]。実際に小島は山梨県の河畔林に生えていた1本のクヌギの木の根元で、ミヤマクワガタ(基本型)やノコギリクワガタ、コクワガタの遺骸を観察したが、その木にはフジ型のミヤマクワガタがおり、その大顎の形状と、ノコギリクワガタやミヤマクワガタの遺骸についていた咬み跡が一致していたことから、死骸になったクワガタムシたちはミヤマクワガタ(フジ型)との闘争で致命傷を負って死亡したのではないかと考えている[54]。
一方でエゾ型は先端の二又が著しく大きく、大顎で挟み付けても挟む力が分散されるため相手に致命傷を与えることは難しいが、エゾ型が多産する高標高地や寒冷地ではミヤマクワガタ同種間による闘争が多いと思われるため[注 12]、同種同士で必要以上に致命傷を与えないことにより、種の存続に寄与しているのではないかと考察している[53]。
フジ型とエゾ型の中間である基本型の大顎は下に向かって湾曲し、かつその先端付近に発達した内歯が集中するような形状になっているが、このような形状は主な競合相手であるノコギリクワガタの大歯型個体が得意とするバックドロップで投げ飛ばされるリスクを低減するため、大顎の先端で相手を挟み込むことに適した形状であると考察している[53]。
メス
メスは他の日本産クワガタムシのメスよりかなり大型であると評される[15]。メスの体色は赤褐色から黒褐色[39]、もしくは黒褐色から黒色で[6]、体表には光沢がある[39]。体の腹面には毛が生えているが、オスと異なり背面には毛は生えていない[36]。頭部は点刻に覆われたつや消し状になり、前胸背板と上翅には鈍い光沢がある[6]。頭楯は屋根型で、先端は丸い[36]。大顎は太くて厚みがあり、外縁が湾曲する[37]。
前胸背板の表面には多数の細かい点がある[39]。前胸背板の側縁は中央よりやや後方で最も幅広くなり、後方は内側に切れ込む[39]。上翅にも前胸背板と同様に多数の点刻があるが、こちらの点刻は小さくて浅いため目立たない[39]。前脚外側は丸みがあり、また大きな棘がある[80]。各脚の腿節にはオスと同様に黄褐色の紋があるが、前腿節の腹側には黄褐色紋がない個体も多い[39]。
生態
成虫の発生時期は6月から9月中旬にかけてで、ピークは地域差があるが(後述)、大方7月から8月上旬である[8]。交尾も7月から8月にかけて行う個体が多いが、交尾行動は9月上旬ごろまで見られる[81]。
成虫は活動していない場合、木の根元や洞、落葉・倒木の下などで休んでいたり[82]、樹上の枝葉の間、木の根元の枯れ草の下、笹などの中に隠れていることが多いが、樹上にいる個体は振動を感じると落下する性質がある[83]。ミヤマクワガタの場合、外敵からの攻撃や急激な震動を受けると仰向けになって体を硬直させ、擬死行動を取る[注 13][84]。また他のクワガタムシのような擬死体型にはならず、そのまま動き出して逃げることもあるという文献もある[85]。この習性を利用してミヤマクワガタのいそうな木を揺らし、落ちてきたミヤマクワガタを捕獲するという採集方法がある[83]。なおミヤマクワガタの体型はコクワガタやオオクワガタなどクワガタ属 Dorcus の種ほど平たくないため、それらの種に比べて幹の狭い隙間に潜り込む能力は劣る[84]。
ミヤマクワガタは高温に弱く、28℃以上で多湿な環境に置かれると急速に衰弱する[86]。飼育下では高温が原因で死亡することが多く[15]、生息に適した温度は17 - 18℃とされる[87]。また高温だけでなく乾燥にも弱い[88]。小島はミヤマクワガタやヒメオオクワガタ・アカアシクワガタ、スジクワガタといった日本では主に山地に分布するクワガタムシたちは、おそらく氷河期の低温な時代に日本へ侵入したため、耐寒性はあるが高温や乾燥への適応力がないのではないかと評している[89]。
生息環境
ミヤマクワガタは低山地から山地にかけての広葉樹林(ブナ林を含む)に生息する[39]。垂直分布の範囲は標高300 - 1,800 mと広く、北海道や東北地方では平地にも分布するが、関東地方以西ではやや山寄りを好む[8]。群馬県ではノコギリクワガタは平地でも見つかる一方[90]、ミヤマクワガタは比較的山地に多いとされる[15]。一方で関西などでは平地にも多いとする文献[82]、関西以西では平地などでも見られるとする文献[11]、西日本では平地で見られることが多く、ノコギリクワガタよりも普通種であるとする文献もある[91]。また愛媛県では標高1,300 m以上の高地には少ないという[92]。伊豆半島南部の静岡県下田市などでは沿岸部でも見られたという情報があり[25]、同半島では冷涼な気候を好むミヤマクワガタと温暖な気候を好むヒラタクワガタが同所的に見られたり、ヒラタクワガタの方がミヤマクワガタより高い標高で見られたりする場合もあるが、小島啓史はその理由について、伊豆半島は森林がよく残っていることに加え、温暖な地域ではあるが黒潮の影響を受けていることから著しい高温にはならず、結果的にミヤマクワガタとヒラタクワガタの双方にとって順応しやすい環境ができあがっているためではないかという仮説を述べている[93]。
前述のようにミヤマクワガタは高温と乾燥に弱いため、都市部や開発の進んだ場所には生息しておらず、山間部の比較的冷涼で、かつ沢や谷川が流れていて湿潤な落葉広葉樹林を好む[94]。そのような環境が整っていれば、ブナ・ミズナラなどによる原生林にも見られるが、むしろクヌギ・コナラなど主体の二次林、それも薪炭用などのために定期的に伐採され、人間の大人の太腿程度の太さの木が多い里山に多く分布する[95]。一方で手つかずの自然が残る環境を好む傾向にあるという文献もある[85]。
後述のように、メスは土からわずかに突き出た切り株に産卵し、幼虫はその切り株を食べて成長し、羽化した成虫は切り株から伸びた新しい若木が樹液を出すようになるとそのような林に集まる――という生活環が成り立っているが、薪炭やシイタケ原木栽培用のホダ木を取るために約5年周期で伐採される山地のクヌギ・コナラの雑木林はこのような生活環を有するミヤマクワガタの繁殖にとって好都合な環境となる[96]。里山や低山地帯の生息域ではカブトムシと競合しながらニッチを占めている[13]。またミヤマクワガタやノコギリクワガタは、定期的に皆伐される薪炭林において枯死した切り株を分解し、森林の再生のために欠かせない役割を担っていると考えられる[97]。
ミヤマクワガタは平地性のノコギリクワガタより標高の高い場所に分布することが多く、同じ山の林道沿いでは標高の低い場所でノコギリクワガタが、より標高の高い場所でミヤマクワガタがそれぞれ採集できる場合が多い[96]。コクワガタやノコギリクワガタよりもミヤマクワガタの方が多数見られるような場所もある[98]。また比較的粘度の低いサラサラした樹液を好む傾向にあるが[96]、スジクワガタやアカアシクワガタも同じような樹液を好むため、ミヤマクワガタはこれら2種と同じような環境に生息していることも多い[83]。低山地では比較的涼しくて高湿度で、高木層・中層・下層・下草と4層構造を有する森林を好む[99]。
摂食活動
ミヤマクワガタの成虫は昼夜を問わず、クヌギ・コナラ[8][39]、ミズナラ[82][39]、クリ[82]、ハルニレ[39]、ヤナギ、カエデ、ハンノキ[8]、アカメガシワ、コバノトネリコなど[100]、広葉樹の樹液に集まる[8][39]。また山地ではヤシャブシ、ヒメヤシャブシ、ハンノキ、ヤマハンノキ、オヒョウなどの木にもよく集まる[99]。特にボクトウガやコウモリガ、カミキリムシ[注 14]によって穿孔されたことで樹液を出しているような木に多い[102]。コウモリガの幼虫はクヌギ・ヤナギ・アカメガシワなどの樹幹だけでなく、樹上の細い枝にも穿孔しており、ミヤマクワガタだけでなくノコギリクワガタ、コクワガタ、スジクワガタなどにとって主要な樹液の供給源の役割を果たしていると考えられる[103]。
飛翔行動
ミヤマクワガタの成虫は活発に飛翔し[8][98]、また光に集まる性質が強く、灯火によく飛来する[104]。夜間は山中にあるダムの水銀灯[105]、雑木林の近くにあるガソリンスタンドや自動販売機の照明などにも飛来する[106]。特に6月下旬から8月にかけ、月が出ていない蒸し暑い晩に飛ぶことが多い[98]。
灯火に飛来する個体の性別は、土中から脱出した個体が樹液に飛来する発生初期はオスが、メスが交尾後に産卵場所を求めて飛翔する中期から後期にかけてはメスがそれぞれ多いとされる[25]。ノコギリクワガタは体外から熱線を含んだ白色光で体を温めると、体表温度が30℃に達した時点で飛翔しようとするが、ミヤマクワガタはそれより3度程度低い温度で飛翔行動に入る[68]。一方で海を越える程度の移動能力はあまりないと思われる[107]。標高300 m程度の山では、大型のオスが上昇気流に乗って山頂まで飛来してくる場合もある[105]。
生態の地域性
活動時間帯は、東北地方以北や山地といった寒冷な地域ほど昼行性の傾向が強い一方、温暖な関東以西の低標高地では夜行性の傾向が強いとされる[37]。山口進は関東以北では昼行性の傾向が、関西では夜行性の傾向がそれぞれ強いと述べている[108]。昼より夜の方が活発に活動するという文献もある[25]。小島は標高1,000 m付近に生息しているミヤマクワガタやヒメオオクワガタについて、気温が20℃を超える10時ごろから活動を開始すると述べている[109]。
ミヤマクワガタの生息域がカブトムシやノコギリクワガタの生息域と重複する場合、梅雨入りが早くてかつ梅雨の時期が長い年はカブトムシの発生が梅雨明けまで遅れることがあるが、そのような年はカブトムシより低い気温でも十分活動できるクワガタムシたちの方がカブトムシより早い時期から出現し、結果的にカブトムシと発生時期を異にすることで棲み分けが成り立つ場合がある[110]。一方で日照り・旱魃などによってこの3種の発生最盛期が例年より大きく重なる場合もあり、そのような場合は彼ら3種が昼夜を問わず樹液で激しく闘争することになるが[13]、ミヤマクワガタが昼間に、カブトムシやノコギリクワガタが夜にそれぞれ活動し、このような場合はミヤマクワガタは夕方になると樹液を離れ、カブトムシたちが樹液を離れるまで地上や木の枝の上などで休んでいるという場合もある[110]。一方で日当たりの良い山間部では、昼間に乾燥や暑さに比較的強いノコギリクワガタが活動し、冷え込む夜間にはミヤマクワガタが活動していたという複数の観察例もある[111]。
また発生のピークは、北海道では6月下旬から7月上旬であり、山梨の塩山付近でもこのころに1度ピークを迎える[25]。伊豆半島など本土の一部では7月下旬から個体数が増加する[25]。また隠岐や五島列島では7月から、甑島列島では7月下旬から、黒島では7月中旬からそれぞれ発生し始めるが、隠岐では8月以降、五島列島では7月下旬以降、甑島では8月中旬ごろにそれぞれ個体数が増え、黒島では8月上旬にピークを迎えると思われる[21]。
北海道ではカバノキ類(ハンノキなど)、ブナ類(ミズナラなど)を始め、クルミ類・カエデ類・ヤナギ類など広葉樹による混交林、場合によってはエゾマツ・トドマツといった針葉樹と広葉樹の混交林で観察されており[92]、ニレなどの樹液でもよく採集される[25]。本州・四国・九州ではブナ帯[注 15]よりも低い丘陵地や低山帯にあるクヌギ・コナラの二次林や広葉樹の混交林などに生息しており、ノコギリクワガタ・コクワガタ・アカアシクワガタ・オオクワガタとはそれらの林で生息域が重複するが、多少の棲み分けがある[92]。関東以西ではノコギリクワガタ・コクワガタより山地に分布している[92]。本州・四国・九州の低山帯ではクヌギ・コナラで、それより標高の高い場所ではヤナギ類などでよく見られる[25]。
山口進 (1988) の記録によれば、山梨県にある標高900 m地点のクヌギ・コナラ林では8月上旬に、6時30分ごろから成虫たちが活動を開始し、13時過ぎまで樹液の場所をめぐって複数の個体が雌雄を問わず闘争を繰り広げていた[82]。その後、14 - 15時ごろに求愛・交尾が行われ、16時ごろから18時ごろにかけてオスたちは樹液を離れて木の上部や根元の落ち葉の下で休みに入ったり飛び去ったりしたが、その後も一部のメスたちは21時過ぎまで樹液を吸い続けていたという[82]。
闘争
ミヤマクワガタのオス成虫は非常に好戦的で、特に水槽など逃げ場のない狭い環境に複数のオスを入れると殺し合いにまで発展する場合もある[112]。オスは闘争の前、もしくは人間に手で触られた際に相手の方を向き、前脚を踏ん張って頭部を持ち上げ、大顎を上向かせることで威嚇行動を取る[81]。オス同士の闘争は主にメスや餌場を巡って繰り広げられるが、オス同士が闘争に夢中になると、闘争中のオスは争奪対象であるメスを含めた周囲にいるすべての個体を排除しようとすることもある[113]。小島啓史はこのようにミヤマクワガタのオスが好戦的な性質を有するようになった理由について、ミヤマクワガタの繁殖期間が6月から9月の3か月程度と短いことから、メスとの出会いの場である樹液およびメスそのものにありついて自身の遺伝子を残すため、競合する他のオスを排除する必要があったためであろうと考察している[114]。同種間の場合、小型のオスでも活発な個体であれば大型のオスに対しても積極的に戦いを挑む傾向にある[115]。
ミヤマクワガタの主な戦法はノコギリクワガタと同じく、自身の大顎で相手の前胸背板を挟み、頭越しに投げ飛ばすという方法である[13]。また戦闘時には、大顎を最大限に広げて高く掲げると同時に、左右のうち片側だけの3本の脚で足場の樹皮に踏ん張りを効かせながら、もう片側の3本の脚を交互に高く掲げ、頭を左右に振りながら勢いよく前進するという姿勢を取る[116]。
また、ミヤマクワガタは相手に応じて戦法を使い分けることもできる[13]。ミヤマクワガタのオス同士が闘争に至ると、2頭のオスは互いに大顎で相手を挟み上げて戦うが、互いに力比べをするように大顎で噛み合う場合もある[81]。小型個体が相手の場合は大顎を軽く開き、耳状突起のある大きな頭部を振りかざすことで相手を跳ね飛ばそうとする一方、ノコギリクワガタやカブトムシなどの大型個体が相手の場合は大顎で強く噛みつき、時にはカブトムシの前胸背板に穴を開ける場合もある[117]。相手を挟み上げて空中に持ち上げると、そのままの状態で歩き出すことがあるが、これは敵の脚がすべて足場から離れているか否か確認するための行動と考えられる[116]。複数の敵を同時に相手にする場合も、樹皮から離れて大顎とともに掲げている脚が触角の補助として機能し、向かってくる側面の相手を捉えると同時に、その持ち上げていた脚を下ろして新たな敵の方に向き直るという戦法を取る[116]。一方で闘争中に気温が上昇してきた場合や、足場が大木で幹が平面に近くなっている場合はミヤマクワガタにとって不利な状態であり、そのような場合はいずれも戦いに消極的になる[116]。後者の理由は、ミヤマクワガタの長い脚は細い木の幹に適応したものであるため、後者の場合はミヤマクワガタはその長い脚が支障になって得意技である投げ技を使うことができず、噛みつき・締めつけ・押し出しという不得意な戦法を使うことを余儀なくされる一方、カブトムシやオオクワガタといった脚が太くて短い種にとってはこのような環境が有利なフィールドになるためである[116]。
一方でメスも大変獰猛な性質を持ち[113]、樹液を巡ってオスとメスが争う場合や[82]、メスが襲いかかってくるオスの脚を大顎で噛みちぎる場合もある[113]。ただしメスによる闘争はオス同士ほど激しくはない[82]。
繁殖
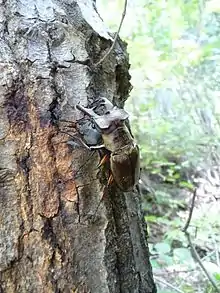
ミヤマクワガタの成虫は7月から8月にかけて盛んに交尾を行い、9月上旬まで交尾が観察できる[81]。交尾は昼夜を問わず行われ[118]、餌場である樹液の周りで雌雄が出会って行われることが多いが、メスがオスを性フェロモンで誘引している可能性も指摘されている[81]。交尾の際、オスは自身の身体をメスの体の上に重ねた上で、頭を下に向けてメスの動きを封じ[118]、腹部後方の3節を下方に曲げた上で伸ばし、その末端から交尾器を出してメスの交尾器に挿入する[119]。
メスはオスが接近した際、交尾を拒否して逃げようとする場合があるが[118]、そのような際にはオスがメスを捕らえるために大顎を用いる場合があり[120]、大顎でメスの体を挟んだり、前方からメスに近づいて体の下へ抱え込んだりする[118]。後者の場合、オスは頭部を強く下に曲げ、メスを抱え込んだまま方向転換して交尾の姿勢を取るが、前方からメスを抱きかかえたまま長時間静止している場合もある[118]。小型のオスの場合はメスの前方を十分に遮ることができないため、大顎でメスの頭部を挟む場合がある[注 16][118]。また雌雄の体格が著しく異なると交尾が困難もしくは不可能になる場合があり、ヨーロッパミヤマクワガタ L. cerves の場合、オスの体長に比してメスが小さすぎたり大きすぎたりすると(雌雄の体長比に4:3もしくは3:4以上の差がある場合)交尾が難しくなる傾向にあることが判明している[119]。
オスの大顎によって体の背面に傷を負って死んだメスも観察されている[84]。人工繁殖時にもオスとメスを一緒に飼育していると、交尾を拒否されたオスが逆上してメスを挟み殺す場合がある[121]。オスは自身が交尾した相手であるメスでも、交尾に応じなくなると攻撃するようになる[122]。小島啓史 (2019) は日本産のクワガタムシで、オスが自身と交尾したメスを挟み殺すような種はミヤマクワガタ以外に聞いたことがないと述べ[123]、またその理由については自身と交尾しないメスを他のオスと交尾済みである、つまり自身の遺伝子を残せないメスとみなすためであると考察している[124]。その一方で、オスがメスを警護するような形でペアになっていることも多い[39]。
また飼育容器内でミヤマクワガタのオスがコクワガタのメスと交尾した記録があり、それ以外のクワガタムシ同士(ミクラミヤマクワガタのオスとスジクワガタのメス、ハチジョウノコギリクワガタのオスとコクワガタのメスなど)でも交尾が観察されていることから、クワガタムシのオスは他の甲虫類に比べて異種間や雌雄の識別が鈍いのではないかと考えられている[125]。
産卵
メス成虫は交尾後、白色腐朽菌によって腐朽した広葉樹の立ち枯れの根周辺の土中に産卵すると考えられている[39]。自然界では地表にわずかに突き出た切り株に産卵することが多く[96]、また地中の朽木の樹皮が剥がれた部分の木質部と、土もしくは朽木屑の隙間に潜り込み、木質部の表面をかじり取って産卵することが多いとされ、朽木そのものに産卵することはほとんどない[126]。人工繁殖の場合、産卵木(産卵用の朽木)に直接産卵することは少なく、産卵木と発酵マットとの間に産卵していることが多い[86]。土屋利行は人工繁殖の際、産卵木は産卵床というよりはメスがマットの中に潜るための足がかりであると評している[127]。このような産卵習性はノコギリクワガタに似ているが、ミヤマクワガタはノコギリクワガタより低温を好み、25℃以上だと産卵・孵化は難しくなる[37]。メスは仮に産卵に適した条件が揃った環境であっても、産卵時期に林床が25℃以下になるような場所でなければ産卵しないとする報告がある[89]。林長閑は、産卵が近いと思われるミヤマクワガタのメスを解剖して卵を摘出調査した結果から、ミヤマクワガタのメスは卵巣で20個程度の卵が成熟した(もしくは成熟が近づいた)段階で産卵を開始するのだろうと述べている[128]。
またミヤマクワガタやノコギリクワガタなど、立ち枯れの地下部分や倒木の下に潜り込んで産卵する傾向が強いクワガタムシは発酵マットの代わりに黒土を産卵床として用いると産卵が誘発されるようだという文献もある[129]。
寿命など
成虫の寿命は短く、活動開始から2 - 3か月程度である[86]。自然界では9月にはほとんど見られなくなる[39]。(後述の新成虫を除き)原則として成虫で越冬することはない[1]。出現期が短いのはこのように、成虫では越冬しないためとされる[91]。
しかし飼育下で温度管理を行っていると越冬して翌年の春から夏まで生存する個体もおり[42]、2023年時点では最長飼育日数310日(2022年8月1日 - 2023年6月7日)という記録がある[130][87]。またそれ以前の飼育最長記録(2018年10月13日 - 2019年7月5日の265日間)の場合、2018年6月上旬に採集されてから記録報告者の手に渡る(同年10月13日)までの期間を考慮すれば約390日間生存していたことになる[131]。これらの長寿記録の要因としては低温環境を維持したことや、交尾させずに体力を温存させたことなどが挙げられている[87]。2023年時点における最長寿記録保有者の島谷祐司[注 17]は、過去に自身が飼育して長期間生存したミヤマクワガタは跗節の欠損が発生してから約1か月後に死亡していることに言及した上で、欠損した跗節の断面から雑菌が侵入することが寿命に影響している可能性を指摘している[130]。島谷は2022年8月は17 - 18℃に設定した家庭用ワインセラー内で飼育を行い、同年9月から2023年6月に死亡するまではヨーロッパミヤマクワガタを冷蔵庫内で飼育して延命させたという話を参考に、実測温度約7℃(設定温度6℃)に維持したクールインキュベーター内で飼育したところ、その影響でミヤマクワガタは動きが緩慢になり、脚と飼育ケース内壁との衝突(および、それに起因する跗節の欠損)が抑えられ[注 18]、長生きに繋がったのではないかと考察している[133]。このような特殊な温度管理を行わなかった場合でも、1986年8月3日に野外で採取した個体を自宅の玄関で飼育していたところ、翌1987年1月13日まで生存したという報告がある[134]。
小島はノコギリクワガタやミヤマクワガタについて、羽化後の生涯寿命は約1年間であるが、彼らは晩夏から秋にかけて羽化するため、翌年の初夏まで蛹室内で越冬し、結果的に寿命の大半を蛹室内で過ごしているため、繁殖のために活動できる期間は初夏から晩夏までの3か月程度になっていると考察、また彼らは短い寿命の間に子孫を残すため(長寿で温和なオオクワガタとは対照的に)好戦的な性格になり、カブトムシとの競合のために長大な大顎を有するように進化し、盛夏に出現するカブトムシより早く出現して短期間で交尾を済ませるという生存戦略を身につけたのだろうと考察している[135]。
自然界では、成虫の主要な天敵は鳥類であると考えられる[136]。フクロウに捕食されて頭部のみになった多数のミヤマクワガタのオス[137]、アオバズクに捕食され腹部を失った瀕死のミヤマクワガタや、野鳥に食べられたと思われるミヤマクワガタの死骸といった観察記録がある[136]。
卵
卵は光沢を有する淡い黄褐色の俵型で、長さは約3 mm、幅は約2 mmである[138]。また産卵直後は長さ2.9 mm、幅2.0 mmだったが、適度な湿気を与えた朽木の上に並べ、気温を25℃に維持して管理したところ、産卵から5日目には産卵直後の俵型から球形に近くなり、長さ3.3 mm、幅2.8 mmになったとする報告がある[139]。卵殻の表面は滑らかだが、拡大するとモザイク状の紋様が確認できる[140]。
卵から成虫になるまでの期間は2 - 3年とされる[11]。卵の産卵から孵化までの日数は25℃の場合、平均24日である[139]。1齢幼虫の中胸背板には、左右各2個の微細な突起があり、「破卵器」 (egg-burster) と呼ばれる[141]。孵化する際、幼虫はこの「破卵器」を用いて内側から卵殻を破り、途中で休息を挟みながら、卵殻が裂け始めてから約20分で卵殻から脱出する[142]。飼育下では、幼虫は卵殻を食べない[139]。
幼虫
幼虫の体型はC型に曲がった黄白色の円筒形である[143]。幼虫は3齢が終齢幼虫で[144]、十分に成長したオス成虫の齢期ごとの 頭部の幅 / 体長の平均 は、1齢幼虫で 2.5 mm / 13 mm 、2齢幼虫で 5.5 mm / 28 mm 、3齢幼虫で 10.3 mm / 65 mm である[145]。また3齢幼虫の体長は約50 mm[143]ないし40 - 60 mm[146]、幼虫の頭部の幅は6 - 11 mm程度[147]とする文献もある。このような幼虫時代の大きさには個体差があり、成虫期の大きさに影響する[141]。また、頭蓋はオオクワガタやコクワガタに比べてやや幅広いとする文献もある[141]。クワガタムシ科の幼虫はルリクワガタ類を除き、単眼は退化している[148]。
幼虫はノコギリクワガタなどの幼虫に似ているが、全身(特に腹端)に密に毛が生えている点で区別できる[149]。また気門は他種のクワガタムシと比較して著しく暗い茶褐色である[147]。頭部の色は、オオクワガタの幼虫の頭部(濃いオレンジ色)よりさらに濃い茶褐色である[147]。腐植物を噛み砕いて食べるという食性から、大顎は頑強で、左右で効率良く噛み合えるような形状になっている[150]。また、大顎基部には哺乳類の臼歯に相当する「臼状部」が発達しており、上咽頭(上唇の内側)には小さな突起が、下咽頭(下唇の内側)には大顎と同様の硬さの突起をそれぞれ有し、これらの部位も大顎と同様に硬い朽木を噛み砕いて食べるために役立っている[150]。大顎基部には10本前後の刺毛があり[146]、この点は他属幼虫と区別できる特徴の1つである[151]。また頭部と脚は黄褐色であるとする文献もある[152]。触角は4節で、第1節の長さは第2節の半分程度であり、刺毛はない[151]。跗爪節の刺毛は約5本で、基部は円筒形であり[151]、その先端は尖る[注 19][146]。また中脚基節の後方には「摩擦歯」 Stridulating teeth と呼ばれる1列の細かく密な歯があり[151]、この点でも他属幼虫とは異なる[151]。これらの特徴以外にミヤマクワガタ属の幼虫に見られる他属幼虫との相違点として、頭蓋や上唇が幅広い点、触角第1節が第2節の3分の1から2分の1の長さである点が挙げられる[151]。オニクワガタの幼虫はミヤマクワガタの幼虫に類似しているが、跗爪節の先端が丸いこと、摩擦歯はミヤマクワガタのそれと異なりわずかに離れて並んでいること、またミヤマクワガタより小型である(体長20 - 30 mm)ことから区別できる[146]。また同属であるヨーロッパミヤマクワガタの幼虫とは、触角第1節と第2節の長さの比が1:3である点や、跗爪節の刺毛が2本である点から区別できる[151]。
林長閑により、孵化後20日目では1.5 mmだったミヤマクワガタ1齢幼虫の頭蓋幅が、孵化後170日目で2.52 mm、孵化後250日目(2齢幼虫への脱皮11日前)で2.66 mmに成長したという記録が報告されている[153]。
飼育下ではオスの場合、幼虫期間は12 - 18か月である[154]。最も早い段階では産卵された年の秋に3齢幼虫まで成長するが、多くの幼虫は1齢幼虫後期か2齢幼虫でその年の冬を越す[155]。その年に3齢幼虫までならなかった幼虫は翌年の秋までに脱皮して3齢幼虫になり[155]、その冬は3齢幼虫で越冬する。幼虫は脱皮する際、蛹室と似たような空間を作るほか、脱皮殻や場合によっては自分の排泄した糞を食べる場合もある[155]。なお林長閑は野外で採集した幼虫を飼育したところ、幼虫期間に3年を要した[注 20]と発表しているが、通常は幼虫期間は約2年であると思われる[157]。
幼虫の生育適温は16 - 22℃とされ、23℃以上では死亡率が上がる[154]。また常時25℃の環境で飼育すると早く成長するが蛹化には至らず、やがて死亡する[89]。
幼虫の摂食活動
卵から孵化した1齢幼虫は土中を移動して水分含有量の多い立ち枯れの地下に埋もれた腐朽部を食べる[39]。また腐葉土の中にいることもある[57]。
自然界では、幼虫は樹皮が残った立ち枯れの根の腐朽部分や、地面に埋没して湿度が高くなった倒木といった場所にいることが多く、蛹室は朽木の中ではなく地中に作ることが多い[158]。また『日本産幼虫図鑑』によれば、ヒラタクワガタやノコギリクワガタは1つの立ち枯れの根から10頭以上の幼虫が発見されることが多い一方、ミヤマクワガタの幼虫は単独か数頭で発見されることが多く、蛹は地下2 mから発見されることもあるという[144]。
食性
クワガタムシ科の昆虫の幼虫は種により、白色腐朽材(白色腐朽菌によって腐朽した木材)を食する種、褐色腐朽材(褐色腐朽菌によって腐朽した木材)を食する種、軟腐朽材を食する種があるが、ミヤマクワガタとノコギリクワガタは白色腐朽材食と腐植食の中間的な性質を持つ種とされている[159]。同じ立ち枯れや切り株の地下部からミヤマクワガタの幼虫が、地上部からは他のクワガタムシ(コクワガタ・アカアシクワガタ・スジクワガタ・オオクワガタなど)やカミキリムシの幼虫がそれぞれ発見される場合もある[160]。またクヌギの切り株の根からミヤマクワガタの幼虫が、その上方からノコギリクワガタの幼虫がそれぞれ発見された事例もある[161]。小島啓史はミヤマクワガタについて、ノコギリクワガタやヒラタクワガタと同じく土中で腐朽が進んだ高湿度の朽木を食べるが、マルバネクワガタが主に食するような更に腐朽の進んだ泥状の朽木も食する傾向にあるとした上で、ミヤマクワガタが現代の生息域にまで分布を広げた当時は競合相手が少なかったため、それ以前からの食性を変化させる必要がなかった、すなわち比較的原始的な食性を有するクワガタムシではないかと述べている[162]。土屋は幼虫飼育時の適切な湿度について、幼虫の餌となる発酵マットを握って団子状になる程度に加水するのが望ましいと評している[163]。
ミヤマクワガタの幼虫が食べる朽木の樹種は、クヌギ、コナラ[164]、ブナ[11]、ヤマハンノキ、ヤシャブシもしくはヒメヤシャブシ[160]、ミズナラ、アカメガシワ、イタヤカエデ、アオダモ[165]などの記録があり、また雑木林の中で地中に半分埋もれた古いホダ木から発見された事例や[161]、伐採から数年が経過したアカマツの株から数頭の幼虫が採集された[注 21]事例もある[165]。また飼育下では広葉樹だけでなく針葉樹の朽木も食べることが確認されているため、幅広い食性を有すると考えられているが、本来はブナ類・ハンノキ類などの朽木を食べているものと思われる[165]。林・奥谷 (1956) はスギと思われる朽木より、広葉樹の朽木の方が発育が良いようだったと報告している[143]。小島によれば、北海道ではミヤマクワガタの幼虫が牧場近くの牛糞堆肥から出たという報告があり、また自身の採集地(本州)でも牛の牧場近くで70 mm以上の大型個体が複数見られたという[167]。
飼育下では、大型個体育成のためには発酵が進んでおり、栄養価の高すぎない発酵マットによる飼育が適しているとされる[86]。オオクワガタなどの飼育に用いられる「菌糸ビン」による幼虫飼育は不可能ではないが、特にメリットはないとする報告や[86]、ミヤマクワガタなど地中穿孔性の強い(幼虫が立ち枯れの地下部分や倒木の下面を好む傾向が強い)クワガタムシの幼虫には菌糸ビンは不向きであり、発酵マットが向いているとする報告もある[168]。爆発栄螺は添加剤が多くて菌糸の勢いが強いオオヒラタケ Pleurotus abalonus の菌糸ビンではミヤマクワガタの幼虫は穿孔しなかったが、カンタケ Pleurotus pulmonarius の菌糸ビンを試してみたところ順調に生育したという結果から、菌糸ビンによる飼育は死亡率が高いものの、菌糸のライフサイクルが長くて緩やかなもので、かつおが屑の水分量が多いものならば良い成果が得られるかもしれないと述べている[169]。また、近縁種であるタカサゴミヤマクワガタ(後述)の幼虫を飼育して体長86.9 mmのオス成虫を羽化させた飼育者は、発酵マットを餌に飼育温度を季節によって10 - 21℃で管理し、割り出しから約2年で羽化に至ったと述べている[170]。
蛹
2回越冬した3齢幼虫は、孵化の翌々年の初夏から初秋にかけて朽木から地下に這い出ると、土中に楕円形の蛹室を作って蛹化する[注 22][39]。林 (1987) は蛹化時期について、8月から9月が最も多いと考えられると述べている[171]。飼育下では9月28日に蛹化、11月22日に羽化したという記録もある[172]。
オスの場合、蛹室の内部の長さと幅は6 cm×3 cm前後で、壁の厚さは1 cm以上である[173]。幼虫は蛹室を作る際、自らの糞で内側を平らに堅く塗り固めながら、約2週間かけて蛹室を完成させる[174]。蛹室は内部の壁が滑らかで一定の硬度があり、乾燥保存も可能である[173]。蛹室は地面と水平に作られることが多いが、飼育下では湿度が異常に高い環境の場合、斜めに蛹室を作ることもある[174]。なお、前蛹期は他の日本産クワガタムシ類と比して死亡率が高い[86]。小島によれば、蛹化・羽化の段階では25℃恒温で管理した個体は羽化まで至らずにすべての個体が死亡し、23℃固定でも羽化不全が頻発した一方、20℃固定ではすべての個体が無事に羽化したという[175]。
蛹の体色は薄い黄赤色である[173]。蛹は蛹化から約2週間後に羽化して成虫になるが、新成虫はそのまま蛹室にとどまって越冬し、その翌年(孵化から3年目)の初夏になって地上に現れ、活動を開始する[176]。このように蛹室内で新成虫が越冬することが判明したのは、1987年のことである[108]。なお珍しい越冬例として、海岸近くの石の下で越冬していた事例がある[177]。飼育下では羽化してから3 - 6か月間は摂食・繁殖を行わないとする文献がある一方f、羽化後3か月の個体を次の繁殖に用いることも可能だが、寿命は短くなるとする文献もある[178]。
亜種
ミヤマクワガタは日本本土に分布する原名亜種と、伊豆諸島に分布する別亜種 adachii の2亜種が知られている[12]。また日本国外に分布する複数のミヤマクワガタ属の昆虫の個体群がミヤマクワガタの亜種とみなされていたが、2020年時点ではそれらの個体群を別種とみなす学説が提唱されている[12]。
- ミヤマクワガタ(名義タイプ亜種)L. m. maculifemoratus Motschulsky, 1861 [8]
- イズミヤマクワガタ L. m. adachii Tsukawaki, 1995[179]
- 伊豆諸島の伊豆大島・利島・新島・神津島、三宅島に分布する[179]。御蔵島と八丈島からは記録されていない[107]。タイプ産地は伊豆大島の三原山である[20]。原記載は『月刊むし』第292号(1995年6月号)[107]。
- 成虫の体長はオスで33.8 - 70.0 mm、メスで25.0 - 43.9 mmである[179]。野生のオス成虫の場合、平均体長は50 - 53 mmであり、58 mm以上が大型とされる[180]。飼育下ではオス成虫は最大体長68.7 mm[17]、最小体長29.9 mmがそれぞれ記録されている[44]。
- 原名亜種に比べて大顎は太短く、その先端は小さく二股に分かれる[6]。また大顎はすべてフジ型になり、原名亜種のような変異は見られないが、伊豆大島以外では体長65 mm以上の大型個体は記録されていない[179]。頭部の耳状突起も原名亜種に比べて発達が悪く[6]、外側にあまり張り出すことはなく、高くもならない[107]。腹部がやや大きく[179]、腹端は丸みを帯びる[107]。総合的に見て上半身が小さく、下半身が大きいという体型が特徴である[180]。腹部の大きさがほぼ同程度の大きさの原名亜種の個体と比べて、やや交尾器が大きい[107]。また雌雄とも腿節の黄褐色部がよく発達しており、黄色味が強くなる[20]。
- 亜種名 adachii は阿達直樹に由来する[181][6][179]。
- 成虫は7月から9月にかけて発生し、8月にピークを迎える[179]。発生のピークは、伊豆大島では8月中旬から下旬ごろ、利島では8月の上旬から中旬[25]、神津島・三宅島では7月下旬から8月上旬とされる[21]。成虫は活発に飛翔し、オオバヤシャブシ、カラスザンショウ、タブ、アカメガシワなどの広葉樹の樹液に昼夜問わず集まるほか、夜間は灯火にも飛来する[179]。
- 伊豆大島ではノコギリクワガタとは異なる標高に棲み分けており[182]、標高200 m以上の地点に多い[25]。またオオバヤシャブシの木の高いところにいることが多いが[182]、メスは樹液ではほとんど見られない[25]。利島ではオオバヤシャブシやアカメガシワ、神津島・三宅島ではオオバヤシャブシやカラスザンショウの樹液に集まっているが、三宅島では個体数が少ないと思われる[183]。なお、神津島では昆虫採集が禁止されている[21]。
かつて亜種とされていた種
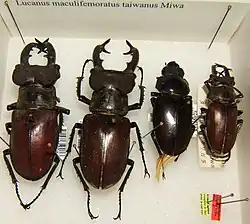
以下の種はかつてミヤマクワガタの亜種とされていたが、2020年時点ではいずれも別種とされている[12]。
- チョウセンミヤマクワガタ L. dybowskyi Parry, 1873[12]
- かつてはミヤマクワガタの亜種として L. m. dybowskyi の学名を与えられていたが[184][185]、Huang, H. & C.-C. Chen (2010) [注 23]では独立種とされ、タカサゴミヤマクワガタや中国・四川省に分布する lhasaensis がこの種の亜種として扱われている[12]。なお中国・吉林省からミヤマクワガタの亜種として記載された L .m. jiliensis Li, 1992 はチョウセンミヤマクワガタのシノニムとされる[12]。
- 原名亜種 L. d. dybowskyi は中国(吉林省・遼寧省・北京市・天津市・甘粛省・陝西省・重慶市・湖北省・安徽省・河南省・四川省)、ロシア南東部(アムール)、朝鮮半島に分布する[12]。体長はオスで43.0 - 68.9 mm、メスで23.0 - 43.8 mmである[12]。日本のミヤマクワガタ原名亜種と比べると小型で、オスの耳状突起の後方はより丸みを帯びるなどの特徴がある[184]。また頭部中央には目立った突起はなく、オスの大顎先端はより前方を向く[12]。メスはミヤマクワガタ原名亜種と十分に区別できないとする文献[38]、黒味が強い体色であるとする文献がある[184]。
- タカサゴミヤマクワガタ L. d. taiwanus Miwa, 1936[12]
- 台湾に分布する[6][185]。本種もかつてはミヤマクワガタの亜種とされていたが、 Huang & Chen (2010) ではチョウセンミヤマクワガタの亜種として再分類された[12]。
- 成虫の体長はオスで40.0 - 87.0 mm、メスで27.0 - 50.0 mmである[6][185][12]。飼育個体では最大体長86.9 mmの個体の記録がある[注 24][170][186]。
- 原名亜種に比べてオスの頭部の耳状突起がより後方まで張り出す一方、前頭部の中央には衝立上の突起は見られず、わずかに盛り上がる程度となる[6]。大顎は細長くてより真っすぐ伸び、先端付近で湾曲し、先端で大きく二又に分かれるが、最先端部はややヘラ状に膨らむ[6]。大顎の基部にある内歯は小さく、その内歯から大顎の先端部にかけて小さな内歯(先端は角ばるか丸みを帯びている)が不規則に並ぶ[6]。
- 主に標高1,000 m以上の高地に分布する[6]。成虫は4月から7月にかけて出現し、灯火によく飛来する[6]。
- L. d. lhasaensis Schenk, 2006
- 中国の四川省雅安市で記録されたチョウセンミヤマクワガタの亜種で、形態は原名亜種よりタカサゴミヤマクワガタに似ている[12]。四川省のほか、湖北省やチベット自治区に分布するとする文献もある[184]。藤田宏 (2010) では独立種とされ[12]、ラサミヤマクワガタの和名を与えられている[184]。
- 成虫の体長はオスで57.9 - 68.3 mm、メスで32.0 mmである[12]。大顎は先端がやや短く、また最大内歯はミヤマクワガタやチョウセンミヤマクワガタ原名亜種などと比べてより基部寄りに生えており、やや上向きである[12]。大顎基部の内歯が小さい点から、タカサゴミヤマクワガタと近縁な関係ではないかと指摘する文献もある[184]。オスの耳状突起は周縁部が上に反る[184]。
- ボワローミヤマクワガタ L. boileaui Planet, 1897[22]
- 学名はフランスの昆虫学者 M. H. Boileau への献名である[22]。ボアローミヤマクワガタとも表記されるが[184]、フランス語の発音は「ボワロー」が近い[22]。
- 藤田宏 (2010) などでは中国(湖北省・陝西省・四川省・雲南省・チベット自治区)に分布するとされていたが[184][185]、佐藤仁 (2020) では分布域は四川省西部のみとされている[22]。タイプ産地は四川省に近いチベットである[184]。またベトナム南部から記録された種 L. bidentis Schenk, 2013 はボワローミヤマクワガタと同一種であると思われる[22]。
- 原記載では独立種として記録されたが、後にミヤマクワガタの亜種[184] L. m. boileaui Planet, 1897 として扱われるようになった[187]。しかしオスの体が太短くて丸みを帯び、耳状突起も丸みを帯びて大きく突き出すことや、大顎がより強く湾曲し、脛節が黄褐色になるなど、ミヤマクワガタと明瞭に区別できる点が認められることから、藤田宏 (2010) では独立種として扱われている[184]。また原記載では L. boileavi となっていたが、これは「U」と「V」が区別されていなかった近世までの慣習に従ったもので、後に Boileau のスペルに従った学名に修正された[12]。
- 体長はオスで43.0 - 66.4 mm、メスで33.0 - 37.4 mm[12]。藤田が調べた四川省産の標本は大顎の湾曲が強めで内歯も多く、基部の内歯は先端が二又状になってやや上に反っているが、湖北省産の標本はそれに比べて内歯が少なく、基部の内歯は先端が細まっていて上にそらないなどの特徴が見られることから、別亜種になる可能性が指摘されている[184]。
人間との関わり
ミヤマクワガタと同属であり、ヨーロッパに分布するヨーロッパミヤマクワガタ L. cervus の大顎は古代ローマ時代から護符や痛み・ひきつけの薬として用いられていたが、日本でも江戸時代以前から、青森県や岩手県でミヤマクワガタのオス成虫の大顎を「蛇の角」「蛇の冑」と呼び、好運をもたらす物として秘蔵する習慣があった[188]。ミヤマクワガタは日本全国に分布していたクワガタムシであったことから、人々との馴染も深く、1987年時点ではオオクワガタと並んで切手(「昆虫シリーズ切手第4集」)の図柄にも採用されていた[188]。
またクワガタムシの体形は鎧を身に纏った戦士を思わせるものであることから、カブトムシとともに特に子供から人気を博していた[19]。特にミヤマクワガタのオスは立派な大顎と頭部の耳状突起が人々の心を捉えることや、「ミヤマ」という和名が「山奥に棲む珍しいクワガタムシ」という印象を与えることから、子供たちから人気を集めており、夏になると山地で採集されたミヤマクワガタがデパートやペットショップで販売されている[19]。むし社の土屋利行 (2014) によれば、日本産クワガタムシで最も人気の高い種はオオクワガタであるが[189]、ミヤマクワガタはそのオオクワガタと並んで人気の高い日本産クワガタムシである[190]。ミヤマクワガタ1種類のみを集めているコレクターもいるという[191]。
今井初太郎はミヤマクワガタについて、いかにもクワガタムシらしい風貌から、古来からノコギリクワガタとともに代表的なクワガタムシとして親しまれてきた種であると評している[85]。前田信二はミヤマクワガタについて、ノコギリクワガタとともに日本産クワガタムシの中では子供たちの人気を二分する種であり、また山間部に多いことから、都会の子供には平地で見られるノコギリクワガタ以上に憧れの存在であると述べている[192]。また永幡嘉之はミヤマクワガタについて、鰓のように張り出した突起(=耳状突起)や金色の毛が子供たちから人気を集める要因であると評している[91]。
『読売新聞』は1976年夏に東京都内の百貨店で販売されていた昆虫について調べたところ、子供たちに一番人気があった昆虫はミヤマクワガタで、近郊農家などで養殖されていたカブトムシと比べて希少だったことから1頭あたり1,200-1,500円と子供たちにとっては高値で販売されていたと報じている[193]。また同紙千葉版は1991年時点で子供に一番人気のあるクワガタムシとしてミヤマクワガタを挙げ、特に60 - 70 mmに達する大型のオスが子供に人気であると報じている[105]。クワガタブームの中にあった1994年時点では、ミヤマクワガタは2、3000円程度で取引されていたことが報じられている[194]。2014年時点では1,000 - 2,500円程度で生体が販売されている[98]。
大正時代には大阪の業者が「漢方薬の材料に」と奈良県までミヤマクワガタを集めに来て、地元住民から竹の皮に包んだ飴と交換する形で受け取っていたという[195]。
シイタケの原木栽培の場では、クワガタムシの幼虫(特にコクワガタ)は完熟ほだ木の内部を食害してほだ木を弱らせる農業害虫として扱われる場合がある[注 25][196]。広島県立林業試験場の報告によれば、ほだ木に加害することが確認できたクワガタムシ科の昆虫として、ミヤマクワガタ・ノコギリクワガタ・コクワガタの3種が挙げられている[197][198]。
地方名
ミヤマクワガタの地方名には、オスの角張った頭を箱や兵隊の背嚢に見立てたハコショイ、ハコオイ、ヘイタイという呼称があるほか、その体型が勇猛な武者を思わせることからゲンジ、ケンシン、タケダ、カトウという呼称がある[199]。また滋賀県大津市におやじ、栃木県鹿沼市にかぐら、大阪府大阪市にじゅうばこという地方名がある[注 26][200]。
なお近畿地方ではクワガタムシをゲンジと呼ぶことが多いが、奈良県葛城地域ではゲンジはノコギリクワガタのことを指し、やや茶色味がかったミヤマクワガタはヘイケと呼ぶことが多い[201]。一方で和歌山県の伊都地方[202]ないし高野地域ではミヤマクワガタのオスをゲンジと呼ぶ[203]。ゲンジはミヤマクワガタのオスを指し、メスや他種のクワガタムシはヘイケと呼ぶ地方もある[199]。
アイヌ語ではクワガタムシのオスをチクパキキリ(「チクパ」=陰茎を咬む、「キキリ」=虫 の意)、ミヤマクワガタのオスをオンネチクパキキリ(「オンネ」=年を取った、の意)と呼称する[199]。またクワガタムシを「頭に木をかじる大顎を持った虫」の意味でエクパキキリと呼称する地域もある[199]。
ミヤマクワガタを取り巻く環境の変化
1987年時点では、ミヤマクワガタの生息地となっていた丘陵地帯の雑木林が開発で破壊されたり、山の広葉樹林がクワガタムシの生息できないスギやヒノキの人工林に変えられたりしたことで、生息域が狭まっていることが指摘されていた[204]。
高温と乾燥に弱い種であるため、関東などの平野部では都市化の進展に伴って見られなくなっており[205]、東京やその近郊ではヒートアイランド現象によって数を減らしているとされている[206]。小島によれば自身が小学生だったころ[注 27]は品川区と目黒区にまたがる国立林業試験場(現:林試の森公園)でもミヤマクワガタを採集することができ、また1996年時点では目黒区内の実家にあった空調のないガレージでもミヤマクワガタを繁殖することができた(=気温が25℃以下になっていた)が、2017年時点では9月下旬でも気温が30℃を超えることが多くなり、空調がなければミヤマクワガタを飼育することはできなくなっていると述べている[206]。また小島は、自身の少年時代にノコギリクワガタやミヤマクワガタが豊富に見られた神奈川県横浜市青葉区のこどもの国では1980年代ごろに周辺の開発が進み、乾燥に弱いミヤマクワガタが減少した後、1990年代にはカラスによる被害が社会問題化すると同時に、カラスに捕食されて頭だけになったノコギリクワガタを多数見るようになったという事例や[208]、かつてミヤマクワガタが生息していた埼玉県所沢市のハンノキ林の近くにホンダの工場が建設された際、山の湧水が枯れた結果、その林ではミヤマクワガタが次第に小型化していって最終的には姿を消し[209]、その結果として枯れ木の分解がなされなくなったことで林が乾燥して荒廃したという事例を紹介している[210]。
また長野県では2005年時点で、コクワガタやノコギリクワガタとともに普通種であり、「信州を代表するクワガタ」と評されているが、同県でも2000年代時点では以前に比べて減少傾向にあることが報じられており[205]、都市化の進展や[211]、里山が手入れされなくなって荒廃したこと[212]、およびそれらが原因で幼虫の食物であるクヌギなどの太い朽木が減少したことが、ミヤマクワガタの減少に拍車をかけている要因とされている[205]。2014年時点では温暖化の影響により、ミヤマクワガタが西日本の平野部などで減少している一方、それまでミヤマクワガタの生息地だった場所にノコギリクワガタが進出している可能性が指摘されている[213]。また希少価値の高い昆虫とみなされており[214]、それが原因で乱獲されていることが減少の一因であるという声もある[215]。
和歌山県高野地域では1992年から高野町の地元住民たちが、ミヤマクワガタ(ゲンジ)などの昆虫が豊富に生息できる森の再生を目指し、「ゲンジの森づくり」と題して金剛峯寺の北約1 kmにある転軸山森林公園脇の国有林にクヌギ・コナラ・クリ・ブナなどの広葉樹を植樹するなどの試みを行っている[216]。2009年4月時点で整備した「ゲンジの森」の面積は約8.2ヘクタールにおよび、この取り組みを主催している「ゲンジの森実行委員会」は子供たちの環境教育や気象動植物の保護などに力を入れていることを評価され、同年の「みどりの日 自然環境功労者環境大臣表彰」を受賞している[203]。
人工繁殖
2022年時点ではオオクワガタやヒラタクワガタ、ノコギリクワガタなどといった他の日本産の一般的なクワガタムシと同じく、累代飼育の方法が確立されている種である[217]。飼育下では幼虫期間が2年近くあることに加え、大型個体を羽化させるためには低温管理が必要になること、また羽化後も半年から1年にわたる休眠管理が必要になるため、人工繁殖には手間がかかる[42]。土屋利行はオオクワガタ、コクワガタ、ヒラタクワガタ、ノコギリクワガタの4種について、いずれも飼育を「簡単」と評している一方[189][218][219][220]、ミヤマクワガタの飼育は「やや難しい」と評している[190]。一方で、温度を25℃以下に保つことさえできれば産卵させることは難しくはないとも評している[154]。
ミヤマクワガタが登場する作品
- 『甲虫王者ムシキング』シリーズ
- 『くわがたツマミ』 - ミヤマクワガタをモデルにしたキャラクターが登場するインターネットアニメ。
- テレビアニメ版『名探偵コナン』 - 2012年7月7日に放送された第663話「ミヤマクワガタを追え」では、ミヤマクワガタが劇中で発生する事件のキーとなっている[221]。
脚注
注釈
- Lucanini の和名はクワガタムシ族とする文献[1]、ミヤマクワガタ族とする文献[3][4]がある。荒谷邦雄 (2022) ではミヤマクワガタ属やホソアカクワガタ属 Cycrommatus などを含むミヤマクワガタ亜族 Lucanina をミヤマクワガタ族 Lucanini に、オオクワガタ亜族 Dorcina (クワガタ属 Dorcus 、オウゴンオニクワガタ属 Allotopus など)やノコギリクワガタ亜族 Prosopocoinina (ノコギリクワガタ属 Prosopocoilus やフタマタクワガタ属 Hexarthrius など)をオオクワガタ族 Dorcini に分類している[4]。
- むし社から発行された『世界のクワガタムシ大図鑑』では、大顎の先端部から上翅の先端部までの長さを「体長」と定義している[24]。
- 五島列島では福江島のみを分布域とする文献があるが[20]、2013年時点の情報によれば、福江島以外にも園周辺の主な島には生息しているという[21]。
- 妙高山とは、兵庫県氷上郡市島町(現:丹波市)にある山[26]。
- かつては野外個体と同じ78.6 mmの個体が最大個体とされていたが、2022年には8年ぶりのレコード更新となる78.9 mmの個体が記録された[42][43]。
- 『原色昆虫大図鑑』では forma typica と呼称されている[36]。
- 大顎基部側から数えて3本目の内歯。
- 黒澤によれば対馬からメス成虫1頭が記録されているが、朝鮮半島産の別種 dybowskyi (亜種とする見解もあり、#亜種節を参照)である可能性が指摘されている[38]。当該標本は1930年7月25日に対馬(下島)で採取されたやや細身のメス個体だが、それから2004年時点まで74年間にわたって対馬ではミヤマクワガタが採取された記録はない[61]。
- 伊豆大島、神津島[58]。
- 中根猛彦による観察例より[71]。
- 前述の栃木県の個体の子供たちを除き、23℃で飼育した個体たちはいずれもフジ型になった一方、20℃で飼育した個体たちは基本型やフジ型が混在し、16℃で育成した個体たちにはフジ型はみられず、すべて基本型やエゾ型になった[75]。また同じ20℃で羽化した基本型の成虫たちでも、父親はエゾ型だったりフジ型だったりする場合があった[75]。
- エゾ型が発生するような環境にはカブトムシは少ないと考えられる[68]。
- この時の脚の形は一定ではない[84]。
- ウスバカミキリ、イタヤカミキリ、ゴマダラカミキリなど[101]。
- 本州・四国・九州のブナ帯はツヤハダクワガタ、マダラクワガタ、ルリクワガタ、オニクワガタなどの生息域になっている[92]。
- ミクラミヤマクワガタにもこのような習性が見られる[118]。
- 島谷はこれ以前にも244日間(2016年7月1日 - 2017年3月2日)、255日間(2018年7月22日 - 2019年4月2日)の長寿記録を樹立したことがある[130]。
- 該当個体は死亡まで跗節の欠損がまったくなかった[132]。
- 鋭く尖るとする文献[146]、尖らないとする文献の両方がある[151]。
- 奥谷禎一は1952年7月に兵庫県篠山の山中でミヤマクワガタの幼虫2頭を採取し、うち1頭は3年後の1955年9月に蛹化したが、もう1頭は1956年4月時点でも蛹化していなかった[156]。
- 荒谷邦雄 (1987) がアカマツとナラ類を中心とした二次林の中で、伐採後数年を経た1本のアカマツの株からミヤマクワガタの2齢幼虫2頭、3齢幼虫(終齢幼虫)7頭を採集した記録があり、成長段階の異なる幼虫たちが同じアカマツの株から同時に採集されたため、少なくとも採集時点から遡って2、3年前から複数のミヤマクワガタのメスが産卵していたものと思われる[166]。
- 蛹化・羽化の時期を秋とする文献もある[6]。
- Huang, H. & C.-C. Chen 『Stag Beetles in China I』 (2010) [48]。
- 2010年時点では体長79.6 mmの個体(2002年)が最大記録とされていたが[6]、2018年に85.3 mmの個体が発表されている[170]。
- クワガタムシの幼虫に食害されたほだ木は材の中央部に大きな穴が空き、わずかな衝撃で容易に破壊されるようになる[196]。
- 鹿沼市ではクワガタムシそのものをおにむし(メスはおにばば)、大阪市ではげんじ(メスはぶた)と呼ぶ[200]。
- 小島は1958年(昭和33年)2月21日生まれ[207]。
出典
- 上野俊一, 黒澤良彦 & 佐藤正孝 1985, p. 329.
- 林長閑 1987, p. 20.
- 黒澤良彦 1976, p. 2.
- 『生物の科学 遺伝』編集部『クワガタムシの生物学』エヌ・ティー・エス、2022年10月22日初版第一刷発行、53頁
- 黒澤良彦 1976, p. 3.
- 藤田宏 2010, p. 94.
- 矢野宏二 編『世界の昆虫英名辞典 vol.2 M-Z』櫂歌書房、2018年5月12日初版第1刷、715頁
- BE・KUWA 2013, p. 6.
- 深山鍬形. コトバンクより2024年3月25日閲覧。
- "深山鍬形虫". 動植物名よみかた辞典 普及版. コトバンクより2024年3月25日閲覧。
- 今森光彦 & 荒井真紀 2010, p. 44.
- 佐藤仁 2020, p. 15.
- 小島啓史 1996, p. 119.
- 江副水城『蟲名の語源を探る 蟲名源 本邦空前の語源書』2014年2月14日第1刷発行、100頁「38 クワガタ」ISBN 978-4434185922。
- 葛生淳一『群馬の昆虫生態図鑑』メイツ出版、2016年6月10日第1版・第1刷発行、108頁「コウチュウ > ミヤマクワガタ クワガタムシ科」ISBN 978-4780417616。
- 土屋利行(編)「発表!第23回クワガタ飼育レコード」『BE・KUWA』第89号、むし社、2023年11月17日、39頁。 - No.89(2023年秋号)。『月刊むし』2023年12月増刊号。
- 土屋利行(編)「日本産中〜大型種クワガタムシの飼育レコード個体(2023年度版)」『BE・KUWA』第89号、むし社、2023年11月17日、113頁。 - No.89(2023年秋号)。『月刊むし』2023年12月増刊号。
- BE・KUWA 2013, p. 5.
- 林長閑 1987, p. 83.
- 岡島秀治 & 荒谷邦雄 2012, p. 141.
- BE・KUWA編集部 2013, p. 39.
- 佐藤仁 2020, p. 16.
- BE・KUWA 2013, pp. 24–27.
- 藤田宏 2010, p. 9.
- BE・KUWA編集部 2013, p. 38.
- 安達鉄美 1958, p. 37.
- 安達鉄美 1958, pp. 37–38.
- 林長閑 1987, p. 38.
- 林長閑 1987, pp. 32–34.
- 犬飼哲男 1924, p. 91.
- 犬飼哲男 1924, pp. 85–86.
- 林長閑 1987, p. 34.
- 犬飼哲男 1924, p. 86.
- 林長閑 1987, p. 37.
- 『改訂新版 世界文化生物大図鑑 昆虫II 甲虫』世界文化社、2004年6月15日初版第1刷発行、64頁。
- 森本桂(監修)『原色昆虫大図鑑 第II巻(甲虫 篇)』2007年5月10日 新訂版初版発行(1963年6月30日旧版初版発行)126頁(北隆館)
- 横川忠司 2019.
- 岡島秀治, 山口進 & 黒澤良彦 1988, p. 72.
- 岡島秀治 & 荒谷邦雄 2012, p. 140.
- 岡島秀治 & 荒谷邦雄 2012, pp. 140–141.
- BE・KUWA 2013, p. 14.
- 坂爪真吾 2023, p. 159.
- 『BE・KUWA』第85号(2022年秋号)35頁(むし社)
- BE・KUWA 2024, p. 113.
- BE・KUWA 2024, p. 115.
- 『BE・KUWA』第80号(2021年8月13日)117頁「21世紀版 クワガタムシ飼育のスーパーテクニック (64)日本のクワガタムシと海外種の比較と考察1」(むし社)
- 藤田宏 2010, p. 83.
- 佐藤仁 2020, p. 6.
- 吉田賢治 2015, p. 105.
- 藤田宏 2010, p. 44.
- 安達鉄美 1958, p. 38.
- 土屋利行 2014, p. 27.
- 小島啓史 2017, p. 86.
- 小島啓史2 2019, p. 84.
- 土屋利行「KIROKU+HOKOKU > 鹿児島県黒島産ミヤマクワガタについて」『月刊むし』第304号、むし社、1996年6月1日、44頁。
- 山口進 1989, p. 77.
- 山口進 1989, p. 78.
- 上野俊一, 黒澤良彦 & 佐藤正孝 1985, p. 330.
- 小島啓史 2007, p. 32.
- 林長閑 1987, p. 21.
- 藤田宏「日本の幻のクワガタムシ?3 第3話 奄美大島のオオミヤマクワガタ > 「対馬」の採集ラベルが付いたミヤマクワガタ」『月刊むし』第402号、むし社、2004年8月1日、69頁。
- 林長閑 1987, pp. 21–22.
- 境野広行 1985, p. 249.
- 小島啓史2 2019, p. 83.
- 森本桂(監修)『原色昆虫大図鑑 第II巻(甲虫 篇)』2007年5月10日 新訂版初版発行(1963年6月30日旧版初版発行)127頁(北隆館)
- 小島啓史 1996, p. 214.
- 小島啓史 2013, p. 66.
- 小島啓史2 2019, p. 85.
- 小島啓史 2013, p. 67.
- 岡島秀治 et al. 1983, p. 132.
- 小島啓史 2017, p. 85.
- 小島啓史 2013, pp. 66–67.
- 小島啓史 1996, pp. 213–216.
- 『BE・KUWA』第11号(2004年6月25日)、小島啓史、55頁「ミヤマクワガタはだれでも飼える!?」(むし社)
- 小島啓史 2013, p. 68.
- 谷田浩一 1999, p. 70.
- 藤澤樹 2004, p. 137.
- 『BE・KUWA』第11号(2004年6月25日)、小島啓史、55頁「ミヤマクワガタはだれでも飼える!?」(むし社)
- 小島啓史 2013, pp. 68–69.
- 土屋利行 2014, p. 29.
- 林長閑 1987, p. 54.
- 岡島秀治, 山口進 & 黒澤良彦 1988, p. 73.
- 小島啓史 1996, p. 124.
- 林長閑 1987, p. 53.
- 今井初太郎『里山・雑木林の昆虫図鑑 春夏秋冬』メイツ出版、2018年4月20日第1版・第1刷発行、91頁。
- 織部利信 2017, p. 40.
- 「ミヤマクワガタ飼育最長310日 金沢工大・島谷教授 ●低温環境で国内記録更新 ●専門誌で紹介」『北國新聞』北國新聞社、2023年6月16日。2024年4月8日閲覧。オリジナルの2023年4月8日時点におけるアーカイブ。
- 小島啓史 1996, p. 118.
- 小島啓史2 2017, p. 91.
- 葛生淳一『群馬の昆虫生態図鑑』メイツ出版、2016年6月10日第1版・第1刷発行、109頁「コウチュウ > ノコギリクワガタ クワガタムシ科」ISBN 978-4780417616。
- 大林延夫, 新開孝 & 永幡嘉之 2010, p. 128.
- 林長閑 1987, p. 22.
- 小島啓史 2013, p. 69.
- 小島啓史 1996, pp. 118–119.
- 小島啓史 1996, pp. 121–122.
- 小島啓史 1996, p. 123.
- 小島啓史2 2016, p. 92.
- 土屋利行 2014, p. 17.
- 小島啓史 1996, p. 122.
- 林長閑 1987, pp. 22–23.
- 小島啓史 2016, pp. 112–113.
- 小島啓史 1996, pp. 122–123.
- 小島啓史 2016, pp. 110–111.
- 岡島秀治, 山口進 & 黒澤良彦 1988, p. 74.
- 『読売新聞』1991年8月6日東京朝刊千葉讀賣2面27頁「おもしろ不思議昆虫ワールド(4) ミヤマクワガタ 大きな雄が子供に人気」(読売新聞東京本社・千葉支局 県立中央博物館学芸研究員 直海俊一郎)
- 『読売新聞』2000年9月15日東京朝刊山形県版山形2面31頁「[山形昆虫記]ミヤマクワガタ かみつき合いに迫力=山形」(読売新聞東京本社・山形支局)
- 塚脇智成 1995, p. 12.
- 山口進 1989, p. 76.
- 小島啓史2 2007, p. 140.
- 小島啓史 1996, p. 121.
- 『BE・KUWA』第34号(2010年冬号/3月増刊号、2010年2月26日発行)85-86頁、小島啓史「21世紀版 クワガタムシ飼育のスーパーテクニック 17 クワガタの雌雄比率」(むし社)
- 小島啓史 1996, p. 129.
- 小島啓史 1996, p. 132.
- 小島啓史 1996, p. 130.
- 小島啓史 1996, p. 131.
- 小島啓史 1996, p. 120.
- 小島啓史 1996, pp. 119–120.
- 林長閑 1987, p. 55.
- 林長閑 1987, p. 56.
- 小田英智(文・解説)、久保秀一(写真)『クワガタ《新版》』偕成社、1988年8月(新版9刷)、〈カラー自然シリーズ〉3、19頁。
- 『BE・KUWA』第2号(2002年3月25日)、爆発栄螺、49頁「ミヤマクワガタの飼育 これで完璧!! その一 国産ミヤマ編」(むし社)
- 小島啓史 2020, p. 92.
- 小島啓史3 2019, p. 86.
- 小島啓史 2020, p. 93.
- 林長閑 1987, p. 58.
- 小島啓史 1996, p. 133.
- 土屋利行 2014, p. 18.
- 林長閑 1987, p. 59.
- 『生物の科学 遺伝』編集部『クワガタムシの生物学』エヌ・ティー・エス、2022年10月22日初版第一刷発行、147頁。
- 島谷祐司 2023, p. 36.
- 豊田哲也 2019, p. 25.
- 島谷祐司 2023, p. 37.
- 島谷祐司 2023, p. 36-37.
- 荒谷邦雄「KIROKU+HŌKOKU > 164日間生きたミヤマクワガタ」『月刊むし』第193号、むし社、1987年3月1日、40頁。
- 『BE・KUWA』第34号(2010年冬号/3月増刊号、2010年2月26日発行)86頁、小島啓史「21世紀版 クワガタムシ飼育のスーパーテクニック 17 クワガタの雌雄比率」(むし社)
- 林長閑 1987, pp. 80–81.
- 吉田賢治 2015, p. 106.
- 林長閑 1987, pp. 42–43.
- 林長閑 1987, p. 61.
- 林長閑 1987, p. 42.
- 林長閑 1956, p. 47.
- 林長閑 1987, p. 62.
- 林長閑 & 奥谷禎一 1956, p. 8.
- 『日本産幼虫図鑑』2005年10月11日初版第1刷発行、学習研究社、231頁
- 林長閑 1987, pp. 47–48.
- 林長閑 1956, p. 12.
- 上亟健介 2007, p. 42.
- 林長閑 1956, p. 44.
- 山口進 1989, p. 79.
- 林長閑 1956, p. 45.
- 林長閑 & 奥谷禎一 1956, p. 9.
- 林長閑 & 奥谷禎一 1956, pp. 8–9.
- 林長閑「KIROKU+HŌKOKU > ミヤマクワガタ幼虫の頭蓋の成長」『月刊むし』第193号、むし社、1987年3月1日、40頁。
- 土屋利行2 2007, p. 57.
- 小島啓史 1996, p. 138.
- 林長閑 & 奥谷禎一 1956, p. 7.
- 林長閑 1987, p. 64.
- 小島啓史 1996, p. 139.
- 『生物の科学 遺伝』編集部『クワガタムシの生物学』エヌ・ティー・エス、2022年10月22日初版第一刷発行、117頁。
- 林長閑 1987, p. 23.
- 林長閑 1987, p. 24.
- 小島啓史2 2017, pp. 90–91.
- 土屋利行 2014, p. 19.
- 林長閑 1987, pp. 23–24.
- 林長閑 1987, p. 73.
- 荒谷邦雄「KIROKU+HŌKOKU > ミヤマクワガタの幼虫をアカマツ朽木から採集」『月刊むし』第193号、むし社、1987年3月1日、40頁。
- 『BE・KUWA』第11号(2004年6月25日)、小島啓史、57頁「ミヤマクワガタはだれでも飼える!?」(むし社)
- 『生物の科学 遺伝』編集部『クワガタムシの生物学』エヌ・ティー・エス、2022年10月22日初版第一刷発行、154頁。
- 『BE・KUWA』第2号(2002年3月25日)、爆発栄螺、52頁「ミヤマクワガタの飼育 これで完璧!! その一 国産ミヤマ編」(むし社)
- 土屋利行(編)「発表!第23回クワガタ飼育レコード」『BE・KUWA』第89号、むし社、2023年11月17日、16頁。 - No.89(2023年秋号)。『月刊むし』2023年12月増刊号。
- 林長閑 1987, p. 66.
- 冨永幸雄「KIROKU+HŌKOKU > ミヤマクワガタの秋期羽化について」『月刊むし』第193号、むし社、1987年3月1日、40-41頁。
- 林長閑 1987, p. 50.
- 小島啓史 1996, p. 140.
- 『BE・KUWA』第11号(2004年6月25日)、小島啓史、57頁「ミヤマクワガタはだれでも飼える!?」(むし社)
- 岡島秀治 & 荒谷邦雄 2012, p. 140-141.
- 沢田和宏「ミヤマクワガタを石下より採集」(PDF)『甲虫ニュース』第57号、甲虫談話会、1982年6月、4頁、2024年4月11日閲覧。
- 『BE・KUWA』第2号(2002年3月25日)、爆発栄螺、49頁「ミヤマクワガタの飼育 これで完璧!! その一 国産ミヤマ編」(むし社)
- BE・KUWA 2013, p. 24.
- リアル・イトー 2013, p. 37.
- 塚脇智成 1995, p. 15.
- リアル・イトー 2013, p. 36.
- BE・KUWA編集部 2013, pp. 38–39.
- 藤田宏 2010, p. 95.
- BE・KUWA 2013, p. 27.
- 土屋利行(編)「外国産クワガタムシの飼育レコード個体(2023年度版)」『BE・KUWA』第89号、むし社、2023年11月17日、116頁。 - No.89(2023年秋号)。『月刊むし』2023年12月増刊号。
- 水沼哲郎・永井信二『世界のクワガタムシ大図鑑』1999年6月1日3刷発行(1994年5月30日初版発行)、むし社
- 林長閑 1987, pp. 86–87.
- 土屋利行 2014, p. 2.
- 土屋利行 2014, p. 16.
- ホリデー・クリエイツ 企画編集 編「190個体 ギネス級多数登場! ドラゴン先生コレクション 原寸 世界のカブト・クワガタ大図鑑 > その他の日本のクワガタ」『はじめてのカブト・クワガタ昆虫採集』940号、ネコ・パブリッシング〈Neko mook〉、2006年6月27日、50頁。ISBN 978-4777004409。国立国会図書館書誌ID:000008232491・全国書誌番号:21051258。
- 前田信二『東京いきもの図鑑』(第1版・第1刷発行)メイツ出版、2011年4月30日、99頁。ISBN 978-4780409826。 NCID BB06069259。国立国会図書館書誌ID:000011295757・全国書誌番号:22000545。
- 『読売新聞』1976年7月29日東京夕刊第4版第二社会面8頁「'76昆虫記 人気一番、ミヤマクワガタ 数が少なく1500円-900円」(読売新聞東京本社)
- 『朝日新聞』1994年8月8日東京朝刊第一総合面1頁「虫売り今昔(天声人語)」(朝日新聞東京本社)
- 『読売新聞』2003年8月3日大阪朝刊セ奈良27頁「[探してみよう奈良の虫](9) ミヤマクワガタ(クワガタムシ科) けんか弱い?(連載)=奈良」(読売新聞大阪本社)
- 藤下章男, 岡田剛 & 枯木熊人 1967, p. 16.
- 藤下章男 & 岡田剛 1966, p. 177.
- 藤下章男, 岡田剛 & 枯木熊人 1967, p. 10.
- 林長閑 1987, p. 8.
- 『毎日新聞』2007年4月13日東京朝刊家庭面15頁「呼び名でわかる:動物・昆虫編 カメムシ/セミ/クワガタのメス」「クワガタの呼び名いろいろ」(毎日新聞東京本社【銅山智子】)
- 『毎日新聞』2011年6月14日大阪朝刊奈良地方版21頁「なるほドリ:クワガタにもゲンジ、ヘイケがあるの? 葛城地域では呼び分け “源平合戦”がルーツに /奈良」(毎日新聞大阪本社・奈良支局 回答・山本和良)
- 『朝日新聞』2000年2月6日大阪朝刊28頁「森林復活へ協力者募る ゲンジの森実行委 和歌山 /大阪」(朝日新聞大阪本社)
- 『読売新聞』2009年4月23日大阪朝刊和セ2面30頁「「ゲンジの森」 環境相表彰 高野山で希少動植物保護=和歌山」(読売新聞大阪本社)
- 林長閑 1987, p. 87.
- 『毎日新聞』2005年9月14日東京朝刊長野地方版26頁「信州・生き物探訪:/37 クワガタムシ(松本市など) /長野」(毎日新聞東京本社【武田博仁】)
- 小島啓史 2018, p. 51.
- 小島啓史 1996, p. 271.
- 『毎日新聞』2003年8月25日東京朝刊科学面29頁「[生き物たちのシグナル]第1部 都会に住んで/17 カブトムシ・クワガタムシ 温暖化で「南方系」進出――クワガタムシ 幼虫が作る腐葉土活用も――カブトムシ」(毎日新聞東京本社【金田健】)
- 小島啓史 2019, p. 81.
- 小島啓史2 2016, p. 93.
- 『毎日新聞』2008年9月29日東京朝刊長野地方版23頁「信州・野生の横顔(プロフィル):ミヤマクワガタ 大あご武器に争う/ 長野」(毎日新聞東京本社【武田博仁】)
- 『毎日新聞』2006年7月7日東京朝刊長野地方版25頁「ミヤマクワガタ:安曇野の雑木林に姿現す /長野」(毎日新聞東京本社【武田博仁】)
- 『毎日新聞』2014年8月4日大阪夕刊社会面10頁「クワガタ:異変、「ミヤマ」急減 「下手投げ」で「ノコギリ」に敗れ 温暖化で競合」(毎日新聞大阪本社【斎藤広子】)
- 『毎日新聞』2022年6月16日東京朝刊福島地方版19頁「全国クワガタサミット:今、昆虫が熱い! 「聖地」でクワガタサミット 環境問題、共生語る 田村で18、19日 /福島」(【根本太一】)
- 『毎日新聞』2014年8月13日大阪朝刊岡山地方版20頁「きび談語:日本の代表的クワガタムシ「ミヤマクワガタ」が… /岡山」(毎日新聞大阪本社【原田悠自】)
- 『読売新聞』2001年1月15日大阪朝刊セ和歌面28頁「[木の国・海の国わかやま](10)高野の森 昆虫の楽園へ(連載)=和歌山」(読売新聞大阪本社)
- 『生物の科学 遺伝』編集部『クワガタムシの生物学』エヌ・ティー・エス、2022年10月22日初版第一刷発行、136-137頁。
- 土屋利行 2014, p. 6.
- 土屋利行 2014, p. 8.
- 土屋利行 2014, p. 12.
- “ミヤマクワガタを追え|事件ファイル”. 名探偵コナン. 読売テレビ (2012年7月7日). 2024年4月16日時点のオリジナルよりアーカイブ。2024年4月16日閲覧。
- ミヤマ☆仮面 2013, p. 40.
参考文献
むし社発行の文献
- 塚脇智成「伊豆諸島におけるミヤマクワガタの1新亜種」『月刊むし』第292号、むし社、1995年6月1日、12-16頁。
- 谷田浩一「累代飼育におけるミヤマクワガタの歯型変化」『月刊むし』第340号、むし社、1999年6月1日、70-71頁。
- 小島啓史 著、藤田宏 編『クワガタムシ飼育のスーパーテクニック』1号(第3版)、むし社〈月刊むし・ブックス〉、2000年4月1日(原著1996年11月30日 初版発行)。ISBN 978-4943955313。 NCID BA56875616。
- 小島啓史「21世紀版 クワガタムシ飼育のスーパーテクニック 特別編 ミヤマクワガタの繁殖飼育」『BE・KUWA』第23号、むし社、2007年5月17日、28-33頁。
- 『BE・KUWA』No.24(2007年夏号)「日本のクワガタムシ大特集!!」(むし社) - 『月刊むし』2007年9月増刊号。
- 上亟健介「主に本州で得られるクワガタムシ10種の幼虫判別法」『BE・KUWA』第24号、むし社、2007年8月18日、38-43頁。
- 土屋利行「日本のクワガタ各種の基本的飼育法」『BE・KUWA』第24号、むし社、2007年8月18日、56-59頁。
- 小島啓史「21世紀版 クワガタムシ飼育のスーパーテクニック 第7回 飼育装置の冷却方法」『BE・KUWA』第24号、むし社、2007年8月18日、140-143頁。
- 藤田宏 著「解説本文 > ミヤマクワガタ属 Lucanus」、(監修者)水沼哲郎・永井信二・鈴村勝彦 編『世界のクワガタムシ大図鑑』 6巻、むし社〈月刊むし・昆虫大図鑑シリーズ〉、2010年12月20日、83-107頁。ISBN 978-4943955061。 NCID BB04284986。国立国会図書館書誌ID:026998699・全国書誌番号:22674089。
- 『BE・KUWA』No.47(2013年春号)「日本のミヤマクワガタ大特集!!」(むし社) - 『月刊むし』2013年6月増刊号。
- 「古強者 日本のミヤマクワガタ大特集 > 日本のミヤマクワガタ大図鑑」『BE・KUWA』第47号、むし社、2013年4月16日、4-30頁。
- リアル・イトー「伊豆大島のミヤマクワガタ」『BE・KUWA』第47号、むし社、2013年4月16日、36-37頁。
- 編集部「ミヤマクワガタ採集案内」『BE・KUWA』第47号、むし社、2013年4月16日、38-39頁。
- ミヤマ☆仮面「クワガタ愛を持つ男 ミヤマ☆仮面参上! ROUND 1」『BE・KUWA』第47号、むし社、2013年4月16日、40-41頁。
- 小島啓史「21世紀版 クワガタムシ飼育のスーパーテクニック 23 ミヤマクワガタの型の謎」『BE・KUWA』第47号、むし社、2013年4月16日、66-69頁。
- 土屋利行『初めて飼うクワガタムシ 日本産クワガタ飼育ガイド!』むし社、2014年8月1日。ISBN 978-4943955214。国立国会図書館書誌ID:026977777・全国書誌番号:22664016。
- 小島啓史(著)、土屋利行(編)「21世紀版 クワガタムシ飼育のスーパーテクニック 44 樹液のメイカーとクワガタの複雑な関係」『BE・KUWA』第60号、むし社、2016年7月12日、110-114頁。 - No.60(2016年夏号)。『月刊むし』2016年8月増刊号。
- 小島啓史(著)、土屋利行(編)「21世紀版 クワガタムシ飼育のスーパーテクニック 45 なぜクワガタの生物多様性を守らなくてはならないのか?」『BE・KUWA』第61号、むし社、2016年10月18日、90-93頁。 - No.61(2016年秋号)。『月刊むし』2016年12月増刊号。
- 『BE・KUWA』No.64(2017年夏号)「日本のクワガタムシ大特集!!2017」(むし社) - 『月刊むし』2017年8月増刊号。
- 織部利信(著)、土屋利行(編)「日本のクワガタムシの飼育方法」『BE・KUWA』第64号、むし社、2017年8月11日、37-45頁。
- 小島啓史(著)、土屋利行(編)「21世紀版 クワガタムシ飼育のスーパーテクニック 48 ミヤマクワガタの謎」『BE・KUWA』第64号、むし社、2017年8月11日、84-87頁。
- 小島啓史(著)、土屋利行(編)「21世紀版 クワガタムシ飼育のスーパーテクニック 49 クワガタムシ幼虫の食性進化について」『BE・KUWA』第65号、むし社、2017年11月11日、90-53頁。 - No.65(2017年秋号)。『月刊むし』2017年12月増刊号。
- 小島啓史(著)、土屋利行(編)「21世紀版 クワガタムシ飼育のスーパーテクニック 50 地球温暖化に追われるクワガタたち」『BE・KUWA』第66号、むし社、2018年2月23日、50-93頁。 - No.66(2018年冬号)。『月刊むし』2018年3月増刊号。
- 小島啓史「21世紀版 クワガタムシ飼育のスーパーテクニック 54 クワガタの採集・飼育・観察から見えてきたこと(中編)」『BE・KUWA』第70号、むし社、2019年2月22日、80-83頁。 - No.70(2019年冬号)。『月刊むし』2019年3月増刊号。
- 小島啓史「21世紀版 クワガタムシ飼育のスーパーテクニック 56 クワガタムシ野外観察のススメ ミヤマクワガタのフジ型が強いのはなぜか?」『BE・KUWA』第72号、むし社、2019年8月9日、82-85頁。 - No.72(2019年夏号)。『月刊むし』2019年8月増刊号。
- 小島啓史「21世紀版 クワガタムシ飼育のスーパーテクニック 57 クワガタムシ野外観察のススメ なぜ日本のオオクワガタは不必要な戦いを避けるのか?」『BE・KUWA』第73号、むし社、2019年11月15日、86-89頁。 - No.73(2019年秋号)。『月刊むし』2019年12月増刊号。
- 豊田哲也「KIROKU+HŌKOKU > ミヤマクワガタの飼育環境下における長寿記録」『月刊むし』第586号、むし社、2019年12月1日、25-26頁。
- 『BE・KUWA』No.75(2020年春号)「世界のミヤマクワガタ大特集!!」(むし社) - 『月刊むし』2020年6月増刊号。
- 佐藤仁「世界のミヤマクワガタ大図鑑」『BE・KUWA』第75号、むし社、2020年5月23日、6-33頁。
- 小島啓史「21世紀版 クワガタムシ飼育のスーパーテクニック 59 日本産オオクワガタを見直す 2」『BE・KUWA』第75号、むし社、2020年5月23日、92-95頁。
- 島谷祐司「KIROKU+HŌKOKU > ミヤマクワガタ成虫の低温環境飼育下での長寿記録」『月刊むし』第634号、むし社、2023年12月1日、36-37頁。
- 土屋利行(編)「チビ&♀レコード個体(2024年度版)」『BE・KUWA』第90号、むし社、2024年1月23日、113-115頁。 - No.90(2024年冬号)。『月刊むし』2024年3月増刊号。
その他文献
- 犬飼哲男「鍬形蟲の變異の統計學的研究」『札幌博物学会会報』第9巻第1号、札幌博物學會、1924年11月10日、77-91頁。
- 林長閑、奥谷禎一「ミヤマクワガタの幼虫(鞘翅目幼虫の研究 III)」『ニュー・エントモロジスト』第5巻第4号、信州昆虫学会、1956年11月10日、7-9頁、国立国会図書館書誌ID:000000000402・全国書誌番号:00000406・NCID AN00079744。
- 林長閑「日本産クワガタムシ科の幼期形態(鞘翅目幼虫の研究 IV)」『ニュー・エントモロジスト』第5巻第4号、信州昆虫学会、1956年11月10日、10-13頁、国立国会図書館書誌ID:000000000402・全国書誌番号:00000406・NCID AN00079744。
- 安達鉄美「ミヤマクワガタの大きさの季節的変化および大腮, 頭幅, 翅鞘の関係について」『新昆蟲』第11巻第6号、北隆館、1958年5月25日、37-38頁。
- 藤下章男、岡田剛「シイタケほだ木の虫害防除に関する研究(1)―ほだ木を食害する種類(鞘翅目)とその発生数―」『昭和40年度 林業試験場報告』広島県立林業試験場、1966年4月1日、177-185頁。 NCID AN00380940。国立国会図書館書誌ID:000001479985・全国書誌番号:81004274。
- 藤下章男、岡田剛、枯木熊人「シイタケほだ木の害虫防除に関する研究 ――害虫の種類と加害様式および生態的,化学的防除法の考察――」『研究報告』2号、広島県立林業試験場、1967年10月20日、9-27頁。 NCID AN0038093X。国立国会図書館書誌ID:000000020305・全国書誌番号:00020450。
- 黒澤良彦『クワガタムシ科 [Check-list of Coleopt of Japan Family Lucanidae]』(PDF) 1巻、甲虫談話会〈日本産甲虫目録〉、1976年12月30日。 オリジナルの2024年3月29日時点におけるアーカイブ。2024年3月29日閲覧。
- 岡島秀治(監修)、山口進、山口就平、青木俊明『最新図鑑・クワガタムシのすべて』45号(第1刷発行)、双葉社〈なんでもプレイ百科 ワイド版〉、1983年8月5日。国立国会図書館書誌ID:000001625527・全国書誌番号:83042658。
- 黒澤良彦 著「クワガタムシ科 Lucanidae」、(編著者)上野俊一・黒澤良彦・佐藤正孝 編『原色日本甲虫図鑑(II)』69号(初版発行)、保育社〈保育社の原色図鑑〉、1985年1月31日、329-346頁。doi:10.11501/12602190。ISBN 978-4586300693。 NCID BN00135785。NDLJP:10.11501/12602190。
- 林長閑『ミヤマクワガタ』8号、文一総合出版〈日本の昆虫〉、1987年7月29日。doi:10.11501/12614719。ISBN 978-4829931691。 NCID BN01217218。NDLJP:12614719。
- 岡島秀治・山口進(共著) 著、黒澤良彦(監修) 編『クワガタムシ』保育社、1988年6月20日。ISBN 978-4586310326。 NCID BN0257447X。国立国会図書館書誌ID:000001926529・全国書誌番号:88045128。
- 「ミヤマクワガタ」『クワガタムシ』49号(初版第1刷発行)、小学館〈小学館の学習百科図鑑〉、1989年7月20日、76-83頁。ISBN 978-4092170490。 NCID BN03779718。国立国会図書館書誌ID:000001988999・全国書誌番号:89045643。
- 藤澤樹「僕のミヤマクワガタ飼育記 from北海道 part.6」『昆虫フィールド』第34号、くぬぎ出版、2004年1月1日、134-137頁。 - 2004年1月/2月号。
- 大林延夫(監修)、新開孝(写真)、永幡嘉之(本文) 著「コウチュウ目 クワガタムシ科 ミヤマクワガタ 深山鍬形虫 Lucanus maculifemoratus」、NHK出版 編『里山の昆虫ハンドブック』(第1刷発行)NHK出版、2010年6月25日、128頁。ISBN 978-4140112922。 NCID BB02798144。国立国会図書館書誌ID:000010903242・全国書誌番号:21793984。
- 今森光彦、荒井真紀「ミヤマクワガタ Lucanus maculifemoratus 深山鍬形虫」『野山の昆虫』7号、山と溪谷社〈新ヤマケイポケットガイド〉、2010年7月1日、44-45頁。ISBN 978-4635062701。 NCID BB02796025。国立国会図書館書誌ID:000010896386・全国書誌番号:21777245。 - 1999年4月20日発行の『野山の昆虫』〈ヤマケイポケットガイド(10)〉の改訂新装版。
- 岡島秀治・荒谷邦雄 監修『日本産コガネムシ上科標準図鑑』(初版第1刷発行)学研教育出版、2012年6月26日。ISBN 978-4054038479。 NCID BB09664747。国立国会図書館書誌ID:023683950・全国書誌番号:22113002。
- 吉田賢治『フィールドガイド 日本のクワガタムシ・カブトムシ観察図鑑 日本に棲息する種類と見分け方、観察のポイントがわかる』誠文堂新光社、2015年6月15日。ISBN 978-4416715406。 NCID BB19123448。国立国会図書館書誌ID:026406113・全国書誌番号:22583912。
- 横川忠司『クワガタムシハンドブック 増補改訂版』(初版第1刷発行)文一総合出版、2019年6月17日、46-47頁。ISBN 978-4829981597。 NCID BB28660415。国立国会図書館書誌ID:029686968・全国書誌番号:23231159。。
- 坂爪真吾「37 ミヤマクワガタ 深山の雄鹿」『日本百名虫 フォトジェニックな虫たち』1415号(第1刷発行)、文藝春秋〈文春新書〉、2023年7月20日、156-159頁。ISBN 978-4166614158。 NCID BD03073673。国立国会図書館書誌ID:032910932・全国書誌番号:23871229。