ヨヒンベノキ属
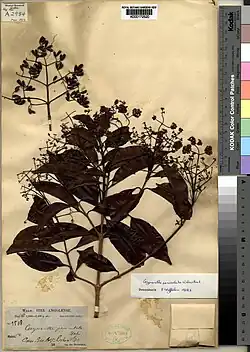
ヨヒンベノキ属(ヨヒンベノキぞく、学名: Corynanthe)[1]とは、アカネ科の属の一つである。分布は熱帯アフリカ西部からアンゴラにかけてである[2]。2014年に完全な統合が結論付けられるまでPausinystalia属と近縁属の関係にあると見做され、アカネ科における連階級の位置づけに関しても21世紀初頭にタニワタリノキ連に落ち着くまではキナノキ連やヒョウタンカズラ連に置かれていた(参照:#分類史)。
| ヨヒンベノキ属 | ||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
 | ||||||||||||||||||||||||||||||||||||
| 分類(APG IV) | ||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||
| 学名 | ||||||||||||||||||||||||||||||||||||
| Corynanthe Welw. | ||||||||||||||||||||||||||||||||||||
| タイプ種 | ||||||||||||||||||||||||||||||||||||
| Corynanthe paniculata Welw. | ||||||||||||||||||||||||||||||||||||
| シノニム | ||||||||||||||||||||||||||||||||||||
| 種 | ||||||||||||||||||||||||||||||||||||
|
本文参照 |
催淫剤の原料となるヨヒンビンを含有するヨヒンベノキ(Corynanthe johimbe)が本属に属すが、本属の他の種にもそれとは異なる交感神経遮断作用を有するアルカロイドを含むものが見られる(参照:#利用)。
特徴
ヨヒンべノキ属の特徴として挙げられるのは、重ならず敷石状となる花冠裂片、これを延長する無毛でよく発達した付属物、基部に接着し上向きに重なり合う覆瓦状の多数の胚珠、そして蒴果の存在である[3]。ただこれは2014年に分子系統学的研究に基づいて Corynanthe属とPausinystalia属が統合された後に結論付けられたものであり(参照:#分類史)、各部位の形態について体系的に述べたものは分子系統学が盛んとなる21世紀より前の著作からCorynanthe属とPausinystalia属それぞれについて、以下に引用することとする[4]。
- Corynanthe属
Corynanthe paniculata の図版(C: 花; D: 果実; E: 種子)[5]高木性: 葉軸、生長軸、花序軸が十字対生。
葉が突出した二次脈を有し二次脈間が網目状; ダニ室が大抵の場合存在し、有毛もしくは稀に無毛で、crypt型[注 2]もしくは穴型(英: pit-type)との中間体に属す。
托葉が脱落性で葉柄間性、芽内形態では相互に連結するか相互をくるみ合い、内側では基部が有毛で、通常の粘液毛が托葉外縁と平行に着生し、多くの場合Λの基部2ヶ所に集中する。
花序が頂生もしくは腋生、密錐性[注 3]、多かれ少なかれ疎生だが頂生の花の房はほぼ頭状。
花が4(-5)数性。
萼が3角形から円形の萼片付きの短い萼筒から成り、しばしば1-2本の粘液毛が萼片の凹所に見られる。
花冠が白色もしくは桃色、外側が無毛、高坏形の花冠筒付き; 花冠裂片が重なり合わない敷石状、内側有毛、修道士の頭巾状の頂点のほぼ先端部に長い/線形の/先端部が肥大化した/球状の/湾曲した付属物が見られる。
葯が花冠外に突出し、矢じり状、縦方向に開き、中間部で接着(英: medifixed)、短い花糸が花冠裂片基部間に接着。
花柱および柱頭が花冠外に突出; 柱頭が球状、分岐せず乳頭毛あり。
子房が胎座が下垂し、隔壁の頂点に接着、多数の上向きとなった覆瓦状に重なり合う胚珠により覆われる。
蒴果が2室、細長く、頂点から開き、ほぼ100パーセント胞背裂開性[注 4]であり聊か胞間裂開性[注 5]; 萼は宿存性。
種子が有翼;
翼 ()が双極性、内胚乳を有する部分の高さでは細く、先端が3角形、基部は(燕尾様に)分岐; 内胚乳を有する部分の基部でへそが点状; 内胚乳は油質、種子全長の1/3-1/4; 線状の胚芽が楕円形の子葉を有し、へそ向きの幼根も有す。

- 旧Pausinystalia属
高木性で樹高9-40メートル。葉軸、生長軸および花序軸は十字対生、ヨヒンベノキは3輪生。
葉は無毛、二次脈が突出し、二次脈間網目状脈が顕著; ダニ室(時に存在せず)は有毛もしくは無毛、crypt型[注 2]、穴型もしくは中間体に属す。
托葉は葉柄間性、形態的にCorynanthe属のものに類似する。
花序は頂生もしくは腋生、密錐性[注 3]、疎生だが頂生花を有するグループもしくは3対のものは密生しがちな傾向が見られる。
花は(4-)5-(6)数性。
萼は3角形から円形の萼片付きの短い萼筒から成り、時に1-2本の粘液毛が萼片の凹所に見られる。
花冠は白色もしくは桃色、外側は無毛、花冠筒は基部となる短くして細く円筒状の部分と大きな
囊 ()状の先端部が変化に富む; 花冠裂片には重なり合わない敷石状の芽層[注 6]が見られ、修道士の頭巾状、内側が特に上方に向かって有毛、外側は無毛、先端部に長い線形の付属物有り。葯は花冠内に納まり、矢じり状、縦方向に開き、中間部で接着、無柄、花冠の囊状部の基部に接着。
花柱は着生し、短く2裂の柱頭が葯の着生間に存在。
子房は胎座が下垂し、隔壁の頂点に接着、多数の上向きとなった覆瓦状に重なり合う胚珠により覆われる。
蒴果はほぼ100パーセント胞間裂開性[注 5]で聊か胞背裂開性[注 4]。
種子は双極性の
翼 ()付き、内胚乳を有する部分の高さでは細く、先端が3角形、基部は(燕尾様に)分岐; 内胚乳を有する部分の基部でへそが点状; 内胚乳は種子全長の1/3-1/4、油質; 線状の胚芽が楕円形の子葉を有し、へそ向きの幼根も有す。
Dupouy & Beille (1905) や後世の多数の研究者たちにより採用されてきたCorynanthe属とPausinystalia属との間の形態的な差異は次のようなものである[8]。
| Corynanthe属 | Pausinystalia属 | 備考 | |
|---|---|---|---|
| 花冠 | 漏斗状 | 花冠筒は基部が細く円筒状であり先端に |
- |
| 花柱 | 花冠外に突出 | 突出せず | - |
| 葯 | 花冠外に突出 | 突出せず | - |
| 柱頭 | 球状 | 2裂 | - |
| 蒴果 | 胞背裂開性[注 4] | 胞間裂開性[注 5] | Stoffelen, Robbrecht & Smets (1996:301) は両属それぞれが100パーセント胞背/胞間裂開するが、両属とも部分的に正反対の裂開の仕方も見られ得るという旨のことを述べている。 |
分類史
ヨヒンベノキ属について述べるには、いずれも19世紀後半以降に設けられたCorynanthe属とPausinystalia属の両方をめぐる歴史を紐解く必要がある。
まずCorynanthe属はフリードリヒ・ヴェルヴィッチュがアンゴラ現クアンザ・ノルテ州ゴルンゴ・アルト方面で自ら採取した標本に基づき、1869年に Corynanthe paniculata を新種記載した際に共に新設された属である[10]。その後カール・モーリッツ・シューマンが当時ドイツ領であったカメルーン産標本を基に1896年に C. macroceras[11]、1901年に C. brachythyrsus、ヨヒンベノキこと C. johimbe、C. pachyceras を立て続けに記載した[12]。
この流れを変えたのがジャン・バティスト・ルイ・ピエールであり、死後出版によりヨヒンベノキや C. macroceras をPausinystalia属へと組み替えた[13]。その後Corynanthe属はタイプ種である C. paniculata を除き、ここまでに言及されたほとんどの種がPausinystalia属に組み替えられる傾向が見られた[14]。Razafimandimbison & Bremer (2002) による分子系統学と形態分析の複合による系統樹では両属を単一の亜連 Corynantheinae 下にまとめつつ、Pausinystalia属を単系統群、Corynanthe属を C. paniculata を唯一の種として亜連 Corynantheinaeの残りの姉妹群とする解決法が取られたが、Corynanthe属は側系統群のままとされた[15]。なおこの際に1909年記載のPseudocinchona属[注 1]を C. mayumbensis (R.D.Good)N.Hallé と C. pachyceras を適用対象として試験的に復活させる措置も取られた[20][15]。Razafimandimbison & Bremer (2002) の結果を受けた Löfstrand et al. (2014:306 & 309–311) の分析ではCorynanthe属とPausinystalia属の側系統性を支持する結果が得られ、また従来Pseudocinchona属とされた左記の2種自体は単系統群となったものの、その単系統群が側系統的な Pausinystalia の内群に含まれることが判明し、単系統性を重視して Stoffelen, Robbrecht & Smets (1996) の定義によるPausinystalia属も Chevalier (1909) の定義による Pseudocinchona属もいずれもCorynanthe属へ統合するという結論が下されることとなった。
上位分類について
アカネ科の中ではCorynanthe属[21][注 11]もPausinystalia属も伝統的にキナノキ連(Cinchoneae)に置かれてきたが、これはいずれも乾果と有翼の種子を有しているためであった[22]。このキナノキ連には旧世界産・新世界産いずれの属も含まれていたが、Andersson & Persson (1991) はCorynanthe属やPausinystalia属を含め、旧世界産のものを形態の面からヒョウタンカズラ連 (Coptosapelteae)[注 12] の下に置いた。21世紀に入ってからリボソームDNAのITS領域[注 13]、葉緑体DNAにおいてタンパク質コーディングを行うrbcL領域、そしてコーディングとは無関係であるtrnT-F領域の解析に形態的特徴を加味した検討も行われた結果、Corynanthe属・Pausinystalia属共に明確にタニワタリノキ連(Naucleeae)に置かれるようになり、両属は Corynantheinae という亜連で括られるようになった[25][20]。
下位分類
検索表
#特徴でも述べた通り、ヨヒンベノキ属は2014年になるまでCorynanthe属とPausinystalia属とに分かれており、検索表に関しても属統合を反映したものが確認されない限り、已むを得ず以下のように属ごとに別個のものを掲示することとなる[26]。なお Hallé (1966:65 & 73) に C. talbotii を除く全種の、少なくとも花の図版が掲載されているため、そちらも併せて参照されたい。
- Corynanthe属
- C-1.
- C-2.
- C-2a. 花冠の付属物が球状; 花糸が0.8-1.2ミリメートル; 花柱が3.6-6.7ミリメートル; 蒴果が10パーセントを超えて胞間裂開[注 5]することは稀; 種子が幅0.7ミリメートル未満。…… C. pachyceras
- C-2b. 花冠の付属物は細長くかつ湾曲; 花糸は1.2-1.8ミリメートル; 花柱は1.6-3.5ミリメートル; 蒴果の胞間裂開は50パーセント未満; 種子は幅0.8ミリメートル超。…… C. mayumbensis
- 旧Pausinystalia属
- P-1.
- P-2.
- P-2a. 花序が長さ3センチメートル前後で幅2センチメートル未満、密生; 腋性花序基部の托葉が宿存性; 花冠裂片の付属物が3ミリメートル未満。…… C. macroceras[注 14]
- P-2b. 花序は長さ・幅ともに5センチメートル超、疎生; 腋生花序基部もしくは頂生花序基部の托葉は脱落性; 花冠裂片の付属物は3ミリメートル超。…… P-3. へ
- P-3.
- P-4.
- P-4a. 葉身が決して円形とはならない; ダニ室が有毛; 花冠裂片の付属物が12ミリメートル未満; 蒴果が乾燥状態で帯褐色、幅6ミリメートル未満; 種子が長さ5-7ミリメートル。…… Corynanthe lanei-poolei subsp. ituriense
- P-4b. 葉身は時に円形; ダニ室は無毛もしくは短く有毛; 花冠裂片の付属物は12ミリメートル超; 蒴果は乾燥状態で帯紫褐色、幅6ミリメートル超; 種子は長さ8-9ミリメートル。…… C. lane-poolei subsp. lane-poolei
- P-5.
- P-5a. ダニ室が存在する場合、有毛; 葉身が楕円形もしくは卵形、決して倒卵形とはならない; 花冠内部が非常に顕著に有毛; 萼と子房が顕著に有毛; 子房から萼への遷移が段階的; 蒴果が多くの場合に胞背裂開[注 4]し、胞間裂開[注 5]も見られる; 種子が幅2ミリメートル超。…… C. talbotii
- P-5b. ダニ室は存在する場合、無毛; 葉身は楕円形もしくは倒卵形、決して卵形とはならない; 花冠内部はまばらに有毛; 萼と子房は無毛か有毛; 子房から萼への遷移はくびれにより明瞭; 蒴果は純粋に胞間裂開性; 種子は幅2ミリメートル未満…… C. macroceras
種の一覧
シノニムは必ずしも網羅的なものではないという点に留意されたい。
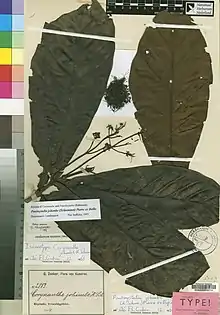
ヨヒンベノキ(Corynanthe johimbe)
Corynanthe lane-poolei
C. lane-poolei subsp. ituriense
Corynanthe macroceras
- Corynanthe macroceras K.Schum.
- シノニム: Pausinystalia macroceras (K.Schum.)Pierre; Corynanthe brachythyrsus K.Schum.(Wikispecies); Pausinystalia brachythyrsum (K.Schum.)W.Brandt[37]
- タイプ産地:
- 分布: ギニア・コンゴ地域の下ギニア領域(ナイジェリア、カメルーン、赤道ギニア、ガボン、アンゴラのカビンダ州)やコンゴ領域(コンゴ民主共和国)に広く分布[39]、アンゴラのベンゴ州でも標本が採取されている[40]
Corynanthe mayumbensis
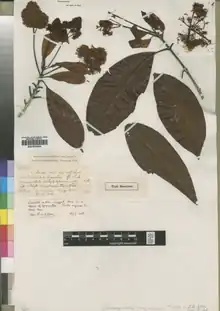
- Corynanthe mayumbensis (R.D.Good)N.Hallé(Wikispecies)
Corynanthe pachyceras
- Corynanthe pachyceras K.Schum.(Wikispecies)
Corynanthe paniculata
Corynanthe talbotii
- Corynanthe talbotii (Wernham)Å.Krüger & Löfstrand
利用
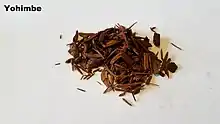
ヨヒンベノキの樹皮には催淫剤である塩酸ヨヒンビンの原料となる、ヨヒンビンやヨヒンビニン(yohimbinine)といったアルカロイドが含まれており[28]、このうちヨヒンビンは生殖器末梢の血管を拡張させ、腰髄の勃起中枢への作用により陰茎の勃起を促すものであり、薬理学的には交感神経α受容体遮断薬として扱われるが、大量投与すると延髄麻痺を引き起こし、痙攣、呼吸麻痺、心停止に至る危険性も存在する[48]。
なおヨヒンビンは1941年以前の時点でPausinystalia属とされていた種(ヨヒンベノキもこれに該当)や Corynanthe paniculata には含有されている一方、Corynanthe pachyceras(シノニム: Pseudocinchona africana)や C. mayumbensis(Pseudocinchona mayumbensis)には見られず、Raymond-Hamet (1941) はこれをもってPseudocinchona属を独立属として認めた[17]。Pseudocinchona属とされた2種はコリナンチンやコリナンテイン(corynantheine)という物質を含有するが、これらは対照的に左記の旧Pausinystalia属や C. paniculata には見られない[8]。コリナンチンやコリナンテインなどもアルカロイドに属し、化学構造自体はヨヒンビンを彷彿とさせるものである[49]。コリナンチンはヨーロッパの治療学にも取り入れられており、顕著な交感神経遮断作用や、コカインよりも下等な局所麻酔作用を有する[49]。
脚注
注釈
- オーギュスト・ジャン・バティスト・シュヴァリエ(IPNI略号: A.Chev.)により記載された属[16]。Corynanthe属やPausinystalia属が5数性であるのに対し4数性である点や、化学的にみてヨヒンビンとは異なる2種類のアルカロイドが存在する点は見られるものの、1996年以前の時点で当属の区別を認めていたのは化学分析による検証を行った Raymond-Hamet (1941) くらいのものであった[17]。なお資料によっては命名者が "A.Chev. ex Perrot" とされている場合も存在するが、これは先述のシュヴァリエ単独による発表(1909年1月付)とペロがシュヴァリエの未発表資料を援用して発表した文献(1909年1-6月付)[18] とのどちらが最初に公開されたものであるのかが曖昧なまま扱われてきたためである[19]。
- 英: crypt-type。ダニ室の類型の種類や範囲付けは研究者によってまちまちであるが 西田 (2004:139–140) によると、Wilkinson (1979) はダニ室について5種類以上の類型を行っており、その中に "pits or crypts" というものが存在するが、これは O'Dowd & Willson (1989) の類型でいう「ポーチ型」あるいは「
小囊 ()型」に対応するとされる。 - 英: thyrsic。花序がライラックのように密に枝分かれし、花の主軸は不明瞭だが側軸は明瞭であるさま[6]。
- 英: loculicidal。果実を形成する心皮それぞれの外縫線沿いに裂開する性質を有するということ[7]。
- 英: septicidal。果実が熟し、各室(胞)間の隔壁が離れて裂開する性質を有するということ。オトギリソウ科オトギリソウ属(Hypericum)などがこれに該当[7]。
- 英: (a)estivation。芽の内部に将来的に葉や花となる部位が並んでいる状態[7]。
- ただしミトラガイナ属とカギカズラ属との間の形態的差異に関してはミトラガイナ属#属の位置付けも参照。
- 英: equitant。2つ折り葉の中にさらに折り重ねがくるまれている状態[7]。
- 英: obvolute。2つ折り葉のうち一方の半片がもう一方の半片を互いに外側からくるんでいる状態[7]。
- 原典ではこの後にミトラガイナ属と Hallea J.-F.Leroy の区別が示されているが、Löfstrand et al. (2014:308 & 311–312) においてHallea属をミトラガイナ属に統合する扱いが確立されたため、省略とする。
- カール・モーリッツ・シューマンがこの分類を行った当時はタイプ種である Corynanthe paniculata しか知られていなかった。
- Corynanthe属とPausinystalia属を除いたこの時の内訳は次の通り。Angiosperm Phylogeny Website において確認できる現在の扱い[23]も併せて記す。
- ヒョウタンカズラ属(Coptosapelta)…… 現在もヒョウタンカズラ連。
- Crossopteryx属 → Crossopterygeae。
- キナモドキ属(Hymenodictyon)→ キナモドキ連(Hymenodictyeae)。
- ニオイザクラ属(Luculia)→ ニオイザクラ連(Luculieae)。
- ミトラガイナ属(Mitragyna)→ タニワタリノキ連(Naucleeae)。詳細はミトラガイナ属#属の位置付けを参照。
- Mussaendopsis属 → Dialypetalantheae。
- Paracorynanthe属 → キナモドキ連。
- カギカズラ属(Uncaria)→ タニワタリノキ連。ミトラガイナ属と同じく頭状花を特徴とし、Schumann (1891:55 & 57) の段階ではタニワタリノキ連とされるも、Ridsdale & Bakhuizen van den Brink (1975:541) により同様の特徴は他のアカネ科の連にも見られるとしてミトラガイナ属と共にキナノキ連に置き直されていた。分子系統学的手法を取った Razafimandimbison & Bremer (2002) により、再びタニワタリノキ連に置かれた。
- 内部転写スペーサー領域(英: internal transcribed spacer region)のこと。核となるリボソームDNA中にはスペーサーが2つ(ITS-1およびITS-2)含まれる領域が存在するが、いずれのスペーサーもPCR(ポリメラーゼ連鎖反応)により増幅させることや、普遍的なプライマーの使用により塩基配列の決定(シークエンシング)を行うことが、押し葉標本のDNAが対象の場合であっても容易に可能であり、被子植物の科の系統分類を行う上で有益な情報源となるとされる[24]。
- 原典においては "P. brachythyrsum" と表示されている。
- ドイツのベルリン=ダーレム植物園に所蔵されていたホロタイプ(正基準標本)Dinklage 712 が失われたと判断したニコラ・アレがネオタイプ(新基準標本)として Zenker 2883(フランス国立自然史博物館所蔵; cf. P03797974(GBIF))を指定し直したもの。ただ、実はハンブルク大学には失われた筈のホロタイプと同じ "Dinklage 712" のラベルを有する標本(HBG521750(GBIF, JSTOR); 少なくともタイプ標本であることは明記されている)が依然存在すること、そして国際藻類・菌類・植物命名規約(ICN)第9条第19項においては「レクトタイプやネオタイプを第9条第11-13項に則って最初に指定した著者の見解には必ず従わねばならないが、かかる選定は仮に(a)ホロタイプもしくは、ネオタイプの場合には何らかの原資料の存在が発覚した際 [その他無関係な事例は省略] には差し替え対象となる」と定められている[30]ことにも留意されたい。
出典
- 米倉 (2019).
- POWO (2023). Plants of the World Online. Facilitated by the Royal Botanic Gardens, Kew. Published on the Internet; https://powo.science.kew.org/taxon/urn:lsid:ipni.org:names:34406-1 2023年10月15日閲覧。
- Löfstrand et al. (2014:310).
- Stoffelen, Robbrecht & Smets (1996:301–302 & 307).
- Schumann (1891:47).
- 小学館ランダムハウス英和大辞典第2版編集委員会, ed (1994). “thyrse”. 小学館ランダムハウス英和大辞典 (2 ed.). ISBN 4-09-510101-6
- 小学館ランダムハウス英和大辞典第2版編集委員会, ed (1994). 小学館ランダムハウス英和大辞典 (2 ed.). ISBN 4-09-510101-6
- Stoffelen, Robbrecht & Smets (1996:300).
- Stoffelen, Robbrecht & Smets (1996:300–301).
- Welwitsch (1869).
- Schumann (1896).
- Gilg & Schumann (1901).
- Beille (1906:130).
- Löfstrand et al. (2014:311).
- Löfstrand et al. (2014:309).
- Chevalier (1909).
- Stoffelen, Robbrecht & Smets (1996:299–300).
- Guignard (1909).
- Stoffelen, Robbrecht & Smets (1996:306).
- Razafimandimbison & Bremer (2002).
- Schumann (1891:41–42 & 50).
- Stoffelen, Robbrecht & Smets (1996:288).
- Stevens, P. F. (2001 onwards). Angiosperm Phylogeny Website. Version 14, July 2017 [これ以降も多かれ少なかれ継続的に更新]." https://www.mobot.org/MOBOT/research/APweb/genera/rubiaceaegen.html 2023年10月15日閲覧。
- Baldwin et al. (1995:247).
- Razafimandimbison & Bremer (2001:535).
- Stoffelen, Robbrecht & Smets (1996:302 & 307–308).
- コーナー & 渡辺 (1969).
- 熱帯植物研究会 (1996).
- Hallé (1966:68–69).
- “Article 9” (英語). International Code of Nomenclature for algae, fungi and plants (Shenzhen Code). International Association for Plant Taxonomy (IAPT) (2018年). 2023年10月18日閲覧。
- Stoffelen, Robbrecht & Smets (1996:309).
- Stoffelen, Robbrecht & Smets (1996:309–310).
- Figueiredo (2007:471).
- Stoffelen, Robbrecht & Smets (1996:310).
- Löfstrand et al. (2014:311).
- Stoffelen, Robbrecht & Smets (1996:311).
- POWO (2023). Plants of the World Online. Facilitated by the Royal Botanic Gardens, Kew. Published on the Internet; https://powo.science.kew.org/taxon/urn:lsid:ipni.org:names:747601-1 2023年10月18日閲覧。 Ntore & Lachenaud (2022) を引用。
- Stoffelen, Robbrecht & Smets (1996:308).
- Stoffelen, Robbrecht & Smets (1996:313 & 320).
- Figueiredo (2008:576).
- Stoffelen, Robbrecht & Smets (1996:302).
- Figueiredo (2007:462).
- Stoffelen, Robbrecht & Smets (1996:303).
- Stoffelen, Robbrecht & Smets (1996:305).
- Figueiredo (2008:551).
- Stoffelen, Robbrecht & Smets (1996:320).
- Stoffelen, Robbrecht & Smets (1996:321).
- 重信 (2000).
- Kerharo & Bouquet (1950).
参考文献
- ラテン語
- Welwitsch, Fridericus (1871[1869]). “Sertum Angolense, sive Stirpium quarundam novarum vel minus cognitarum in itinere per Angolam et Benguelam observatarum Descriptio Iconibus illustrata”. Transactions of the Linnean Society of London 27: 37.
- ドイツ語
- Schumann, K. (1891). “Rubiaceae”. In A. Engler & K. Prantl. Die natürlichen Pflanzenfamilien nebst ihren Gattungen und wichtigeren Arten insbesondere den Nutzpflanzen, unter Mitwirkung zahlreicher hervorragender Fachgelehrten begründet. 4, 4 (1 ed.). pp. 1–156
- Schumann, K. (1897[1896]). “Rubiaceae africanae, Beiträge zur Flora von Afrika. XIII”. Botanische Jahrbücher für Systematik, Pflanzengeschichte und Pflanzengeographie 23 (3): 424–425.
- Gilg, E.; Schumann, K. (1901). “Über die Stammpflanze der Johimberinde”. Notizblatt des Königl. botanischen Gartens und Museums zu Berlin 3 (25): 94–96.
- フランス語
- Dupouy; Beille, L. (1905). “Une écorce à Yohimbine du Congo français”. Bulletin des sciences pharmacologiques. Paris 8: 72–75 & 201–204.
- Beille, L. (1906). “Contribution a l’étude des genres Corynanthe Velw. et Pausinystalia (n. g.) Pierre”. Actes de la Société Linnéenne de Bordeaux 61: 129–132.
- Chevalier, A. (1909). “Pseudocinchona africana A. Chev.”. Les végétaux utiles de l’Afrique tropicale Française. 5. pp. 229–230
- Guignard (1909). “Sur une écorce médicinale nouvelle de la Côte d’Ivoire et son alcaloïde. Note de Ém. Perrot”. Comptes rendus hebdomadaires des séances de l’Académie des sciences 148: 1465–1467.(ミラー: Gallica)
- Raymond-Hamet (1941). “La présence de corynanthine et l’absence de yohimbine dans les écorces du Pseudocinchona africana A. Chevalier et du Pseudocinchona mayumbensis (Good) Raymond-Hamet paraissent justifier la séparation des genres Pseudocinchona et Corynanthe”. Comptes Rendus Hebdomadaires des séances de l’Académie des Sciences Paris 212: 305–306.
- Kerharo, J.; Bouquet, A. (1950). Plantes médicinales et toxiques de la Côte-d’Ivoire - Haute-Volta. Paris: Vigot Frères. p. 200
- Hallé, N. (1966). Famille des Rubiacées (1ère partie). Flore du Gabon. 12 278 pp. - ガボンのアカネ科植物全般を対象とした著作であり、ガボンが多様性の中心地であるヨヒンベノキ属に関しては pp. 60–74 に記述が見られ、当時はCorynanthe属とPausinystalia属の2属が認められていた。
- 日本語および英語
- コーナー, E. J . H.; 渡辺, 清彦 (1969). 図説熱帯植物集成. 廣川書店. p. 707
- 英語
- Ridsdale, C.E.; Bakhuizen van den Brink Jr, R.C. (1975). “A synopsis of the African and Madagascan Rubiaceae – Naucleeae”. Blumea 22 (3): 541–553.
- O'Dowd, Dennis J.; Willson, Mary F. (1989). “Leaf domatia and mites on Australasian plants: ecological and evolutionary implications”. Biological Journal of the Linnean Society 37 (3): 191–236. doi:10.1111/j.1095-8312.1989.tb01901.x.
- Andersson, Lennart; Persson, Claes (1991). “Circumscription of the tribe Cinchoneae (Rubiaceae) — a cladistic approach”. Plant Systematics and Evolution 178 (1–2): 65–94. doi:10.1007/BF00937983. JSTOR 23674675. NCID AA00775459.
- Baldwin, Bruce G.; Sanderson, Michael J.; Porter, J. Mark; Wojciechowski, Martin F.; Campbell, Christopher S.; Donoghue, Michael J. (1995). “The ITS region of nuclear ribosomal DNA: a valuable source of evidence on angiosperm phylogeny”. Annals of the Missouri Botanical Garden 82 (2): 247–277.
- Stoffelen, P.; Robbrecht, E.; Smets, E. (1996). “A revision of Corynanthe and Pausinystalia (African Rubiaceae-Coptosapelteae)”. Botanical Journal of the Linnean Society 120 (4): 287–326. doi:10.1111/j.1095-8339.1996.tb00485.x.
- Razafimandimbison, Sylvain G.; Bremer, Birgitta (2001). “Tribal delimitation of Naucleeae (Cinchonoideae, Rubiaceae): inference from molecular and morphological data”. Systematics and Geography of Plants 71 (2): 515–538. doi:10.2307/3668697.
- Razafimandimbison, Sylvain G.; Bremer, Birgitta (2002). “Phylogeny and classification of Naucleeae s.l. (Rubiaceae) inferred from molecular (ITS, rBCL, and tRNT-F) and morphological data”. American Journal of Botany 89 (7): 1027–1041. doi:10.3732/ajb.89.7.1027.
- Figueiredo, Estrela (2007). “The Rubiaceae of Cabinda (Angola)”. Botanical Journal of the Linnean Society 154 (4): 455–495. doi:10.1111/j.1095-8339.2007.00675.x.
- Figueiredo, Estrela (2008). “The Rubiaceae of Angola”. Botanical Journal of the Linnean Society 156 (4): 537–638. doi:10.1111/j.1095-8339.2007.00750.x.
- Löfstrand, Stefan. D.; Krüger, Åsa; Razafimandimbison, Sylvain G.; Bremer, Birgitta (2014). “Phylogeny and Generic Delimitations in the Sister Tribes Hymenodictyeae and Naucleeae (Rubiaceae)”. Systematic Botany 39 (1): 304–315. doi:10.1600/036364414X678116.
- 日本語
- 熱帯植物研究会, ed (1996). “ヨヒンベノキ Pausinystalia yohimba Pierre(Corynanthe yohimbe K. Schum.)”. 熱帯植物要覧 (第4版 ed.). 養賢堂. p. 427. ISBN 4-924395-03-X
- 重信, 弘毅 (2000). “強精剤”. 世界大百科事典 (2 ed.). 平凡社
- 西田, 佐知子 (2004). “葉上の小器官「ダニ室」”. 分類 4 (2): 137–151. doi:10.18942/bunrui.kj00004649614. ISSN 1346-6852.
- 米倉, 浩司 (2019). 新維管束植物分類表. 北隆館. p. 200. ISBN 978-4-8326-1008-8
関連文献
- ドイツ語
- Brandt, W. (1922). “Monographie der Gattungen Corynanthe Welwitsch und Pausinystalia Pierre, Rubiaceae (Ueber die Stammpflanze der Yohimberinde und ihre Verwandten)”. Archiv der Pharmazie 260: 49–94. doi:10.1002/ardp.19222600106. - Corynanthe属と旧Pausinystalia属を対象とした分類見直しが本格的に行われた最初の論文(Stoffelen, Robbrecht & Smets (1996:300))。
- 英語
- Wilkinson, H. P. (1979). “The Plant Surface (Mainly Leaf)”. In Metcalfe, C. R. & Chalk, L.. Anatomy of the Dicotyledons. 1 (2nd ed.). Oxford: Clarendon Press. pp. 97–165. NCID BA00588562, BA03988975
- フランス語
- Ntore, S.; Lachenaud, O. (2022). Flore d’Afrique Centrale, nouvelle série, Spermatophyta - Rubiaceae - Tribu XIII. Hymenodictyeae, Tribu XIV. Naucleeae et Tribu XV. Cinchoneae. Jardin Botanique National de Belgique, Meise 101 pp.