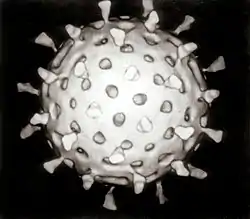
二本鎖RNAウイルス
二本鎖RNAウイルス(にほんさRNAウイルス、英: double-stranded RNA virus、略称: dsRNAウイルス)は、二本鎖のリボ核酸(RNA)のゲノムを持つウイルスからなる多系統群である。二本鎖RNAゲノムは、ウイルスのRNA依存性RNAポリメラーゼ(RdRp)を用いて転写と複製が行われる。プラス鎖RNAはmRNAとしても利用され、宿主のリボソームを用いてウイルスタンパク質が翻訳される[1]。
| 二本鎖RNAウイルス | |||
|---|---|---|---|
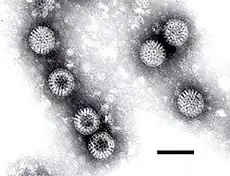 ロタウイルスの電子顕微鏡画像。 バー: 100 nm | |||
| 分類 | |||
| |||
| 下位分類 | |||
|
二本鎖RNAウイルスは、デュプロルナウイルス門とピスウイルス門 (デュプロピウイルス綱)という2つの門に分類され、どちらもリボウイルス域オルソルナウイルス界に属する。この2つのグループは共通のdsRNAウイルス祖先に由来するのではなく、一本鎖プラス鎖RNAウイルス(+ssRNAウイルス)から個別に進化したものである。ボルティモア分類体系では、dsRNAは第III群に属する[2]。
このグループのウイルスの宿主の範囲(動物、植物、菌類、細菌)、ゲノムの分節数(1から12)、ビリオン構成(カプシドの対称性、層、突起(タレット、turret)の存在)は多岐にわたる。dsRNAウイルスには、幼児の胃腸炎の原因として世界的に知られているロタウイルス、ウシやヒツジに感染する経済的影響の大きい病原体であるブルータングウイルスなどが含まれる。レオウイルス科はこのグループで最大の科であり、宿主の範囲の点で最も多様性の高い科である。
分類
dsRNAウイルスには、デュプロルナウイルス門とデュプロピウイルス綱の2つの分類群が存在し、デュプロピウイルス綱はピスウイルス門に属する。どちらもリボウイルス域オルソルナウイルス界に含められている。RdRpの系統遺伝学的解析に基づくと、この2つの分類群は共通のdsRNA型祖先を持つわけではなく、実際にはそれぞれ異なる+ssRNAウイルスの子孫である。mRNAの合成様式に基づいてウイルスを分類するボルティモア分類体系では、dsRNAは第III群に分類される[2][4]。
特定の種に関する注記
レオウイルス科
レオウイルス科は現在9つの属に分類されている。これらのウイルスのゲノムは10から12個のdsRNA断片から構成され、そのそれぞれに1つのタンパク質がコードされているのが一般的である。成熟型ビリオンはエンベロープを持たない。カプシドは複数のタンパク質から形成され、二十面体形の対称性を持ち、一般的に同心層を形成している。科に関わらず、dsRNAウイルスの特徴はdsRNA断片を転写する能力であり、適切な条件下でカプシド内で行われる。そのため、内因性転写に必要な酵素はビリオン構造の一部となっている。
オルソレオウイルス
オルソレオウイルス属(単にレオウイルスとも)はレオウイルス科の典型的メンバーである。また、タレットを持つ代表的なウイルスであり、属の約半数を占める。科の他のメンバーと同様、レオウイルスはエンベロープを持たず、分節化したdsRNAゲノムを内包した同心層からなるカプシドによって特徴づけられる。特に、レオウイルスは8つの構造タンパク質と10個のdsRNA断片から構成される。哺乳類レオウイルス(MRV)のタンパク質はほぼすべてについて高分解能構造が知られており、最もよく研究されているものとなっている。MRVの2つの系統、type 1 Lang(T1L)とtype 3 Dearing(T3D)に関しては、クライオ電子顕微鏡(cryo-EM)解析とX線結晶構造解析により豊富な構造情報が得られている[5]。
サイポウイルス
細胞質多角体ウイルス(CPV)はレオウイルス科サイポウイルス属を構成する。CPVはゲノム断片の電気泳動プロファイルに基づいて14種に分類されている。サイポウイルスは1層のみからなるカプシドを持ち、その構造はオルソレオウイルスの内殻に類似している。CPVはカプシドの安定性が非常に高く、また内因性のRNA転写とプロセシングを完全に行うことができる。CPVのタンパク質の全体的なフォールドは他のレオウイルスのものと類似している。しかしながら、CPVのタンパク質には挿入ドメインや固有の構造が存在し、これらが広範囲にわたる分子間相互作用に寄与している。CPVのタレットタンパク質には、高度に保存されたヘリックスペア/βシート/ヘリックスペアサンドイッチフォールドを持つ2つのメチラーゼドメインが存在するが、オルソレオウイルスλ2タンパク質に存在するβバレルフラップ構造は存在しない。mRNAの放出経路に沿ったタレットタンパク質の機能ドメインのスタッキング、狭窄部やAスパイクの存在は、RNAの転写、プロセシング、放出というきわめて協調的な段階の調節にポアとチャネルを利用する機構が用いられていることを示唆している[6]。
ロタウイルス
ロタウイルスは、世界中で新生児や幼児の急性胃腸炎の最も一般的な原因となっている。このウイルスはdsRNAゲノムを持ち、レオウイルス科に属する。ロタウイルスのゲノムは11個のdsRNA断片から構成される。各ゲノム断片には1つのタンパク質がコードされているが、セグメント11のみには2つのタンパク質がコードされている。この12種類のタンパク質のうち、6つが構造タンパク質、残りの6つが非構造タンパク質である[7]。
ブルータングウイルス
レオウイルス科のオルビウイルス属に属するウイルスは節足動物媒介ウイルスであり、反芻動物で高い罹患率と致死率を示す。家畜(ヒツジ、ヤギ、ウシ)の疾患の原因となるブルータングウイルス(BTV)はここ30年、分子的研究の最前線にあり、分子・構造レベルで最も理解が進んだオルビウイルスとなっている。BTVはレオウイルス科の他のメンバーと同様、複雑な非エンベロープ型ウイルスであり、7種類の構造タンパク質と、さまざまなサイズの10個のdsRNA断片からなるRNAゲノムを持つ[8][9]。
ファイトレオウイルス
ファイトレオウイルス(フィトレオウイルス)はタレットを持たないレオウイルスで、特にアジアで農業に大きな影響を及ぼしている病原体である。この属のウイルスの1つイネ萎縮ウイルス(RDV)は、電子顕微鏡とX戦結晶構造解析によって広く研究が行われている。これらの解析からは、カプシドタンパク質の原子モデルとカプシドの組み立てのモデルが得られている。RDVの構造タンパク質は他のタンパク質と配列レベルでの類似性は見られないものの、そのフォールドとカプシドの全体構造はレオウイルス科の他のウイルスと類似している[10]。
出芽酵母L-Aウイルス
出芽酵母のL-Aウイルスは、メジャーコートタンパク質Gag(76 kDa)とリボソーム-1フレームシフトによって形成されるGag-Pol融合タンパク質(180 kDa)をコードする、1本の4.6 kbのゲノムを持つ。L-Aは、M dsRNAと呼ばれるいくつかのサテライトdsRNAのウイルス粒子の複製とカプシドへの詰め込みを補助する。M dsRNAには分泌型タンパク質毒素(キラートキシン)とその毒素に対する免疫がコードされている。L-AとMは酵母の接合過程で生じる細胞質の混合によって細胞から細胞へ伝播する。自然に細胞から放出されたり、その他の機構で細胞へ進入したりすることはないが、酵母の高頻度で接合を行う性質のため、これらのウイルスは自然分離株に広く分布している。これらのdsRNAは哺乳類のdsRNAウイルスと構造的・機能的類似性を示すため、ウイルスとみなすことが有用である[11]。
伝染性ファブリキウス嚢病ウイルス
伝染性ファブリキウス嚢病ウイルス(IBDV)は、ビルナウイルス科の中で最もよく特性解析がなされたウイルスである。これらのウイルスは二分節されたdsRNAゲノムを持ち、T=13l対称性を持つ1層の二十面体形カプシドに内包されている。IBDVはその他の多くの二十面体形dsRNAウイルスと共通した機能的戦略や構造的特徴を有するが、レオウイルス科、シストウイルス科、トティウイルス科に共通したT=1(もしくは擬T=2)コアを持たない。IBDVのカプシドタンパク質は、ノダウイルス科、テトラウイルス科など一部の+ssRNAウイルスのカプシドタンパク質、レオウイルス科のT=13型外殻タンパク質との相同性を示す。IBDVカプシドのT=13型の殻はVP2の三量体によって形成される。このタンパク質は前駆体タンパク質pVP2からC末端ドメインが除去されることで生成される。pVP2のトリミングは未成熟型粒子において、成熟過程の一部として行われる。その他の主要な構造タンパク質であるVP3はT=13型の殻の下部に位置する多機能型構成要素であり、pVP2の構造的多型に影響を与える。ウイルスにコードされるRdRpであるVP1はVP3との結合を介してカプシドに組み込まれる。また、VP3はウイルスのdsRNAゲノムとも広範囲で相互作用している[12]。
抗ウイルス作用
細胞は正常な核酸代謝過程ではdsRNAを産生することはないため、接触したdsRNAを破壊する酵素の進化が自然選択されてきた。この種の酵素で最も有名なものはDicerである。dsRNAウイルスのこうした脆弱性を利用した、広域抗ウイルス薬の合成が期待されている[14]。
出典
- “Double-stranded RNA virus replication”. ViralZone. Swiss Institute of Bioinformatics. 2020年8月6日閲覧。
- “Create a megataxonomic framework, filling all principal taxonomic ranks, for realm Riboviria” (docx) (英語). International Committee on Taxonomy of Viruses (ICTV) (2019年10月18日). 2020年8月15日閲覧。
- “Origins and Evolution of the Global RNA Virome”. mBio 9 (6): e02329-18. (27 November 2018). doi:10.1128/mBio.02329-18. PMC 6282212. PMID 30482837.
- Dryden, Kelly A.; Coombs, Kevin M.; Yeager, Mark (2008). “Ch. 1: The Structure of Orthoreoviruses”. Patton 2008. pp. 3–. ISBN 9781904455219
- Z. Hong Zhou (2008). “Ch. 2: Cypovirus”. Patton 2008. pp. 27–. ISBN 9781904455219
- Xiaofang Jiang; Crawford, Sue E.; Estes, Mary K.; Prasad, B. V. Venkataram (2008). “Ch. 3: Rotavirus Structure”. Patton 2008. pp. 45–. ISBN 9781904455219
- Roy P (2008). “Structure and Function of Bluetongue Virus and its Proteins”. Segmented Double-stranded RNA Viruses: Structure and Molecular Biology. Caister Academic Press. ISBN 978-1-904455-21-9
- Mettenleiter, T.C.; Sobrino, F., eds (2008). Animal Viruses: Molecular Biology. Caister Academic. ISBN 978-1-904455-22-6
- Baker, Matthew L.; Z. Hong Zhou; Wah Chiu (2008). “Ch. 5: Structures of Phytoreoviruses”. Patton 2008. pp. 89–. ISBN 9781904455219
- Wickner (2008). “The Yeast dsRNA Virus L-A Resembles Mammalian dsRNA Virus Cores”. Segmented Double-stranded RNA Viruses: Structure and Molecular Biology. Caister Academic Press. ISBN 978-1-904455-21-9
- Castón, José R.; Rodríguez, José F.; Carrascosa, José L. (2008). “Infectious Bursal Disease Virus (IBDV): A Segmented Double-Stranded RNA Virus With a T=13 Capsid That Lacks a T=1 Core”. Patton 2008. pp. 133–. ISBN 9781904455219
- Koivunen, Minni R. L.; Sarin, L. Peter; Bamford, Dennis H. (2008). “Ch. 14: Structure-Function Insights Into the RNA-Dependent RNA Polymerase of the dsRNA Bacteriophage Φ6”. Patton 2008. pp. 239–. ISBN 9781904455219
- Rider, Todd H.; Zook, Christina E.; Boettcher, Tara L.; Wick, Scott T.; Pancoast, Jennifer S.; Zusman, Benjamin D. (2011). Sambhara, Suryaprakash. ed. “Broad-Spectrum Antiviral Therapeutics”. PLoS ONE 6 (7): e22572. Bibcode: 2011PLoSO...622572R. doi:10.1371/journal.pone.0022572. PMC 3144912. PMID 21818340. "...a new broad-spectrum antiviral approach, dubbed Double-stranded RNA (dsRNA) Activated Caspase Oligomerizer (DRACO)..."
文献
- Patton, John T., ed (2008). Segmented Double-stranded RNA Viruses: Structure and Molecular Biology. Caister Academic. ISBN 978-1-904455-21-9