土壌呼吸
土壌呼吸(どじょうこきゅう)とは、土壌中の微生物と植物の地下部(根)の細胞呼吸による二酸化炭素の生成である。
土壌呼吸は、土壌に固定されていた炭素を二酸化炭素の形で大気に開放する点で重要である。この、土壌から大気への炭素の移動は土壌呼吸を伴って循環している。まず、植物は植物体地上部で大気中の二酸化炭素で光合成を行い、光合成産物を地下部(根)に送り込む。根圏で植物の根は呼吸をする。根の分泌物や根毛、脱落細胞など、根から有機化合物は放出され、地中の従属栄養生物はそれらで細胞呼吸を行う。そして、植物と地中の従属生物から二酸化炭素は地上の大気へと放出され、植物は大気から二酸化炭素を得る。
生態系の土壌呼吸の量はいくつかの要因により制御されている。土壌中の温度、含水率、栄養素の含有量、および酸素レベルは呼吸速度を全く異なるものへ変化させる。土壌呼吸の速度を測定する方法がある。それとは別に、供給源となった物質を分離し、対象の植物の光合成経路がどちらのタイプなのか(C3型光合成かC4型光合成なのか)を判別できる。
土壌呼吸は人間の活動により多大な影響を受ける。近年の気候変動(二酸化炭素濃度の上昇、地球温暖化、降水パターンの変遷)が土壌呼吸に影響を与えると懸念されている。農地における窒素肥料の施肥量の増大も影響因子の一つである可能性がある。
土壌呼吸は、地球温暖化と正のフィードバックの関係にあると云われる。地球温暖化は大気中の二酸化炭素濃度の増加で進行するため、土壌呼吸の速度が増えると地球温暖化が進行し、地球温暖化が進行すると土壌呼吸の速度もさらに増加する。
ある生態系での土壌呼吸の量は、その系での炭素循環および養分循環を理解するために重要である。生物による炭素の代謝は炭素だけでなく他の栄養素も消費するし、植物による二酸化炭素の排出は他の栄養素の排出も伴うためである。
呼吸様式の種類

土中の2-20 mm、あるいは0.08-0.8 mmの深度にある化合物は植物の根、土壌生物(土壌微生物および土壌動物)の食餌、土壌呼吸の出発物質となり得る。
植物根と土壌生物のクエン酸回路
クエン酸回路(TCA回路)は、土中に限らず好気性生物全般にとって細胞呼吸の枢要にある代謝回路である。クエン酸回路では六炭糖が酸化され、二酸化炭素と水が生じる[1]。この生化学反応は土壌呼吸の大部分において最も基礎に位置付けられている。
植物根の呼吸
植物の根は地上部から光合成産物を送られ、それを代謝して呼吸を行っている。通常、根の呼吸量が土壌呼吸のおよそ半分を占める。しかし、この割合は植物の種類や環境条件により10-90%の間で変動する。呼吸量は根のバイオマス量と呼吸速度によって決まる[2]。
土壌微生物の呼吸
根圏では、光合成によって得られた炭素の20%以下が根分泌物として放出されている[3]。土壌細菌は根分泌物を分解して好気呼吸(クエン酸回路)や嫌気呼吸(アルコール発酵など)を行っている。根圏で嫌気呼吸が活発に行われている理由は、根が酸素分子を激しく消費しており、根から十分に離れた土壌と比べて分子酸素濃度が薄いためである[4]。
根感染性真菌や菌根菌は土壌の栄養素を植物に与え、植物の生長を促す。その代わり、植物はこれら真菌へと糖分を与える。結果としてこれら真菌は土壌呼吸の総量に寄与する[5]。加えて、真菌は細菌や土壌動物とともに、動植物遺体や土壌有機物の分解に大きな役割を果たす。
発酵
発酵において、その出発物質も最終産物もさまざまであり、二酸化炭素のほかは最終産物は様々である。一般に発酵過程で酸素分子は使用されない。よく知られているのは、エタノールか乳酸のいずれかを産物とするアルコール発酵である[6]。アルコール発酵は嫌気呼吸である。泥炭沼や湿地といった水没環境において、土壌呼吸の多くを占めると考えられている。ただし、最も大きな割合を占めるのは植物の根による細胞呼吸である。
土壌動物の呼吸
土壌動物は、粗大有機物(動植物遺骸や糞尿など)や土壌微生物を食する。特に土壌の微小動物相(線形動物やダニ類など)は細菌や真菌を捕食する。土壌の中型動物相は主に粗大有機物を摂取する。彼らの糞便は、摂取される前と比べて水分を多く含み、表面積を大きくする。このため微生物はより容易に代謝できるようになり、土壌呼吸が増す。土壌の大型動物相の一部(ミミズやシロアリなど)は粗大有機物を細片化させて表面積を拡大するため、微生物による分解は促進される。その他の大型動物相の役割は土中の移動により土壌粒子の凝縮を弱めて土壌密度を減らすことである。これにより、土壌は曝気され、かつ水の浸透は増加する[7]。
土壌呼吸の制御因子
土壌での二酸化炭素の発生速度は生物的・非生物的要因により増減する。
温度
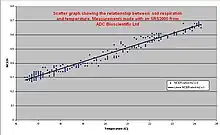
温度条件は、呼吸を含めたあらゆる生化学現象に影響を与える。ある一定値までは温度が増加すると指数関数的に土壌呼吸が増加し、その一定値付近に達すると土壌呼吸は最大となる。しかし、一定値を超えると酵素活性は失われ、土壌呼吸はゼロとなる。
根の呼吸は、呼吸速度がクエン酸回路のみに支配されている場合、ある狭い温度範囲で温度の増加とともに指数関数的に増加する。より高い温度になると、糖などの代謝産物の輸送が制限因子となる。摂氏35度以上の温度では、根の呼吸は完全に停止し始める[8]。
微生物は、活動温度によって3つに分けられる;低温菌、中温菌、高温菌。低温菌は20 ℃以下、中温菌は20-40 ℃、高温菌は40 ℃以上で最もよく生育する。自然環境の土壌ではこれらの微生物が混在しているため、広い温度範囲で土壌呼吸は活発に発生する[9]。上限値まで温度が増加すればするほど土壌微生物の呼吸は増加する。このパターンは土壌水分のそれと類似する。
土壌水分
土壌の含水率(土壌水分)はある下限と上限の間で土壌呼吸と正の相関を示す。土壌呼吸は乾燥状態では低く、土壌水分が大きくなるにつれ最大値まで高くなる。最大値になると、水分は土中の酸素分子を追い出し、土壌呼吸は減少する。嫌気条件は好気条件に対して土壌呼吸を不活性にさせるためである。3年間の野外研究によると、最低および最高の条件でのみ土壌水分は呼吸を制限した[10]。
多くの微生物は低水分での増殖および生存戦略を有する。高水分では多くの細菌は過剰に水分を取り込み、細胞膜は溶解または破壊される。この死滅は土壌呼吸の速度を一時的に弱めることがあるが、生存した微生物にとって資源が急増する。この急増は土壌呼吸の速度を短期的に大きくする。
植物の根は種によって、個体の経歴によって土壌水分に対する呼吸の応答を変化させる。一般的に根の呼吸は、特に乾燥した気候では水分の増加に伴って増加する。湿地植物を除いて、水分には上限があり、それに達すると呼吸は低下する[11]。
土壌窒素分
土壌の窒素含有率(土壌窒素分)は土壌呼吸に直接作用する。植物はいくつかの無機形態の窒素を栄養素として土壌から取り込む。最も取り込まれ易い無機形態は硝酸イオンNO3−である。硝酸イオン1分子の取り込みに植物は二酸化炭素0.4分子(硝酸イオン5分子で二酸化炭素2分子)を要する。植物体内で硝酸イオンはアンモニウムイオンに変換される必要があり、この過程は1分子当たり二酸化炭素2分子を消費する。ここまでで、菌根菌を介さなければ植物は硝酸イオン1分子からアンモニウムイオンを得るのに2.4分子の二酸化炭素を要する。菌根菌と共生していた場合、消費量は2.36分子である[12]。
粗大有機物の窒素分も土壌呼吸に影響する。高窒素分の粗大有機物は、低窒素分のそれと比べて早く分解され、土壌呼吸を活発にさせる傾向にある。低窒素分のセルロースが粗大有機物中に高濃度で存在することはその粗大有機物の分解を制限する要因である。粗大有機物に窒素化合物を加えることで分解を促進することができる[13]。
測定手法
土壌呼吸の測定方法と発生源の特定方法を紹介する。最も一般的なのは、1) 一つの地域で経時的に長期間、土壌の経時変化を自動測定機器で評価、2) 異なる場所と異なる時間で土壌呼吸系を調査、3) 安定した同位体を異なる土壌試料に使用し、同位体の量の違いを比較、の3つの方法である。
自動測定機器で評価

この調査方法は一つの地域のみを対象とする。少しの距離でも土性の違いで測定誤差が生じるため、通常は調査地点を複数とする。同じ地域でこの測定誤差がどれほど生じ得るものなのか、調査前に試験することもある。調査地点に自動計測機器を設置する。この機器は、長期間にわたって野外で環境条件に曝されるよう設計されているものでなければならない。自動計測機器の例を以下に示す。
- Closed mode systems
- この機器を用いた手法を閉鎖型チャンバー法という。機器はチャンバーであり、測定対象の地面に覆い被せる。チャンバーに空気の侵入口がなく、測定地点を外気から隔絶する。測定の間隔と終了時刻が予め設定され、チャンバーが密閉されるとこの機器は大気の二酸化炭素濃度を測定し始める。そして、所定の間隔で測定を続ける。この機器の利点としては、古くから行われており比較的多くの研究者に採用されており、また、測定結果に風の影響がない。この機器を使用する場合は2つの理由から測定時間の上限を設ける必要がある。第一に、機器内部で土壌から二酸化炭素が生じ続けて内部の二酸化炭素分圧が大きくなり過ぎると以降の二酸化炭素の発生が抑制される。第二に、機器内部の環境条件は自然本来のそれと異なるため、測定期間が長くなるほど実際の条件と結果がずれることが考えられる。二酸化炭素の分圧について事前に土壌を試験し、最適な実験期間をあらかじめ設定することが推奨されている。この機器は一般的に土壌温度、土壌水分および光合成有効放射(PAR: photosynthetically active radiation)も測定し記録できる。二酸化炭素濃度の増加の傾きと土壌呼吸速度を決定するために線形回帰分析(Pedersenアルゴニズム)や指数回帰が利用される[14]。この傾きは土壌呼吸速度を F は土壌呼吸速度、bは傾き、Vはチャンバーの体積、そしてAは、チャンバーで覆われた地面の面積である[15]。測定期間が長すぎると土壌の最上層に二酸化炭素が蓄積されるため、二酸化炭素濃度の過小評価を引き起こす[16]。
- Open mode systems
- 上記の閉鎖型チャンバーに対して開放型チャンバーと呼ばれる。測定時刻になると測定を二回行う。一回目の測定の後、外気を吸引し、内部に送り込む。同時に内部の空気を同量だけ排出する。これにより、土壌呼吸由来の二酸化炭素はチャンバー内から除去される。外気中の二酸化炭素は測定地点の土壌呼吸由来の二酸化炭素と混合し、ある時間後に濃度は平衡に達する。平衡に達した(と推測される)ときに二回目の測定が行われる。一回目と二回目の測定値の差を土壌呼吸速度とする。閉鎖型チャンバーに比べて外部からの風の影響や、通気することでチャンバー内部で空気の流動が起こる可能性はある。
- hybrid system
- 通気口があり、可能な限り風を侵入させないよう設計されている。この通気口がチャンバー内部の二酸化炭素の蓄積を防ぐ。それ以外は閉鎖型チャンバーと同じである。

複数の場所と時間で測定
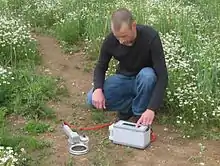
この方法では携帯型の開放型/閉鎖型チャンバーを使用する。異なる多くの地域で二酸化炭素の発生の経時変化を追跡する。土壌呼吸の測定部位を土壌に一定期間突き刺す。突き刺しにより土は乱れるため測定値がずれる可能性がある。このため、付近でいくつかの異なる場所でも測定を行う。
安定した同位体を使用し測定
植物の光合成経路は3種類あり、植物はそのいずれかで二酸化炭素を有機化合物に変換している。最も一般的なのはC3およびC4経路の二つである。C3植物は温暖または寒冷な湿潤環境に、C4植物は暑い乾燥環境に適応している。2つの経路で異なる酵素が関わるため、どちらの経路の産物かは炭素同位体で区別することができる。炭素同位体は質量が異なる。分子式が同じでも、C3経路の産物の総炭素重量はC4経路のそれよりも重い。したがって、C3植物の根滲出物や落枝、落葉はより重い同位体に富む。これら土壌有機物の同位体の比は炭素呼吸による二酸化炭素の同位体の比に近い。C3植物が生育していた土壌でC4植物を栽培する、あるいはその逆を行うとする。土壌呼吸測定で同位体比を分析すると、最近形成された有機物は古い有機物と異なる植物から生じたことを判定することができる。例えば、C3植物の春小麦が以前に生えていた土地にC4植物のトウモロコシが栽培された場合、定植からの40日間はC3 の土壌有機物が検出されるが、その後70日まで重い同位体の比率が日ごとに直線的に増加する。70日目から増加は緩やかとなり、100日目に最大値の増加限界となった[17]。土壌呼吸の炭素安定同位体を分析することにより、異なる経路で合成された土壌呼吸の基質を同定することができる。
人間による影響
人類は過去160年間にわたり、土地利用や工業活動により土壌の生物学的・物理的・地学的・化学的特性に影響を与えてきた。土壌呼吸への影響も大きい。
二酸化炭素の増加
有史以来、特に産業革命以来、人類は大気中に多量の二酸化炭素を放出してきた。放出量は時間経過とともに指数関数的に増大し、大気中の二酸化炭素濃度は75万年以上前から過去最高の水準となっている。土壌呼吸の程度は大気中の二酸化炭素濃度が高ければ高いほど大きくなる。将来の二酸化炭素濃度はさらに増加し、土壌呼吸の状況が変化することが予測されている。予測された高水準の二酸化炭素濃度が土壌等の環境にどのような影響を与えるかを評価する試験を開放系大気CO2増加(free air CO2 enrichment: FACE)試験という。FACE研究は、予測水準が根のバイオマスと微生物活性を増加させ、土壌呼吸を増大させることを示す[18]。米国テネシー州の甘草林とウィスコンシン州のポプラ林において、二酸化炭素濃度の増加と、40.6%もの土壌呼吸の増大が確認された[19]。人類の土地利用と化石燃料使用量の増加に伴い、2000年代中頃までに行われたFACE試験で用いられた条件を将来の二酸化炭素濃度は超える可能性が高い。
地球温暖化
地球温暖化の進行により土壌温度が増加傾向にある。これは、主に人間による森林伐採の結果であると考えられている。植物は土壌表面を覆い太陽からの赤外線エネルギーを遮断し、また冷却する。植物の喪失は土壌の冷却作用を失わせるとともに、従属栄養細菌を増やす。従属栄養細菌の増加は土壌呼吸を増やし、また、土壌有機物の分解産物を河川や海に流出させる。この分解作用とは別に森林伐採は土壌構造を脆弱にし、洪水の発生を誘発する。洪水もまた水圏への有機物とその分解産物の流出の要因となる。流出は水圏の表層水を混濁させ、水中への太陽光の進入を遮る。その結果、水生植物といった植物はさらに減少する。
土壌の従属栄養細菌を増やすことは地球温暖化の更なる進行を招く。土壌呼吸の速度は気温と正の相関関係にある。気温の増加は極地でも起こっている。極地での氷の一部が融けた場合、そこに保存されている二酸化炭素が解放されると考えられている。世界中で土壌呼吸速度の更なる促進が予想されている[20]。
降水量の変化
気温と海域の状況が変化したことで、各地域での降水の頻度と量が変化するものと予想されている。暴風雨の雨量と頻度は増加すると予想されている。この変化は低湿度および乾燥地域に影響を与えるだろう。乾燥地域での土壌呼吸は雨期に変化する。土壌呼吸速度は雨後に非常に高くなり、乾燥するにつれて通常の時期の水準に低下する[10]。過去に大雨が発生しなかった地域で降雨頻度および雨量が増加することで、土壌呼吸は劇的に増加することが推測される。
重要性
土壌呼吸は世界の炭素循環及び栄養素循環、ならびに気候変動に関わる。
炭素循環
土壌呼吸は生態系における炭素循環に深く関わる。毎年、およそ120×Pg(1 Pg = 1015g)の炭素が大気や土壌から陸上植物に取り込まれ、同量の炭素が生態系全体から放出されている。世界全体で土壌は3150 Pgの炭素を保有し、そのうち450 Pgが湿地、400 Pgが凍土に存在する。これは大気中の4倍の保有量である[22]。年間77 Pgが土壌呼吸により大気中に放出されていると推定されている[23]。この放出量は、化石燃料などの人為による年間放出量(6 Pg)よりも一桁大きい。したがって、土壌呼吸速度の変化は、たとえ小さくとも大気中の二酸化炭素濃度に大きな影響を及ぼす。そして、土壌中の炭素濃度の減少と二酸化炭素濃度の増加は生態系における炭素循環に大きな影響を与える。
栄養素循環
土壌呼吸は土壌有機物の分解によって生じ、環境中に二酸化炭素を放出する。加えて、土壌有機物の無機化による栄養素の発生と、土壌微生物への固定化を伴う。固定化は、微生物が呼吸作用により栄養素を取り込むことによって起こる。取り込まれた無機態の栄養素(無機体窒素など)は微生物の死によって土壌へと供給される。このため、土壌への無機体窒素の供給速度は土壌呼吸に相関される。Vanceらによると、土壌呼吸速度は微生物の代謝回転数と窒素無機化速度と関連していた[4]。
天候
土壌呼吸によって放出される二酸化炭素は温室効果ガスであり、地球温暖化の進行の要因となる。気温が上昇すると更に土壌呼吸が活性化され、地球温暖化は更に進行する。土壌呼吸は地球温暖化を自動で進行させる正の循環要因である。気温が2℃上昇すると、土壌呼吸による大気への炭素放出量は10 Pg/年(1 Pg = 1015g)になると推定されている[24]。この放出量は、化石燃料などの人為による年間放出量(6 Pg)よりも一桁大きい。この温度上昇は永久凍土に貯蔵されている炭素を放出する可能性も存在し、現に融解が進行している。2001年にNature誌に掲載された気候モデルによると、土壌呼吸の増加が原因で21世紀中期に土壌の炭素貯蔵量は減少する[25]。
脚注
- Berg J, Tymoczko J, Stryer L. (2002).
- Shibistova O, Lloyd J, Evgrafova S, Savushkina N, Zrazhevskaya G, Arneth A, Knohl A, Kolle O. (2002) Seasonal and spatial variability in soil CO2 efflux rates for a central Siberian Pinus sylvestris forest.
- Hutsch B, Augustin J, Merbach W. (2002) Plant rhizodeposition – an important source for carbon turnover in soils.
- Vance E, Chapin III F. (2001) Substrate limitations to microbial activity in taiga forest floors.
- Harrison M. (2005) Peace Talks and Trade Deals.
- Klein D, Prescott L, Harley J. (2005).
- Chapin III F, Matson P, Mooney H. (2002) Principles of terrestrial ecosystem ecology.
- Atkin O, Edwards E, Loveys B. (2000) Response of root respiration to changes in temperature and its relevance to global warming.
- Mikan C, Schimel J, Doyle A. (2002) Temperature controls of microbial respiration in Arctic tundra soils above and below freezing.
- Xu L, Baldocchi D, Tang J. (2004) How soil moisture, rain pulses, and growth alter the response of ecosystem respiration and temperature.
- Lambers H, Chapin III F, Pons T. (1998) Plant physiological ecology.
- Pate J, Layzell D. (1990) Energetics and biological costs of nitrogen assimilation.
- Sinsabaugh R, Carreiro M, Repert D. (2002) Allocation of extracellular enzymatic activity in relation to litter composition, N deposition, and mass loss.
- Wayson C, Randolph J, Hanson P, Grimmond P, Schmid H. (2006) Comparison of soil respiration methods in a mid-latitude deciduous forest.
- Field C, Ball J, Berry J. (1989) Photosynthesis, Principles and field techniques.
- Conen F, and Smith K. (2000) An explanation of linear increases in gas concentration under closed chambers used to measure gas exchange between soil and the atmosphere.
- Rochette P, Flanagan L, Gregorich E. (1999) Separating soil respiration into plant and soil components using analysis of natural abundance of carbon-13.
- Lipson D, Wilson R, Oechel W. (2005) Effects of Elevated Atmospheric CO2 on Soil Microbial Biomass, Activity, and Diversity in a Chaparral Ecosystem.
- King J, Hanson P, Bernhardt E, Deangelis P, Norby R, Pregitzer K. (2004) A multiyear synthesis of soil respiration responses to elevated atmospheric CO2 from four forest FACE experiments.
- Oechel W, Vourlitis G, Hastings S. (1995) Change in Arctic CO2 flux over two decades, Effects of climate change at Barrow, Alaska.
- Lutze J, Gifford R, Adams H. (2000) Litter quality and decomposition in Danthonia richardsonii swards in response to CO2 and nitrogen supply over four years of growth.
- Sabine C, Hemann M, Artaxo P, Bakker D, Chen C, Field C, Gruber N, Le Quere C, Prinn R, Richey J, Romero-Lankao P, Sathaye J, Valentini R. (2003) Current status and past trends of the carbon cycle.
- Raich J, and Potter C. (1995) Global patterns of carbon dioxide emissions from soils.
- Friedlingstein P, Dufresne J, Cox P. (2003) How positive is the feedback between climate change and the global carbon cycle?
- Cox P, Betts R, Jones C, Spall S, Totterdell I. (2000) Acceleration of global warming due to carbon-cycle feedbacks in a coupled climate model.
参考文献
- “The impact of land use change on C turnover in soils”. Global Biogeochemical Cycles 13 (1): 47–57. (1999). doi:10.1029/1998GB900005.
- Su B. (2005) Interactions between ecosystem carbon, nitrogen and water cycles under global change: Results from field and mesocosm experiments. University of Oklahoma, Norman, OK.
- Flanagan L, and Veum A. (1974) Relationships between respiration, weight loss, temperature and moisture in organic residues in tundra. Soil Organisms and decomposition in Tundra. 249-277.