水圏生態系
水圏生態系(すいけんせいたいけい)とは、水域にある生態系のことで、水界生態系とも呼ばれる。水圏生態系の中では、生物の群集がお互いに、また環境にも依存して生活している。水圏生態系には大きく分けて「海洋生態系」と「淡水生態系」がある[1]。
分類
海洋
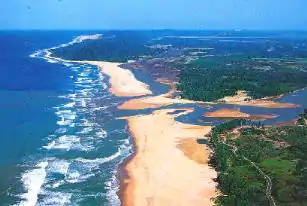
海洋生態系は、すべての生態系の中で最大のものであり[2]、地球表面の約71%を占め、地球上の水の約97%を含んでいる[1]。世界の純一次生産量の32%を生産する。淡水生態系とは、水中の溶存化合物、特に塩類の存在で区別されている。海水中の溶存物質の約85%はナトリウムと塩素である。海水の平均の塩分は35‰である。実際の塩分は海洋生態系によって異なる[3]。
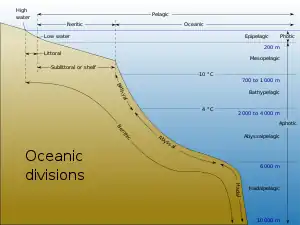
海洋生態系は、水深や海岸線の特徴によって多くの区域に分けられる。外洋域は、クジラ、サメ、マグロなどの動物が生息する広大な海洋の部分である。底層は、多くの無脊椎動物が棲む水面下の生息環境で構成されている。潮間帯は満潮線と干潮線の間の領域で、この図では沿岸帯と呼ばれている。その他の沿海域には、河口、塩沼、サンゴ礁、ラグーン、マングローブ湿地などがある。深海では熱水噴出孔があり、そこでは化学合成硫黄細菌が食物網の基盤を形成している。
海洋生態系で見られる生物の綱には、褐藻、渦鞭毛藻、サンゴ、頭足類、棘皮動物、サメなどがいる。海洋生態系で捕獲された魚類は、野生生物から得られる商用食料の最大の供給源である[1]。
海洋生態系に関する環境問題には、持続不可能な海洋資源の利用(特定の種の乱獲など)、海洋汚染、気候変動、沿岸域での造成などがある[1]。
淡水

淡水生態系は地球表面の0.78%、総水量の0.009%を占める。淡水生態系は、地球の純一次産出量の約3%を生み出している[1]。淡水生態系に世界の魚類の41%が生息している[4]。
淡水生態系には、基本的に3つの種類がある。
静水
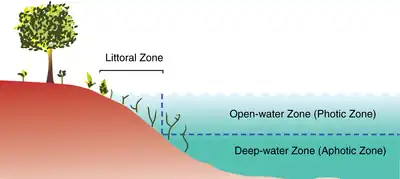
湖の生態系は区分できる。一般的なシステムでは、湖を3つの水域に分けている(図参照)。1つ目の水域である沿岸域は、汀線近くの浅い水域である。ここでは、根を張った湿地植物が生息している。沖合はさらに、開水域と深水域の2つの水域に分かれる。開水域(または有光層)では、太陽光が光合成藻類とそれを餌とする種を支えている。深水域では太陽光が利用できず、食物網は沿岸域と有光層から入ってくるデトリタスを基礎とする。一部のシステムでは他の名称を使用する。沖合の水域は沖帯と呼ばれ、無光層は深底帯と呼ばれることもある。沿岸域から内陸部には、湖の存在によって影響を受ける植物が存在する水辺を確認できる。湖全体の生産は、沿岸域に生育する植物の生産と、開水域に生育するプランクトンの生産が組み合わさっている。
湿地は、ほとんどの湖岸に沿って自然に形成されているため、止水域の一部と言えて、 湿地と沿岸帯の幅は、汀線の傾斜や年単位の水位の自然変化の程度に依存する。枯れた木は、湖岸の風倒木や洪水の際に運ばれた丸太などで、この水域に集められることが多い。この流木は、魚類や営巣する鳥に重要な生息地を提供するだけでなく、湖岸線を浸食から保護している。
湖には2つの重要な副分類があり、一般的には湿地との移行途中の小さな湖である池と貯水池である。長期間にわたって、湖やその中の湾は徐々に栄養分を蓄え、有機物の堆積物でゆっくりと満たされていく。人間が流域を利用すると、湖に流入する土砂の量がこの過程を加速させることがある。湖へ堆積物や栄養素を加えることは、富栄養化として知られている[1]。
池
池は、浅く静止した水、低湿地、水生植物のある淡水の小さな水域である[6]。池はさらに、植生域、開水域、底泥、極表面水の4つの水域に分けることができる[7]。池の大きさと深さは時期によって大きく変化することが多く、多くの池は春の河川氾濫によって作られる。食物網は、浮遊性の藻類と水生植物の両方に基づいている。いくつか例を挙げると、藻類、カタツムリ、魚、カブトムシ、水生昆虫、カエル、カメ、カワウソ、マスクラットなどを、通常、多様な水生生物がいる。頂点の捕食者には、大型の魚、サギ、またはワニなどがいる。魚は両生類の幼生を捕食する主要な捕食者なので、毎年干上がって生息する魚が死んでしまう池は両生類の繁殖のための重要な避難場所となる[8]。毎年完全に干上がってしまう池はバーナル池[9]として知られている。ワニの穴やビーバーの池など、動物の活動によって作られた池もあり、景観に重要な多様性を与えている。
動水
河川生態系の主要水域は、河床の勾配や流速によって決まる。動きの速い乱流水は、一般的に溶存酸素濃度が高く、水たまりのように動きの遅い水よりも生物多様性を支えている。これらの区別は、河川を高地の河川と低地の河川に分けるための基礎を形成している。河岸林内の河川の食物基盤は、ほとんどが樹木に由来するが、より広い河川や林冠のない河川では、食物基盤の大部分が藻類に由来する。溯河性魚種も重要な栄養源となっている。河川に対する環境の脅威には、水の損失、ダム、化学汚染、外来種などがある[1]。ダムは負の影響をもたらし、それは流域にも波及する。最も重要な悪影響は、湿地帯にダメージを与える春の洪水の減少と、三角州の湿地帯の損失につながる土砂の滞留である[8]。
湿地
湿地は、飽和土壌に適応した維管束植物が優占している[8]。湿地には主に4つの類型がある。沼沢地、低湿地、低層湿原、高層湿原である(低層湿原と高層湿原はいずれも泥炭地の一種である)。湿地は、水と土壌が近いため、世界で最も生産性の高い自然生態系である。そのため、湿地は多くの植物や動物の種を支えている。その生産性の高さから、湿地はしばしば堤防や排水溝を持つ乾燥した土地に変えられ、農業目的で使用される。堤防やダムの建設は、個々の湿地や流域全体に悪影響を及ぼす。湿地が湖や川に近いということは、人間の定住のために開発されることが多いことを意味する[1]。ニューオリンズ周辺のルイジアナ州沿岸はよく知られた例であり[10]、ヨーロッパのドナウ・デルタもその一つである[11]。
機能
水圏生態系は、多くの重要な環境機能を果たしている。例えば、栄養の再利用、水の浄化、洪水の抑制、地下水の涵養、野生生物の生息地の提供などである[12]。また、水圏生態系は人間のレクリエーションにも利用されており、特に沿岸地域の観光産業にとって非常に重要な役割を果たしている[4]。
水圏生態系の健全性は、生態系がストレスを吸収する能力を超えたときに低下する。水圏生態系へのストレスは、環境の物理・化学・生物的変化の結果という可能性がある。物理的変化には水温、水流、光の利用可能性の変化がある。化学的変化には、生物に刺激を与える栄養素、酸素消費物質、毒素の負荷速度の変化がある。生物学的変化には、商業種の収穫過剰や外来種の侵入が含まれる。人口は水圏生態系に過度のストレスを与える可能性がある[12]。過度のストレスが負の結果をもたらす例はたくさんある。以下の3つを考えてみよう。北アメリカの五大湖の環境史は、この問題を説明しており、特に水質汚染、過剰収穫、外来種などの複数のストレスがどのように組み合わされるかを示している[13]。イングランドのブロードランド・ノーフォークでは、水質汚染と外来種による同様の衰退を説明している[14]。メキシコ湾沿いのポンチャートレイン湖は、堤防建設、沼沢地の伐採、外来種、塩水の浸入など、様々なストレスの悪影響を示している[15]。
非生物的特性
生態系は、生物の相互作用と非生物環境因子によって構成された生物群集から構成されている。水圏生態系の重要な非生物環境因子には、基質の種類、水深、栄養塩濃度、温度、塩分、流れなどがある[8][12]。これらの要因の相対的重要性を決めるのは、かなり大規模な実験を行わないと難しいことが多い。複雑なフィードバックループがあるかもしれない。例えば、堆積物は水生植物の存在を決定するが、水生植物は堆積物をとらえ、泥炭を介して堆積物を増やすこともある。
水域の溶存酸素量は、水域の有機物の範囲と種類を決める上で重要な物質であることが多い。魚類は生きるために溶存酸素を必要とするが、低酸素に対する耐性は種によって異なる[16]。植物はしばしば通気組織を作らざるをえなくなるが、葉の形や大きさが変化することがある[17]。逆に、酸素は嫌気性細菌の多くの種にとって致命的である[18]。
栄養レベルは多くの種の藻類の豊富さを制御する上で重要である[19]。窒素とリンの相対的な豊富さは、事実上、藻類のどの種が優占するかを決定することができる[20]。藻類は水生生物にとって非常に重要な食料源であるが、同時に、藻類が過剰になると、腐敗したときに魚の減少を引き起こす可能性がある[13]。メキシコ湾などの沿岸環境における藻類の同様の過多は、腐敗時に、デッドゾーンとして知られる水の低酸素域を生成する[21]。
水域の塩分は、水域に生息する生物の種類を決定する要因でもある。海洋生態系の生物は塩分に耐性があるが、多くの淡水生物は塩分に耐性が無い。河口やデルタにおける塩分の程度は、湿地の種類(淡水、中間水域、汽水域)や関連する動物種に重要な影響を与える。上流に建設されたダムは、春の洪水を減少させ、土砂の堆積を減少させ、その結果、沿岸湿地に塩水が浸入する可能性がある[8]。
生物の特徴
生物の特徴は、主に現れる生物によって決まる。例えば、湿地の植物は、堆積物の広い面積を覆う密な覆いを形成したり、カタツムリやガチョウが大きな干潟を残して植生を食べることがある。水生環境は酸素濃度が比較的低く、そこに生息する生物は適応を余儀なくされる。例えば、多くの湿地の植物は、酸素を根に運ぶために通気組織を作らなければならない。他の生物の特徴は、競争、共生、捕食の相対的な重要性など、より微妙で測定が難しい[8]。カタツムリ、ガチョウ、哺乳類を含む沿岸の草食動物による捕食が支配的な生物学的要因であると思われる事例が増えてきている[22]。
独立栄養生物
独立栄養生物は、無機物から有機化合物を作る生産者である。藻類は太陽エネルギーを利用して二酸化炭素からバイオマスを生成し、水生環境でおそらく最も重要な独立栄養生物である[18]。水深が浅ければ浅いほど、根を張った浮遊する維管束植物のバイオマスの寄与が大きくなる。この独立栄養バイオマスが魚類、鳥類、両生類、その他の水生の種に変換されるため、これら2つの資源が組み合わされて、河口や湿地の驚異的な生産量を生み出している。
化学合成細菌は、海洋の底生生態系に生息している。これらの生物は、熱水噴出孔からの水に含まれる硫化水素を餌とすることができる。熱水噴出孔の周辺には、このバクテリアを餌とする動物が多く生息している。例えば、体長1.5mの巨大チューブワーム(Riftia pachyptila)や30cmのアサリ(Calyptogena magnifica)などがいる[23]。
注釈
- Alexander, David E. (1 May 1999). Encyclopedia of Environmental Science. Springer. ISBN 0-412-74050-8
- “University of California Museum of Paleontology: The Marine Biome”. 2018年9月27日閲覧。
- United States Environmental Protection Agency (2006年3月2日). “Marine Ecosystems”. 2006年8月25日閲覧。
- Daily, Gretchen C. (1 February 1997). Nature's Services. Island Press. ISBN 1-55963-476-6
- Vaccari, David A. (8 November 2005). Environmental Biology for Engineers and Scientists. Wiley-Interscience. ISBN 0-471-74178-7
- Clegg, J. (1986). Observer's Book of Pond Life. Frederick Warne, London. 460 p.
- Clegg, J. (1986). Observer's Book of Pond Life. Frederick Warne, London. 460 p. p.160-163.
- Keddy, Paul A. (2010). Wetland Ecology. Principles and Conservation.. Cambridge University Press. p. 497. ISBN 978-0-521-51940-3
- 間欠的な冠水のある浅い湿性草原
- Keddy, P.A., D. Campbell, T. McFalls, G. Shaffer, R. Moreau, C. Dranguet, and R. Heleniak. 2007. The wetlands of lakes Pontchartrain and Maurepas: past, present and future. Environmental Reviews 15: 1- 35.
- Gastescu, P. (1993). The Danube Delta: geographical characteristics and ecological recovery. Earth and Environmental Science, 29, 57–67.
- Loeb, Stanford L. (24 January 1994). Biological Monitoring of Aquatic Systems. CRC Press. ISBN 0-87371-910-7
- Vallentyne, J. R. (1974). The Algal Bowl: Lakes and Man, Miscellaneous Special Publication No. 22. Ottawa, ON: Department of the Environment, Fisheries and Marine Service.
- Moss, B. (1983). The Norfolk Broadland: experiments in the restoration of a complex wetland. Biological Reviews of the Cambridge Philosophical Society, 58, 521–561.
- Keddy, P. A., Campbell, D., McFalls T., Shaffer, G., Moreau, R., Dranguet, C., and Heleniak, R. (2007). The wetlands of lakes Pontchartrain and Maurepas: past, present and future. Environmental Reviews, 15, 1–35.
- Graham, J. B. (1997). Air Breathing Fishes. San Diego, CA: Academic Press.
- Sculthorpe, C. D. (1967). The Biology of Aquatic Vascular Plants. Reprinted 1985 Edward Arnold, by London.
- Manahan, Stanley E. (1 January 2005). Environmental Chemistry. CRC Press. ISBN 1-56670-633-5
- Smith, V. H. (1982). The nitrogen and phosphorus dependence of algal biomass in lakes: an empirical and theoretical analysis. Limnology and Oceanography, 27, 1101–12.
- Smith, V. H. (1983). Low nitrogen to phosphorus ratios favor dominance by bluegreen algae in lake phytoplankton. Science, 221, 669–71.
- Turner, R. E. and Rabelais, N. N. (2003). Linking landscape and water quality in the Mississippi River Basin for 200 years. BioScience, 53, 563–72.
- Silliman, B. R., Grosholz, E. D., and Bertness, M. D. (eds.) (2009). Human Impacts on Salt Marshes: A Global Perspective. Berkeley, CA: University of California Press.
- Chapman, J.L.; Reiss, M.J. (10 December 1998). Ecology. Cambridge University Press. ISBN 0-521-58802-2
参考文献
- Barange M, Field JG, Harris RP, Eileen E, Hofmann EE, Perry RI and Werner F (2010) Marine Ecosystems and Global Change Oxford University Press. ISBN 978-0-19-955802-5
- Boyd IL, Wanless S and Camphuysen CJ (2006) Top predators in marine ecosystems: their role in monitoring and management Volume 12 of Conservation biology series. Cambridge University Press. ISBN 978-0-521-84773-5
- Christensen V and Pauly D (eds.) (1993) Trophic models of aquatic ecosystems The WorldFish Center, issue 26 of ICLARM Technical Reports, volume 26 of ICLARM conference proceedings. ISBN 9789711022846.
- Davenport J (2008) Challenges to Marine Ecosystems: Proceedings of the 41st European Marine Biology Symposium Volume 202 of Developments in hydrobiology. ISBN 978-1-4020-8807-0
- Levner E, Linkov I and Proth J (2005) Strategic management of marine ecosystems Springer. Volume 50 of NATO Science Series IV. ISBN 978-1-4020-3158-8
- Mann KH and Lazier JRN (2006) Dynamics of marine ecosystems: biological-physical interactions in the oceans Wiley-Blackwell. ISBN 978-1-4051-1118-8
- Moustakas A and Karakassis I (2005) "How diverse is aquatic biodiversity research?" Aquatic Ecology, 39: 367–375.
- National Research Council (US) (1996) Freshwater ecosystems: revitalizing educational programs in limnology National Academy Press. ISBN 0-309-05443-5