触腕
触腕(しょくわん、英: tentacle)はイカ(十腕類)のみがもつ、伸縮自在で、餌を捕獲するための特殊な腕であり[1][2]、左右の第3腕(Ⅲ)と第4腕(Ⅳ)の間から伸びる[3]。タコの触手が8本であるのに対し、イカが10本なのはこの腕の有無による。
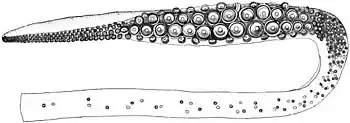
構造
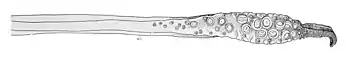
触腕は普通、他の腕よりも長く、獲物を捕らえる役割を持つ。また、これを切り離して逃げることもある。眼の下にあり第3腕と第4腕の間に開口するポケット中に触腕は折りたたまれる[3]。コウイカ類の触腕は完全にポケットの中に収めることができ、外からは見えないこともある[3]。ツツイカ類では完全には収納できず、常時出ているが、腕と同長程度に収縮させている[4]。
触腕は先端部が広くなり、その部分だけに吸盤があるが[3]、この部分を触腕掌部[5](しょくわんしょうぶ、tentacle club)または触腕頭[6](しょくわんとう、腕頭部[4])という。またそれを繋ぐ伸縮自在の部分を触腕柄(しょくわんへい、tentacle stalk[2]、柄部[4])と呼び、しばしば吸盤を欠く[2]。タコの吸盤と違い、イカ類(十腕形類)の吸盤は基部が柄のように細くなっており、吸盤の内部には角質環(かくしつかん、chitinous ring, horny ring)と呼ばれる硬い有機質のリングがある[7]。触腕掌部に沿って1または2の筋肉質の膜が拡がった泳膜 keel を持つものもいる[2]。先端部のものは反口襞 (aboral web)、基部のものは基部襞 (carpal flap) と呼ばれる[5]。
コウイカ類の触腕

コウイカ類の吸盤では、触腕掌部の吸盤が微小等大 (uniform) のものと、顕著に不等大 (unequal) のものがみられ、分類形質として用いられる[8]。普通触腕は他の腕より長いが、トサウデボソコウイカ Sepia subtenuipes Okutani & Horikawa, 1987 の成熟雄では第1腕の方が触腕より長く伸びる[9]。
開眼類の触腕
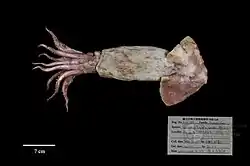
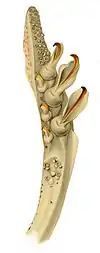
開眼類では触腕掌部の吸盤に機能による形態分化が見られ、基部 (carpus)、掌部(manus、または中央部[5])および先端部 (dactylus) の3群に分かれる[4]。基部にある小さな吸盤は carpal suckers と呼ばれ、反対側の触腕掌部の中央部の carpal knobs に引っ付き、触腕掌部を固定する[2]。carpal suckers と carpal knobs の明瞭な塊を carpal cluster (carpal pad) と呼び、固着器[10](こちゃくき、club-fixing apparatus)として働く[2]。掌部は先端部と基部の間にあり、触腕掌部の中央または「手」に当たる部分である[2]。中央部にはキチン質の鉤爪状の鉤(かぎ、hooks)を持つことがあり、これは発生学的には吸盤に由来する[2]。先端部は触腕の最も遠位端にあり、吸盤のサイズが減少することで特徴づけられる[2]。
ユウレイイカ Chiroteuthis picteti Joubin, 1894 の触腕柄は紐のように細長く、大きな発光器が十数個ついている[11]。触腕掌部には吸盤がびっしりと並び、その先端には大きい発光器がある[11]。これは誘蛾灯や擬似餌の役割をしているとも考えられている[11]。
ヤツデイカ科に属する種およびテカギイカ科のタコイカ Gonatopsis borealis Sasaki, 1920 は成長に伴って両方の触腕が失われ、イカ類でありながら8本腕となる[7][1]。
内部構造
触腕には硬い骨格がなく、筋肉包骨格[12][注釈 1](muscular hydrostat)と呼ばれる骨格支持機構による筋繊維の三次元的な配列な構造を持つ[15][16][13]。これは、多くの無脊椎動物が持つ水力学的骨格(hydrostatic skeleton)[注釈 2]として働く完全に液体に満たされた体腔を持たず、古典的な水力学的骨格の概念とは異なった仕組みで支えられている[16][13][15]。そのため支持、力の伝達、筋肉の拮抗、そして力の増幅や置換は典型的な硬い骨格や水力学的骨格からもたらされるのではなく、筋肉が運動の効果器や骨格の支持に働いている[16]。触腕の支持と運動は筋組織が体積変化に抵抗することにより行われる[16]。「付属肢の体積は基本的に一定であるため、ある面が縮小すると他の面が拡大する」という非常に単純な原理によって、腕の変形が起こっている[16]。
筋繊維は互いに垂直な3方向に配列しているため、三次元方向に全て能動的に制御され、顕著に多様な運動と変形ができる[16]。鞘形類の触腕では以下の3つの主要な筋肉の配向が観察されている[16]。
- 横走筋繊維 (transverse muscle fiber) - 前後軸に垂直な面に配列される
- 縦走筋繊維 (longitudinal muscle fiber) - 典型的に前後軸に平行な束で配列される
- 螺旋状または斜めに配列される筋繊維 - 右巻き螺旋、左巻き螺旋両方の配列がある
これらの筋肉のグループが選択的に活動することで、伸長、短縮、屈曲、ねじれおよび硬直が起こる[16]。最も多い筋繊維の種類は斜紋筋 (obliquely striated muscle) である[16]。横紋筋繊維は獲物を捕捉するイカの触腕の横走筋塊でのみ見られる[16]。これらの繊維は普通短いミオフィラメントおよびサルコメアを持ち、触腕の急速な伸長に必要な高い収縮速度を生み出す[16]。鞘形類は収縮速度を調節するために組織特異的なミオシンのアイソフォームではなく超微細構造の修飾 (ultrastructural modifications) を用いると考えられている[16]。
筋肉組織の形態と構造
axial nerve cord(以降、ANC[注釈 3])が触腕柄の中心を前後軸方向に走り、横走筋 (transverse muscle) の大きな塊に囲まれる[18]。この塊の中にある筋繊維の束は触腕の直径方向を横断するように拡がり、その前後軸と直交する[18]。横走筋繊維の束が外周に向かって拡がるときに、それらは触腕の前後軸と平行に配列した縦走筋 (longitudinal muscle) 繊維の束の間を通る[18]。それらが触腕柄の外表面に至る際、横走筋塊の筋繊維の束の中には横走筋および縦走筋の中心部を取り囲む薄い輪走筋 (circular muscle) 層の一部となって見られるものもある[18]。輪走筋層は内外1組の螺旋状に並んだ筋繊維の薄層により囲まれており、内層と外層はそれぞれ逆方向に巻く螺旋となっている[18]。
螺旋状の繊維と前後軸がなす角を fiber angle と呼ぶ[18]。アメリカケンサキイカ Doryteuthis pealeii (Lesueur, 1821) では、fiber angle は触腕を縮小させたときの最大約67°から、触腕を完全に伸ばした際の最小約36°まで変化する[18]。螺旋筋 (helical muscle) の層は表在縦走筋 (superficial longitudinal muscle) の層に取り囲まれる[18]。
結合組織は ANC を取り囲む層や、上記の様々な筋肉群の接合面にあるほか、様々な筋肉塊の中にある筋繊維の隙間を埋めるように分布している[18]。色素胞、血管や神経を含んだ疎性真皮結合組織は表在縦走筋の外側を一周するように取り囲む[18]。そしてその外側を単層立方上皮および単層円柱上皮が取り囲み、触腕柄を完全に覆っている[18]。
支持と運動の生体力学
筋組織や他の組織は圧力が変化しても体積は変化しにくく、触腕の体積は基本的に一定であるため、ある面の縮小により別の面が拡大することで、触腕の支持と運動が可能になっている[18]。捕食行動の際の急激な触腕の伸長は、横走筋およびそれと連携した輪走筋の変化により起こる[18]。その短縮により横断面積が減少するが、体積は少ししか減少しないため、触腕長は増加する[18]。触腕の短縮は縦走筋の収縮により、縦走筋は横断面を増加させることによって横走筋組織を再び拡張する[18]。従って、脊椎動物の関節にある反対側の筋肉と類似した仕組みで、横走筋と縦走筋が拮抗筋として働く[18]。
横走筋は直交するパターンで並び、横走筋の収縮により触腕の高さと幅がともに減少するため、横走筋および輪走筋繊維の変位と収縮速度が増幅される[18]。この横断面の減少は触腕の伸長 (長さの1乗) をもたらす面積 (長さの2乗) の減少を表し、よって横走筋と輪走筋の短縮が増幅される[18]。放射軸方向の張力 εr と前後軸方向の張力 εl の関係は、下式のように表せる[18]。
εr = (1+εl)−1/2−1
例えば、典型的な獲物の捕捉の際には、触腕の直径が25%減少するだけで、約80%の伸長ができる[18]。この変位の増幅は出力よりも入力の方が比較的短い、硬い骨格(外骨格および内骨格)のてこ装置と類似している[18]。機械的な増幅が触腕の素早さに一部寄与しているのに加え、横走筋および輪走筋繊維が高い短縮速度への特殊化を示す[18]。
右巻きまたは左巻きの螺旋筋の層 (helical muscle layers) は前後軸を中心とする触腕のねじれを引き起こす[18]。攻撃による伸長の際には、触腕はよくねじれ、獲物の向きによってどちらの方向にも曲がる能力があることが確認されている[18]。吸盤の付いた面で獲物を捕捉するため、触腕掌部の方向を変えるのにこのねじれが重要となる[18]。生体工学的には、収縮する螺旋筋層の巻き方に依存してねじれが起こると考えられている[18]。螺旋筋層は、触手が伸長したり短縮したりする際に、螺旋の経路長の変化に対応しなければならない[18]。触腕が完全に収縮した状態から伸長すると、螺旋筋は短くなり、 54°44′までに達する[18]。触腕がこの点を超え、fiber angle がさらに減少すると、螺旋筋が伸長される[18]。周縁部の螺旋筋の層はより中央部の位置に比べ、トルクを適用することができるより大きなモーメントをもたらす[18]。
脚注
注釈
出典
- 奥谷 2010, pp. 2–34.
- FAO 2005, pp. 20–36.
- 佐々木 2008, pp. 86–95.
- 巌佐ほか 2013, p. 679.
- 奥谷・田川・堀川 1987, pp. 27–28.
- 広島大学生物学会 1971. plate 79–85
- 佐々木 2002.
- Sasaki 1929, pp. 162–163.
- 奥谷・田川・堀川 1987, pp. 56–59.
- 奥谷 2009, pp. 185–186.
- 奥谷 2009, pp. 91–93.
- 新山 2019, pp. 16–21.
- シュミット=ニールセン 2007, p. 404.
- Schmidt-Nielsen 1997, p. 429.
- Kier 1987, pp. 257–269.
- Kier 2016, pp. 1–2.
- シュミット=ニールセン 2007, p. 402.
- Kier 2016, pp. 2–4.
参考文献
- Food and Agriculture Organization of the United Nations (2005). P. Jereb & C.F.E. Roper. ed. Cephalopods of the World: An Annotated and Illustrated Catalogue of Cephalopod Species Known to Date Volume 1 Chambered Nautiluses and Sepioids (Nautilidae, Sepiidae, Sepiolidae, Sepiadariidae, Idiosepiidae and Spirulidae).
- Kier, William M. (1987). “The Functional Morphology of the Tentacle Musculature of Nautilus pompilius”. In W. Bruce Saunders & Neil H. Landman. NAUTILUS. pp. 257–269
- Kier, William M. (2016-02-18). “The Musculature of Coleoid Cephalopod Arms and Tentacles”. Front. Cell Dev. Biol. 4 (10): 1–16. doi:10.3389/fcell.2016.00010.
- Sasaki, Madoka (1929), A Monograph of the Dibranchiate Cephalopods of the Japanese and Adjacent Waters, Sapporo: Coll. Agric. Hokkaido Imp. Univ.
- Schmidt-Nielsen, Knut (1997). Animal Physiology — Adaptation and environment (fifth edition ed.). Cambridge University Press. p. 429. ISBN 0-521-57098-0.
- 巌佐庸、倉谷滋、斎藤成也、塚谷裕一『岩波生物学辞典 第5版』岩波書店、2013年2月26日。ISBN 9784000803144。
- 奥谷喬司、田川勝、堀川博史『日本陸棚周辺の頭足類 大陸棚斜面未利用資源精密調査』社団法人 日本水産資源保護協会、1987年、25–28頁。
- 奥谷喬司『イカはしゃべるし、空も飛ぶ』講談社〈講談社ブルーバックス〉、2009年8月20日。ISBN 978-4-06-257650-5。
- 奥谷喬司『新鮮イカ学』東海大学出版会、2010年7月20日、2-34頁。
- 佐々木猛智 (2002). 貝の博物誌. 東京大学総合研究博物館
- 佐々木猛智 (2008). “軟体動物の解剖:コウイカ・サザエ・ホタテガイ”. 化石 (日本古生物学会) 84: 86–95.
- クヌート・シュミット=ニールセン (Knut Schmidt-Nielsen) 著、宮田真人 訳「第10章 動き、筋肉、バイオメカニクス」『動物生理学 環境への適応[原著第5版]』沼田英治、中島康裕 監訳(初版)、東京大学出版会、2007年9月20日、404頁。ISBN 9784130602181。
- 新山龍馬 (2019). “ソフトロボティクスはどこからきてどこへ行くのか”. 日本ロボット学会誌 37 (1): 16–21.
- 広島大学生物学会 著、池田嘉平、稲葉明彦 編『日本動物解剖図説』森北出版、1971年9月22日。ISBN 4-627-26020-2。