DNAクランプ
DNAクランプ(DNA clamp)又はスライディングクランプ(sliding clamp)とは、DNA複製を進行させる機能を持つタンパク質複合体である。DNAポリメラーゼホロ酵素の重要な構成要素の1つとしてクランプタンパク質はDNAポリメラーゼに結合し、このDNAポリメラーゼがDNA合成のために鋳型DNAと結合している際に鋳型鎖から解離することを防ぐ。クランプ-ポリメラーゼタンパク質間相互作用は、ポリメラーゼと鋳型DNA鎖の間の直接的な相互作用よりも強力かつ特異的である。ポリメラーゼとDNA鎖の結合はDNA合成反応の律速段階の一つであるため、DNAクランプにより解離と再結合の必要性が無くなることで、DNAクランプが存在しない場合と比較して最大1,000倍ほどDNA合成速度が上がる[2]。


構造
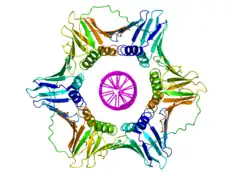
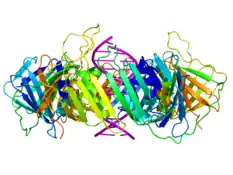
DNAクランプのフォールディング構造はα+βタンパク質であり、ポリメラーゼが伸長中の鎖にヌクレオチドを追加すると、DNA二重らせんを完全に取り囲む多量体構造に組み立てられる[3]。このリング形状により、DNAクランプ及びそれに強力かつ特異的に結合するDNAポリメラーゼはDNA鎖から解離しなくなる。DNAクランプ多量体は複製フォーク上で組み立てられ、ポリメラーゼの前進に伴ってDNA上を「スライド」する。この移動は、クランプタンパク質の中央の穴と、そこを貫通するDNAとの間にある水分子の層によって補助される。
DNAクランプは、真正細菌、古細菌、真核生物、及びいくつかのウイルスにみられる。細菌DNAクランプはDNAポリメラーゼIIIのβサブユニット2個で構成されるホモ二量体であるため、βクランプ(beta clamp)と呼ばれる。古細菌[4]と真核生物ではホモ三量体であり、増殖細胞核抗原(PCNA)と呼ばれる。 T4バクテリオファージは、gp45と呼ばれるDNAクランプも利用する。gp45は、PCNAと構造が似ているが、PCNAまたはβクランプと配列相同性がない三量体である[3]。
| 界 | DNAクランプタンパク質 | 多量体 | 結合するDNAポリメラーゼ |
|---|---|---|---|
| 真正細菌 | polIIIのベータサブユニット | 二量体 | DNAポリメラーゼIII |
| 古細菌 | 古細菌PCNA | 三量体 | polε |
| 真核生物 | PCNA | 三量体 | DNAポリメラーゼδ |
| ウイルス | gp43 / gp45 | 三量体 | RB69 Pol / T4 Pol |
細菌DNAクランプ
細菌DNAクランプはDNAポリメラーゼIIIホロ酵素のβサブユニットの二量体であり、βクランプ(beta clamp)と呼ばれる。DNA複製の際にDNAポリメラーゼIIIホロ酵素のγサブユニットがATP加水分解によってエネルギーを得て、2個のβサブユニットからβクランプの組み立てを触媒する。βサブユニットは3つのトポロジー的に同等のドメイン(N末端、中央、C末端)で構成されており、2個のβサブユニットが緊密に会合し、二本鎖DNAを取り囲む閉環を形成する。このDNAとβクランプの結合体は、複製前複合体と呼ばれる。この組み立ての後、βクランプはγサブユニットからαサブユニットとεサブユニットに対して特異的な親和性で結合し、これらが組み合わさって完全なDNAポリメラーゼIIIホロ酵素が形成される[5][6][7]。
βクランプは二本鎖DNA上をスライドして移動し、その次にαεポリメラーゼ複合体に結合する。αサブユニットはDNAポリメラーゼ活性を持ち、εサブユニットは3'-5'エキソヌクレアーゼである[7]。
| ||||||||||||||||||||||||||||
|
|
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
特定の非ステロイド性抗炎症薬(カプロフェン、ブロムフェナク、及びベダプロフェン)は、細菌のDNAクランプを阻害することにより細菌のDNA複製をある程度抑制する[8]。
真核生物DNAクランプ
| 増殖細胞核抗原 | |
|---|---|
 | |
| 識別子 | |
| 略号 | PCNA |
| Entrez | 5111 |
| HUGO | 8729 |
| OMIM | 176740 |
| PDB | 1axc (RCSB PDB PDBe PDBj) |
| RefSeq | NM_002592 |
| UniProt | P12004 |
| 他のデータ | |
| EC番号 (KEGG) | 2.7.7.7 |
| 遺伝子座 | Chr. 20 pter-p12 |
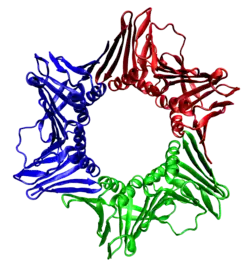
真核生物のDNAクランプは、増殖細胞核抗原(PCNA: proliferating cell nuclear antigen)と呼ばれるDNAポリメラーゼδの特定サブユニット3つから組み立てられる。サブユニットのN末端ドメインとC末端ドメインはトポロジー的に同一であり、また3つのサブユニットは緊密に結合し、中心の孔に二本鎖DNAを通した閉環を形成する。
PCNAの配列は、植物、動物、真菌に至るまで真核生物の間でよく保存されており、真核生物全体で同様のDNA複製メカニズムが保存されていることを暗示する[10][11]。PCNAのホモログは、古細菌(ユーリ古細菌門とクレン古細菌門)及び核多角体病ウイルスにおけるPBCV-1で見出されている。
|
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
ウイルスDNAクランプ
| DNAポリメラーゼアクセサリータンパク質45 | |||||||
|---|---|---|---|---|---|---|---|
 | |||||||
| 識別子 | |||||||
| 由来生物 | |||||||
| 3文字略号 | gp45 | ||||||
| Entrez | 1258821 | ||||||
| PDB | 1CZD | ||||||
| RefSeq (Prot) | NP_049666 | ||||||
| UniProt | P04525 | ||||||
| 他データ | |||||||
| EC番号 | 2.7.7.7 | ||||||
| 染色体 | 1: 0.03 - 0.03 Mb | ||||||
| |||||||
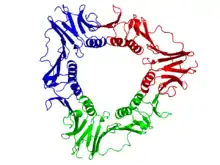
ウイルスのgp45スライディングクランプは三量体であり、そのサブユニットタンパク質には2つのドメインがあり、各ドメインは、2つのαヘリックスと2つのβシートで構成されている。フォールドは重複しており、内部に擬2回対称性がみられる[13]。3個のgp45分子が密接に関連して、二本鎖DNAを取り囲む閉環を形成する。
|
| ||||||||||||||||||||||||||||||||||||||||||||
クランプローダー
DNAクランプは、クランプローダー(clamp loader)という特殊なタンパク質によって鋳型鎖にロードされ、DNA複製が完了した後に分解される。DNAクランプ上のこれらの複製開始タンパク質のための結合部位はDNAポリメラーゼのための結合部位と重複しているため、DNAクランプはクランプローダーとDNAポリメラーゼに同時に結合することはできない。したがって、ポリメラーゼと結合している間は、クランプは分解されない。DNAクランプは、ヌクレオソーム会合因子、岡崎フラグメントリガーゼ、 DNA修復タンパク質など、DNA及びゲノムの恒常性に関与する他の因子とも結合する。これらのタンパク質全てにおいて、DNAクランプ上の結合部位はクランプローダーのためのものと共通しているため、これらの酵素がクランプと結合することによって安定的にDNAに作用している間はクランプは取り外されず、また酵素も機能し続ける。クランプローダーがDNAを取り囲むクランプを「閉じる」ためには、ATPの加水分解によるエネルギーが必要となる。
脚注
- PDB: 1W60; “Structural and biochemical studies of human proliferating cell nuclear antigen complexes provide a rationale for cyclin association and inhibitor design”. Proc. Natl. Acad. Sci. U.S.A. 102 (6): 1871–6. (February 2005). doi:10.1073/pnas.0406540102. PMC 548533. PMID 15681588.
- “Rate-limiting steps in the DNA polymerase I reaction pathway”. Biochemistry 24 (15): 4010–8. (July 1985). doi:10.1021/bi00336a031. PMID 3902078.
- “The ring-type polymerase sliding clamp family”. Genome Biol. 2 (1): REVIEWS3001. (2001). doi:10.1186/gb-2001-2-1-reviews3001. PMC 150441. PMID 11178284.
- “Crystal structure of an archaeal DNA sliding clamp: Proliferating cell nuclear antigen from Pyrococcus furiosus”. Protein Sci. 10 (1): 17–23. (January 2001). doi:10.1110/ps.36401. PMC 2249843. PMID 11266590.
- Lewin, Benjamin (1997). Genes VI. Oxford [Oxfordshire]: Oxford University Press. pp. 484–7. ISBN 978-0-19-857779-9
- Lehninger, Albert L (1975). Biochemistry: The Molecular Basis of Cell Structure and Function. New York: Worth Publishers. pp. 894. ISBN 978-0-87901-047-8
- “Mechanism of the sliding beta-clamp of DNA polymerase III holoenzyme”. J. Biol. Chem. 266 (17): 11328–34. (June 1991). PMID 2040637.
- “DNA Replication Is the Target for the Antibacterial Effects of Nonsteroidal Anti-Inflammatory Drugs”. Chemistry & Biology 21 (4): 481–487. (2014). doi:10.1016/j.chembiol.2014.02.009. PMID 24631121.
- PDB: 1AXC; “Structure of the C-terminal region of p21(WAF1/CIP1) complexed with human PCNA”. Cell 87 (2): 297–306. (October 1996). doi:10.1016/S0092-8674(00)81347-1. PMID 8861913.
- “Highly conserved structure of proliferating cell nuclear antigen (DNA polymerase delta auxiliary protein) gene in plants”. European Journal of Biochemistry 195 (2): 571–5. (January 1991). doi:10.1111/j.1432-1033.1991.tb15739.x. PMID 1671766.
- “Structure of the sliding clamp from the fungal pathogen Aspergillus fumigatus (AfumPCNA) and interactions with Human p21”. The FEBS Journal 284 (6): 985–1002. (March 2017). doi:10.1111/febs.14035. PMID 28165677.
- PDB: 1CZD; “Crystal structure of the DNA polymerase processivity factor of T4 bacteriophage”. J. Mol. Biol. 296 (5): 1215–23. (March 2000). doi:10.1006/jmbi.1999.3511. PMID 10698628.
- “Building a replisome from interacting pieces: sliding clamp complexed to a peptide from DNA polymerase and a polymerase editing complex”. Cell 99 (2): 155–166. (1999). doi:10.1016/S0092-8674(00)81647-5. PMID 10535734.
参考文献
- Molecular Biology of the Gene. San Francisco: Pearson/Benjamin Cummings. (2004). ISBN 978-0-8053-4635-0