KHドメイン
KHドメイン(K homology domain)は、KHドメインは約70アミノ酸からなる進化的に保存されたタンパク質ドメインであり、ヒトhnRNP Kタンパク質で最初に同定された。このドメインは、RNAに結合して認識する機能を持つもの[1]など、広範囲の核酸結合タンパク質に存在している。いくつかのタンパク質には複数コピー存在し、それらが協働的に機能する場合や、それぞれ独立した機能を持つ場合がある。例えば、RNAのAUリッチエレメントに結合するタンパク質であるKHSRPには4つのKHドメインが存在し、3番目と4番目のKHドメインは独立した結合モジュールとして、AUリッチRNA標的内の異なる領域と相互作用する[1]。FMR1のN末端のKHドメインやhnRNP KのC末端のKHドメインの溶液構造がNMRによって決定されており、β-α-α-β-β-α構造が明らかにされている[2][3]。KHドメイン含有タンパク質NOVA1に対する自己抗体は、傍腫瘍性オプソクローヌス・ミオクローヌス症候群の原因となる。また、40Sリボソームタンパク質S3のN末端に位置するKHドメインは、通常のKHドメインとは異なるフォールドをとる[4]。
| KH domain | |||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|
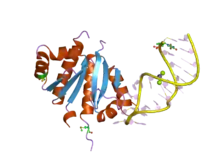 ヒトVigilin(HDLBP)のKHドメインの構造 | |||||||||||
| 識別子 | |||||||||||
| 略号 | KH_1 | ||||||||||
| Pfam | PF00013 | ||||||||||
| Pfam clan | CL0007 | ||||||||||
| InterPro | IPR018111 | ||||||||||
| SMART | KH | ||||||||||
| SCOP | 1vig | ||||||||||
| SUPERFAMILY | 1vig | ||||||||||
| |||||||||||
| KH domain | |||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|
| 識別子 | |||||||||||
| 略号 | KH_2 | ||||||||||
| Pfam | PF07650 | ||||||||||
| InterPro | IPR004044 | ||||||||||
| SMART | KH | ||||||||||
| PROSITE | PS50823 | ||||||||||
| |||||||||||
核酸結合
KHドメインはRNAまたは一本鎖DNAのいずれかに結合する。核酸は伸長したコンフォメーションでドメインの片側に結合する。結合は、ヘリックスα1とα2、GXXGループ、可変ループ(variable loop)の間に形成される溝で行われる[5]。この溝は疎水的な性質を持ち、その他さまざまなタンパク質特異的相互作用によって複合体は安定化される。核酸塩基とタンパク質の芳香族側鎖とのスタッキング相互作用は他のタイプの一本鎖核酸結合モチーフで広くみられるが、KHドメインによる核酸認識ではこうした相互作用はみられない[5]。
グループ

タイプI、IIと呼ばれる構造的に異なる2種類のKHドメインの存在が明らかにされている[4]。タイプIは主に真核生物のタンパク質に存在し、タイプIIは主に原核生物のタンパク質に存在する。どちらのタイプも最小限のコンセンサス配列モチーフは共通であるものの、フォールドは異なる。タイプIはβシートを形成する3本のストランドは全て逆平行型であるのに対し、タイプIIでは3本のストランドのうちの2本は平行型配置となっている。タイプIはタンパク質中に複数コピー存在することが多いのに対し、タイプIIは各タンパク質に1コピーだけ存在するのが一般的である[5]。
出典
- “The structure of the C-terminal KH domains of KSRP reveals a noncanonical motif important for mRNA degradation”. Structure 15 (4): 485–98. (April 2007). doi:10.1016/j.str.2007.03.006. PMID 17437720.
- “The solution structure of the first KH domain of FMR1, the protein responsible for the fragile X syndrome”. Nat. Struct. Biol. 4 (9): 712–6. (September 1997). doi:10.1038/nsb0997-712. PMID 9302998.
- “High precision solution structure of the C-terminal KH domain of heterogeneous nuclear ribonucleoprotein K, a c-myc transcription factor”. J. Mol. Biol. 289 (4): 949–62. (June 1999). doi:10.1006/jmbi.1999.2818. PMID 10369774.
- Grishin NV (February 2001). “KH domain: one motif, two folds”. Nucleic Acids Res. 29 (3): 638–43. doi:10.1093/nar/29.3.638. PMC 30387. PMID 11160884.
- “Structure and function of KH domains”. FEBS J. 275 (11): 2712–26. (June 2008). doi:10.1111/j.1742-4658.2008.06411.x. PMID 18422648.