シロイヌナズナ属
シロイヌナズナ属(シロイヌナズナぞく、学名: Arabidopsis)は、アブラナ科の一属。キャベツやマスタードと同じ科に属する小さな顕花植物である。本属には、植物の中で世界で初めて全ゲノムが解読され、モデル生物として植物学の分野で活用されるシロイヌナズナが属する。シロイヌナズナやその近縁種はよく変異が見られるため、モデル生物として有用である。
| シロイヌナズナ属 | |||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
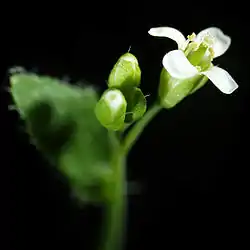 シロイヌナズナの花 | |||||||||||||||||||||
| 分類(APG III) | |||||||||||||||||||||
| |||||||||||||||||||||
| 学名 | |||||||||||||||||||||
| Arabidopsis Heynh. in Holl & Heynh. | |||||||||||||||||||||
| タイプ種 | |||||||||||||||||||||
| Arabidopsis thaliana L. | |||||||||||||||||||||
| シノニム | |||||||||||||||||||||
|
Cardaminopsis (C.A.Mey.) Hayek | |||||||||||||||||||||
| 和名 | |||||||||||||||||||||
| シロイヌナズナ属 | |||||||||||||||||||||
| 種 | |||||||||||||||||||||
|
本文参照 |
概要
O'KaneとAl-Shehbaz[1][2]などによる形態学的・分子的系統分類に基づく分類によれば現在、シロイヌナズナ属は9種と8亜種が認められている。分類学的アプローチの違いによっては、それ以上の種を認めることもあり、例えばMarcus A. Kochらは13種9亜種とする説を主張した[3]。
O'KaneとAl-Shehbazによれば以前はシロイヌナズナ属に含まれていた多くの種は多系統に由来するものであった。最新の再分類では、これまでCardaminopsis属とHylandra属に分類されていた2種とヤマハタザオ属の3種がシロイヌナズナ属に移動し、Beringia属、Crucihimalaya属、Ianhedgea属、Olimarabidopsis属、Pseudoarabidopsis属といった新しい属に移動した50種は除外されている。
シロイヌナズナ属の種は全てヨーロッパに自生しているが、そのうち2種は北米やアジアにも広く分布している。
2000年にシロイヌナズナの全ゲノム解読が終了して以降、シロイヌナズナ属の植物は植物科学における様々な研究をするためのモデル生物として、研究者たちから大きな関心を集めてきた。シロイヌナズナの遺伝学および分子生物学研究のための精選されたオンライン情報資源であるThe Arabidopsis Information Resource(TAIR)[4]や、シロイヌナズナの生物学に関する招待論文をまとめたオンライン版The Arabidopsis Book[5]など、シロイヌナズナの研究に関する情報は広く集積され、利用されてきた。ヨーロッパでは、シロイヌナズナの遺伝資源、バイオインフォマティクス、分子生物学リソース(GeneChipsを含む)は Nottingham Arabidopsis Stock Centre(NASC)が中心になって行っており、北米ではオハイオ州立大学にあるArabidopsis Biological Resource Center (ABRC) で遺伝資源を提供している。ABRCの注文システムは2001年6月にTAIRデータベースに組み込まれたが、NASCは1991年以来、独自の注文システムとゲノムブラウザを使っている。
1982年、ソ連の宇宙ステーションであるサリュート7号の乗組員がシロイヌナズナを栽培し、宇宙で花を咲かせて種子を作った最初の植物となった。この時のシロイヌナズナのライフスパンは、40日間であった[6]。2019年には、学生実験の一環として、中国の月探査船・嫦娥4号によってシロイヌナズナの種子が月へ運ばれた。2022年5月現在、シロイヌナズナは月の土壌のサンプルで栽培することに成功している[7]。
主な種・亜種
- Arabidopsis arenicola (Richardson ex Hook.) Al-Shehbaz, Elven, D.F. Murray & S.I. Warwick(グリーンランド、カナダのラブラドール地方、ヌナブト準州、ケベック州、オンタリオ州、マニトバ州、サスカチュワン州)
- Arabidopsis arenosa (L.) Lawalrée
- A. arenosa subsp. arenosa (ヨーロッパ:オーストリア、ベラルーシ、ボスニア・ヘルツェゴビナ、ブルガリア、クロアチア、チェコ共和国、フランス北東部、ドイツ、ハンガリー、イタリア北部、ラトビア、リトアニア、マケドニア、ポーランド、ルーマニア、スロバキア、スロベニア、スイス、ウクライナで自生;ベルギー、デンマーク、エストニア、フィンランド、オランダ、ノルウェー、ロシアと西シベリア、スウェーデンでは帰化;アルバニア、ギリシャ、イタリア中部・南部、トルコには存在しない)
- A. arenosa subsp. borbasii(ベルギー東部、チェコ、フランス北東部、ドイツ、ハンガリー、ポーランド、ルーマニア、スロバキア、スイス、ウクライナに生息)
- Arabidopsis cebennensis (D.C.)(フランス南東部)
- Arabidopsis croatica (Schott)(ボスニア, クロアチア)
- Arabidopsis halleri (L.)
- A. halleri subsp. halleri(オーストリア、クロアチア、チェコ、ドイツ、イタリア北部・中部、ポーランド、ルーマニア、スロバキア、スロベニア、スイス、ウクライナ南部に生息。フランス北部にも持ち込まれたとされており、ベルギーでは絶滅している。)
- A. halleri subsp. ovirensis (Wulfen)(アルバニア、オーストリア、イタリア北東部、ルーマニア、スロバキア、スロベニア、ウクライナ南西部、旧ユーゴスラビア)
- A. halleri subsp. gemmifera (Matsumura)(極東ロシア、中国北東部、韓国、日本、台湾)
- A. halleri subsp. gemmifera var. coronata (Nakai) — マルバハタザオ
- A. halleri subsp. gemmifera var. senanensis (Matsum.) — ハクサンハタザオ
- A. halleri subsp. gemmifera var. umezawana (Kadota) — リシリハタザオ
- A. kamchatica (DC.)K.Shimizu et Kudoh
- A. kamchatica subsp. kamchatica — ミヤマハタザオ(アラスカ北部、カナダ(ユーコン準州、マッケンジー地区、ブリティッシュコロンビア州、サスカチュワン州北部)、アリューシャン列島、シベリア東部、極東ロシア、韓国、中国北部、日本、台湾)
- A. kamchatica subsp. kawasakiana (Makino) K.Shimizu et Kudoh — タチスズシロソウ
- Arabidopsis lyrata (L.) O'Kane & Al-Shehbaz
- A. lyrata subsp. lyrata(ヨーロッパロシア北東部、アラスカ、カナダ(オンタリオ州西部からブリティッシュコロンビア州にかけて)、アメリカ南東部・中部(バーモント州からジョージア州北部、ミシシッピ州からミズーリ州・ミネソタ州北部にかけて))
- A. lyrata subsp. petraea (Linnaeus) O'Kane & Al-Shehbaz(オーストリア、チェコ、イングランド、ドイツ、ハンガリー、アイスランド、アイルランド、イタリア北部、ノルウェー、ロシア(北東部、シベリア、極東ロシア)、スコットランド、スウェーデン、ウクライナ、北アメリカ北部(アラスカ、ユーコン準州)に生息。ポーランドでは絶滅したとされる)
- Arabidopsis neglecta (Schultes) (カルパティア山脈(ポーランド、ルーマニア、スロバキアとウクライナの隣接地域))
- Arabidopsis pedemontana (Boiss.)(イタリア北西部に生息。隣接するスイス南西部では絶滅したとされる)
- Arabidopsis suecica (Fries) Norrlin, Meddel.(フェノスカンジア、バルト海沿岸)
- Arabidopsis thaliana (L.) Heynh. — シロイヌナズナ(原産地はヨーロッパから中央アジアのほぼ全域だが、現在は世界中に帰化している)
過去の分類
以下の種は、以前はシロイヌナズナ属に分類されていたものの、現在では別の属に含まれると考えられている。
- A. bactriana → Dielsiocharis bactriana
- A. brevicaulis → Crucihimalaya himalaica
- A. bursifolia → Beringia bursifolia
- A. campestris → Crucihimalaya wallichii
- A. dentata → Murbeckiella pinnatifida
- A. drassiana →
- A. erysimoides → Erysimum hedgeanum
- A. eseptata → Olimarabidopsis umbrosa
- A. gamosepala → Neotorularia gamosepala
- A. glauca → Thellungiella salsuginea
- A. griffithiana → Olimarabidopsis pumila
- A. himalaica → Crucihimalaya himalaica
- A. huetii → Murbeckiella huetii
- A. kneuckeri → Crucihimalaya kneuckeri
- A. korshinskyi → Olimarabidopsis cabulica
- A. lasiocarpa → Crucihimalaya lasiocarpa
- A. minutiflora → Ianhedgea minutiflora
- A. mollis → Beringia bursifolia
- A. mollissima → Crucihimalaya mollissima
- A. monachorum → Crucihimalaya lasiocarpa
- A. mongolica → Crucihimalaya mongolica
- A. multicaulis → Arabis tibetica
- A. novae-anglicae → Neotorularia humilis
- A. nuda → Drabopsis nuda
- A. ovczinnikovii → Crucihimalaya mollissima
- A. parvula → Thellungiella parvula
- A. pinnatifida → Murbeckiella pinnatifida
- A. pumila → Olimarabidopsis pumila
- A. qiranica → Sisymbriopsis mollipila
- A. richardsonii → Neotorularia humilis
- A. russeliana → Crucihimalaya wallichii
- A. salsugineum → Eutrema salsugineum
- A. sarbalica → Crucihimalaya wallichii
- A. schimperi → Robeschia schimperi
- A. stenocarpa → Beringia bursifolia
- A. stewartiana → Olimarabidopsis pumila
- A. stricta → Crucihimalaya stricta
- A. taraxacifolia → Crucihimalaya wallichii
- A. tenuisiliqua → Arabis tenuisiliqua
- A. tibetica → Crucihimalaya himalaica
- A. tibetica → Arabis tibetica
- A. toxophylla → Pseudoarabidopsis toxophylla
- A. trichocarpa → Neotorularia humilis
- A. trichopoda → Beringia bursifolia
- A. tschuktschorum → Beringia bursifolia
- A. tuemurnica → Neotorularia humilis
- A. verna → Drabopsis nuda
- A. virgata → Beringia bursifolia
- A. wallichii → Crucihimalaya wallichii
- A. yadungensis →
染色体数
細胞遺伝学的解析により、シロイヌナズナ属植物の一倍体の染色体数(n)は、種によって異なることが示されている[8]。シロイヌナズナはn = 5であり[9]、そのDNA配列は2001年に完成した。A. lyrataはn = 8であるが、一部の亜種や個体群は4倍体である[10]。A. arenosaは様々な亜種がn = 8であるが、2倍体または4倍体の場合もある。バルカン半島、中央ヨーロッパ東部、バルト海沿岸では2倍体、アルプス、カルパチア、中央・北ヨーロッパでは4倍体が見られることが報告されている[11][12]。A. suecicaはn = 13で、A. thaliana(n = 5)とA. arenosa(n = 8)との二倍体との交雑で生じた両倍体の種である[13]。A. neglectaはn = 8であり、A. halleriの亜種も同様である[11]。2005年現在、A. cebennensis、A. croatica、A. pedemontanaは解析されていない。
自家不和合性
シロイヌナズナは自家和合性を持つため、自殖(自家生殖)で種子をつけることができる一方、同じくシロイヌナズナ属に属するハクサンハタザオなどの近縁種は自家不和合性を持つため、自殖することができない。例えばハクサンハタザオでは、自身の花粉が柱頭についても花粉管を伸長させることができないため、種子を作ることができない。このことから、シロイヌナズナでは、進化の過程においてこのシステムが不活性化することによって自家不和合性から自家和合性になっており、自殖が可能になったと考えられており、自家不和合性に関する研究に用いられている[14][15]。
脚注
注釈
出典
- O'Kane, Steve L.; Al-Shehbaz, Ihsan A. (1997). “A synopsis of Arabidopsis (Brassicaceae)”. Novon 7 (3): 323. doi:10.2307/3391949. JSTOR 3391949.
- O'Kane, Steve L.; Al-Shehbaz, Ihsan A. (2003). “Phylogenetic position and generic limits of Arabidopsis (Brassicaceae) based on sequences of nuclear ribosomal DNA”. Annals of the Missouri Botanical Garden 90 (4): 603. doi:10.2307/3298545. JSTOR 3298545.
- Nora, Hohmann A; Roswitha, Schmickl; Tzen-Yuh, Chiang; Magdalena, Lučanová; Filip, Kolář; Karol, Marhold; Marcus, A Koch (2014). “Taming the wild: resolving the gene pools of non-model Arabidopsis lineages”. BMC Evol Biol . 14. doi:10.1186/s12862-014-0224-x. PMID 25344686.
- “TAIR - Home Page”. 2022年10月7日閲覧。
- “The Arabidopsis Book”. American Society of Plant Biologists (2019年4月13日). 2021年8月14日閲覧。
- “First species of plant to flower in space” (英語). Guinness World Records 2017年3月10日閲覧。
- Keeter, Bill (2022年5月12日). “Scientists Grow Plants in Lunar Soil”. NASA. 2022年5月13日閲覧。
- Al-Shehbaz, Ihsan A.; O'Kane Jr, Steve L. (2002). “Taxonomy and Phylogeny of Arabidopsis (Brassicaceae)”. The Arabidopsis Book. Volume 1. 1. The American Society of Plant Biologists. e0001. doi:10.1199/tab.0001. PMC 3243115. PMID 22303187
- Lysak, M. A; Berr, A; Pecinka, A; Schmidt, R; McBreen, K; Schubert, I (2006). “Mechanisms of chromosome number reduction in Arabidopsis thaliana and related Brassicaceae species”. Proceedings of the National Academy of Sciences 103 (13): 5224–5229. Bibcode: 2006PNAS..103.5224L. doi:10.1073/pnas.0510791103. PMC 1458822. PMID 16549785.
- Dart, Sara; Kron, Paul; Mable, Barbara K (2004). “Characterizing polyploidy in Arabidopsis lyrata using chromosome counts and flow cytometry”. Canadian Journal of Botany 82 (2): 185. doi:10.1139/b03-134.
- Joly, Simon; Schmickl, Roswitha; Paule, Juraj; Klein, Johannes; Marhold, Karol; Koch, Marcus A. (2012). “The Evolutionary History of the Arabidopsis arenosa Complex: Diverse Tetraploids Mask the Western Carpathian Center of Species and Genetic Diversity”. PLOS ONE 7 (8): e42691. Bibcode: 2012PLoSO...742691S. doi:10.1371/journal.pone.0042691. ISSN 1932-6203. PMC 3411824. PMID 22880083.
- Filip, Kolář; Gabriela, Fuxová; Eliška, Záveská; Atsushi, J Nagano; Lucie, Hyklová; Magdalena, Lučanová; Hiroshi, Kudoh; Karol, Marhold (2016). “Northern glacial refugia and altitudinal niche divergence shape genome-wide differentiation in the emerging plant model Arabidopsis arenosa”. Mol Ecol . 25 (16): 3929-3949. doi:10.1111/mec.13721. PMID 27288974.
- Jakobsson, Mattias; Hagenblad, Jenny; Tavaré, Simon; SäLl, Torbjörn; Halldén, Christer; Lind-Halldén, Christina; Nordborg, Magnus (2006). “A Unique Recent Origin of the Allotetraploid Species Arabidopsis suecica: Evidence from Nuclear DNA Markers”. Molecular Biology and Evolution 23 (6): 1217–31. doi:10.1093/molbev/msk006. PMID 16549398.
- Keita, Suwabe; Kaori, Nagasaka; Endang, Ayu Windari; Chihiro, Hoshiai; Takuma, Ota; Maho, Takada; Ai, Kitazumi; Hiromi, Masuko-Suzuki et al. (2006). Double-locking mechanism of self-compatibility in Arabidopsis thaliana: the synergistic effect of transcriptional depression and disruption of coding region in the male specificity gene. 23. pp. 1217–31. doi:10.3389/fpls.2020.576140.. PMID 33042191.
- 土松 隆志『植物はなぜ自家受精をするのか』慶應義塾大学出版会、2017年。ISBN 978-4-7664-2299-3。
参考文献
- Al-Shehbaz, I. A., O'Kane, Steve L. (2002). Taxonomy and Phylogeny of Arabidopsis (Brassicaceae). The Arabidopsis Book: 1-22.
- Ceccato, Luca; Masiero, Simona; Sinha Roy, Dola; Bencivenga, Stefano; Roig-Villanova, Irma; Ditengou, Franck Anicet; Palme, Klaus; Simon, Rüdiger; Colombo, Lucia (2013-06-17). Grebe, Markus (ed.). "Maternal Control of PIN1 Is Required for Female Gametophyte Development in Arabidopsis". PLoS ONE. 8 (6): e66148. doi:10.1371/journal.pone.0066148. ISSN 1932-6203. PMC 3684594. PMID 23799075.
- O'Kane Jr, S. L., i Al-Shehbaz, I. A. (1997). A synopsis of Arabidopsis (Brassicaceae): Novon 7: 323–327.
- O'Kane Jr, S. L., i Al-Shehbaz, I. A. (2003). Phylogenetic position and generic limits of Arabidopsis (Brassicaceae) based on sequences of nuclear ribosomal DNA: Annals of the Missouri Botanical Garden 90 (4): 603–612.
- “The Arabidopsis Book”. American Society of Plant Biologists (2019年4月13日). 2021年8月14日閲覧。 (Note that in 2013 ASPB decided to stop publishing new chapters.)