ニオイシュロラン
ニオイシュロラン Cordyline australis は、センネンボク属に属する単子葉植物の木本の一種。ニュージーランドの固有種であり、その特徴的な景観を形作る要素となっている。
| ニオイシュロラン | |||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
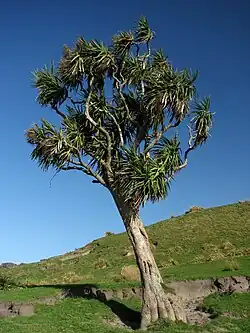 ニュージーランド南島のタスマン地方に自生する個体 | |||||||||||||||||||||
| 分類 | |||||||||||||||||||||
| |||||||||||||||||||||
| 学名 | |||||||||||||||||||||
| Cordyline australis (Forst. f.) Hook. f. | |||||||||||||||||||||
| 英名 | |||||||||||||||||||||
| cabbage tree・cabbage-palm[1] | |||||||||||||||||||||
 生態型とその分布。マオリ語で名付けられた型もある。
|
高さ20 mにまで成長し[2]、頑丈な幹を持つ。葉は1mに達する剣のような形で、分岐した枝の先端に塊状に付く。果実は鳥に好まれる。ニュージーランドのほぼ全域に分布し、マオリ人によって周辺の島々にも移植されている[3]。森林の縁・川岸・平野・沼周辺など様々な環境で生育できる[2]。1本の幹を持つ木として最大のものはゴールデン湾岸のパカワウに存在し、およそ400-500歳、高さ17 m、基部の周囲9 mの個体である[4]。
マオリ人にはtī kōukaと呼ばれ、広く栽培されて食料・繊維・薬用に用いられた。丈夫で成長が速いため、ニュージーランドでは様々な場所に植えられ、多くの栽培品種も作出されている。ティリティリ・マタンギ島などの島において、生態系の再生プロジェクトにも広く用いられた[5]。
和名は、花序がシュロに似ており、芳香があることに由来する。
形態
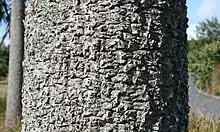
最大で20mに達する。幹は太く、直径1.5-2m。開花前には細く分岐しない茎を持つが、最初の開花後には、先端に葉の房のついた多くの分岐した枝からなる樹冠を形成する。各枝は花序の形成後にさらに分岐することもある。樹皮は明灰色から暗灰色のコルク質、表面に亀裂はあるが自然には剥がれず、触るとスポンジ状である[2][6][7][8]。
葉は細長く剣状に直立し、明緑色から暗緑色。長さ40-100cm、基部の幅は3-7cm。多数の平行脈を持つ[2][7]。枝の先端に塊状につき、葉の先端や、古くなった葉では基部も垂れ下がることがある。葉は厚く、中肋ははっきりせず、細かい脈がある程度均一に平行に走る。葉の表と裏にあまり差はない[8]。
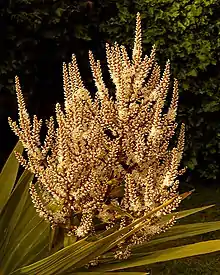
春から初夏に甘い香りの花を、60-100cmの大きな総状花序につける。花と花序は無柄かほぼ無柄で、花は花序に沿って密集して並ぶ。花を保護する苞葉は、開花前にはピンクを帯びることが多い。カンタベリー地方南部からオタゴ地方北部の個体では、苞葉は緑色である[2][7][9]。
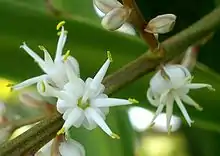
各花は直径5-6 mm、6枚の花被片は基部近くで分離し、反り返っている。雄蘂の長さは花被片とほぼ同じ。雌蘂は短く、柱頭は3裂する[2][7]。果実は白い液果で直径5-7 mm[2]。
大きな杭状の根茎は、成長した個体では3mに達し、地中に垂直に伸びている。これは植物体を地面に固定するほか、フルクトースをフルクタンの形で蓄える役割がある。若木の根茎は主に肉質で、貯蔵組織の細胞壁も薄い。これらの組織は二次肥大成長した分裂組織に由来する[10]。
地域変異
ニュージーランド産のセンネンボク属は、現在より温暖だった1500万年前頃(中新世)に熱帯域から流入して定着したものである[11]。地域の気候や地質に応じて、本種は場所によって異なった形質を獲得している。この差異によって木全体の外見や、枝・葉・色・強靭さなどが異なるものとなっている。また、疫病や昆虫の攻撃に対抗する生化学的な変異も見られる[12]。北島のマオリ語ではこれらの差異によって、本種は北部ではTītī・中央高地ではtī manu・東部ではtarariki・西部ではwharanuiという4つの異なる名で呼ばれる[13]。
ノースランド地方の個体は遺伝的多様性が大きく、古い系統の残存を示唆している[14]。最も北の個体群は細く柔らかな葉を持ち、植物学者のPhilip SimpsonはCordyline pumilio との雑種であるとしている[15]。東部では、本種は細く真っ直ぐな暗緑色の葉を持つ。だが、通常より幅広い葉を持つ個体もあり、これはノース岬とその近隣の島々に生育するCordyline obtecta との雑種であると考えられる。このタイプはカリカリ半島からコロマンデル半島までの海岸で見られる。ノースランド地方西部とオークランド地方に分布する tītī 型は、若いうちは非常に細く、新しいカウリマツの森林で一般的に見られる[16]。開けた場所では大型になり、細長い枝と比較的短く広い葉を持つ[17]。
tī manu型は北島の火山高原で見られ、背が高く頑丈、比較的分岐の少ない茎と、大きく真っ直ぐで強靭な葉を持つ。葉は大きく放射状に広がり、高原の寒い冬に適応していることが示唆される。成長した個体では、葉はより幅広くなる傾向がある。ワンガヌイ川上流に沿って、状態の良い個体が生育している。tī manu型は元々、溶岩・火山灰・軽石でできた開けた地域に由来する可能性がある。タラナキ地方北部・King Country・ベイ・オブ・プレンティ地方の低地でも見られる[16]。
Tarariki型は北島東部、イースト岬からワイララパで見られる。マオリ人は特に、細く尖った葉を丈夫で耐久性のある繊維として用いていた。この強靭な繊維はおそらく、この地域の暑く乾燥した夏への適応である。ワイララパの一部では、葉は特に尖って頑丈で、葉身は内側に向かって巻いている。イースト岬近くではこれと対照的に、葉は柔らかで垂れ下がる。ホーク湾では緑色の幅広い葉を持つ個体が見られ、マナワツ渓谷を通じて東側にWharanui型が進入していると考えられる[18]。
Wharanui型は北島の西部で見られる。これは長く幅広い、柔らかい葉を持ち、おそらく年中吹き続ける西風に適応している。 ウェリントン・ホロフェヌア・ワンガヌイで見られる[18]。タラナキ地方南部沿岸では少し形態が異なり、縮小した樹冠と幅広く真っ直ぐな葉を持つ[19]。Wharanui型は南島で最もよく見られる型でもあるが、多少の変異はある。北島のものと同等の型は、キャンベル岬からキャットリンズ北部の、海岸から南アルプス山脈の東側斜面で見られる。マールボロ地方のワイラウ渓谷では古い葉をつけたままにする傾向が見られ、乱雑な外見となる。この地域の気候は極端で、夏は暑く乾燥し、冬は寒い[17]。
南島のタスマン地方では、気候や土壌によって3つの生態型に分けられる。石灰岩の断崖に生育する型は、強靭な青緑の葉を持つ。川岸の平野に生育する型は、背が高く樹冠の高さに変動があり、細く垂れ下がった暗緑色の葉を持ち、北島のイースト岬で見られるものに似ている。最も西側の沿岸に見られる型は、頑丈な幹と、幅広く青みがかった葉を持つ。この内2つの型はウェスト・コースト地方でも見られ、垂れ下がった葉を持つタイプは湿潤で肥沃な谷筋に、青みがかった葉を持つタイプは海風にさらされた岩の斜面を好む[16]。
南島のオタゴ地方では、南に向かうほど個体数が減少していき、キャットリンズ北部では見られなくなる[20]。ワイカワからフィヨルドランドの沿岸では再び見られるようになるが、これはWharanui型ではなく、幅広い緑色の葉と大きく広がった樹冠を持つタイプである。このタイプは内陸の、氷河から流れ出す水を湛えた湖の周辺まで広がっている。若木の成長は非常に早く、非常に寒い冬によく適応している[13]。
28地点から集めた種子より育てた個体によって、葉の形状や寸法の変化傾向が調査されている。苗木は成長とともに消失する赤褐色の色素を持つが、この色素は南の個体ほど見られる頻度が高い。葉は北から南に、低地から山地に向かうほど細く頑丈になる傾向を示し、これは寒冷な気候への適応であると考えられる[21]。
分類
1769年、エンデバー号によるジェームズ・クックの第一回太平洋探検航海に同行した博物学者、ジョゼフ・バンクスとダニエル・ソランダーによって採集された[22]。模式産地はQueen Charlotte Soundである[7]。1786年にゲオルク・フォルスターのFlorulae Insularum Australium Prodromus において、Dracaena australis として記載された[23]。特に北半球の植物市場では、現在でもドラセナ属として扱われていることがある。
属名Cordyline は古代ギリシャ語のkordyle(棍棒)に由来し、肥大した根茎に因んだものである[24]。種小名australis はラテン語で"南の"を意味する。英名cabbage tree は、いくつかの資料では、初期の移民が若い葉をキャベツの代用として用いたことによるとしている[25]。だが、この名はニュージーランドへの移民の前に既に存在していた可能性がある。フォルスターは1777年のVoyage round the World で、フィヨルドランドに自生する本種の近縁種について、"真のcabbage palmではない"、"中央の芽は、柔らかい時にはアーモンドの風味があるが、キャベツのような味はあまりない"と書いている[26]。
ニュージーランド固有の5種のセンネンボク属の中で最も背が高くなる種である。Cordyline banksii は最もよく見られる種で、細く立ち上がった幹を持つ。Cordyline indivisa は高さ8mと大型で、巨大な樹冠を持ち、葉は幅広く、長さは2mに達する[25]。Cordyline obtecta は本種と最も近縁で[27]、北方では本種との雑種も確認されている。この雑種は大型で分岐が多く、葉が細く種子は小さい[28]。染色体数が本種と同じ2n=38であるため、Cordyline pumilio やC. banksii が近くに自生する場所では、これらとの雑種もよく見られる[28]。
本種はマオリ人に古くからよく知られていた。センネンボク属はマオリ語で"tī"と呼ばれ、本種に対しては"tī kōuka"・"tī kāuka"・"tī rākau"・"tī awe"・"tī pua"・"tī whanake"などの名称がある[7][29][30]。各部族が利用目的や特徴によって、本種を異なる名で呼んできた[31]。外見に由来する名としては、大型になるもの (tī rākau, tī pua) ・花が白いもの (tī puatea) ・葉が幅広いもの (tī wharanui) ・葉の縁が波打つもの (tī tahanui) ・葉が尖るもの (tī tarariki) などがある。利用法に由来するものとしては、果実が鳥を惹きつけるもの (tī manu) ・葉が縄の製作に向いたもの (tī whanake) ・網の製作に向いたもの (tī kupenga) がある。最も広く用いられる"tī kōuka"は本来、食用に用いる葉の芯を指す[32]。
生態
生息環境
Philip Simpsonは本種の生息環境について次のように書いている。
"古代のニュージーランドでは、ニオイシュロランは様々な環境に生育していた。光・湿度・土壌・温度が成熟に必要な条件を満たしていたならば、森林・岩海岸・低湿地・湖や川の周辺・孤立した岩の上まであらゆる場所で見られた。海から陸へ近づいていくと、ポリネシア人の旅人は故郷のイメージを、ヨーロッパ人の旅人は熱帯太平洋のイメージを思い起こすだろう"[33]
本種はノース岬から南島の南端まで自生する。南ほど数は少なくなり[34]、南限はインバーカーギル西部のSandy Point (46° 30' S) である。フィヨルドランドの大部分では、おそらく適した環境がないために自生しない。ニュージーランドの亜南極諸島でも、おそらく寒すぎるために自生は知られていない。プア・ナイツ諸島、スチュアート島、チャタム諸島などの沖合の島には存在するが、これらはおそらくマオリ人が持ち込んだものである。スチュアート島では希少で[35]、かつてのハイイロミズナギドリ採集者が生活していたいくつかの島や岬のみで生育している[36]。チャタム諸島でも大部分の地域では見られない[37]。
通常は低地に自生し、標高1000m以下の場所で見られる。最も標高の高い自生地は北島の火山高原で、噴火によって他の植物が一掃されたスペースに進出を果たしている。南島では、南アルプス山脈の山麓における森林破壊によって、本種が高地に進出する余地ができたという側面もある[38]。北島火山高原に自生するtī manu型は南島の南端に自生する個体といくらか似た部分があり、同様に寒さに適応した結果だと考えられる[34]。
陽性の先駆植物で、苗木は他の植物に上を覆われると枯死する。成木は水を蓄えられるため旱魃に耐性があるが、苗木は十分な水が必要である。このため、砂丘や山腹での生育には、湿った窪みや水源が必要である。土壌の肥沃さも影響しており、カンタベリー地方の移民は本種が自生する場所を好んで庭園として利用した。落ち葉は分解後に、肥沃な土壌を形成する。他には、温度、特に霜は重要な要因で、若木は霜によって死に、成長した個体でもダメージを受ける。このため、本種は霜の降りる内陸部の高地には生育できない[39]。
初期のヨーロッパ人の探検家は、川岸や大きな沼、低地の谷に沿って"cabbage tree のジャングル"が広がっていると書いている。現在、これらの地域は肥沃な平野として農地化されており、かつて見られたような群落は最早存在しない[40]。現代のニュージーランドでは、生態系の一部としてではなく、孤立して植栽されることが多い[12]。
繁殖
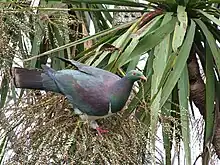
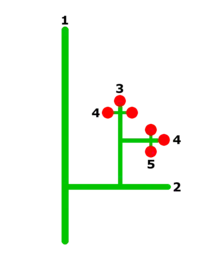
秋に葉の塊の中心から、まだ開いていない棘状の葉の芽が伸び始める。この内、いくつかの成長点は花序に成長するように変化し、その周囲の2-3個の芽は葉に成長するものとして残る。この花序と葉の芽は、まだ開いていない葉に包まれて冬を越す[41]。これは数ヶ月後の春から初夏に開いて花を咲かせ[42]、4-6週間に渡って最大限の送粉者を惹きつける[43]。花の甘い香りは多くの昆虫を引き寄せるが、花の蜜にはエステルとテルペンを中心とした芳香族化合物が含まれ、特に蛾を誘引する。ミツバチはこの蜜を元に明るい色の蜂蜜を生産し、これをエネルギー源として初夏に巣の大きさを増大させる[44]。果実が熟すには約2ヶ月かかり、夏の終わりには鳥によって散布されるようになる。花序の構造は頑丈であるため、かつては主要な種子散布者であったニュージーランドバトのような重い鳥も花序に掴まることができる。各果実は3-6個の光沢のある黒い種子を含み、各種子は木炭に似た物質 (phytomelan) に覆われる。この物質は鳥の消化管内で種子を保護する役割がある。種子には多くのリノレン酸が含まれ、発芽時の栄養となるほか、鳥の産卵にも重要である[45]。新しく形成された茎が花序をつけるまでには約2年かかることから、3-5年ごとに多くの花をつける年が巡ってくる[46]。各花序は5,000-10,000の花をつけるため、大型の花序では約40,000の種子を持つことになり、豊作の年には木1本あたり100万個、木立全体では億単位の種子ができることになる[47]。
山火事
地中に埋まった根茎から芽を出して幹を再生できるため、ニュージーランドの木本の中では山火事を生き残れる数少ない種である。再生速度も速く、競合する他の植物より優位に立つことができる。葉は油を含み燃えやすいが、この油には葉の分解を防ぎ、木の根元に落ち葉の厚い層を形成して他の植物の発芽を防ぐ役割がある。種子にも油が含まれ、数年は発芽能力を保つ。山火事が植生を一掃した後、多くの種子が開いた空間で発芽する[34]。
成長した個体では、火災や風害による傷害の後、幹から直接萌芽枝を出すことがある。大きな被害を受けたり、中空になったりした根茎の脇から新しい根茎が再生することもあり、これは地中に向けて伸びて植物体全体を再生する。このような再生が起きるため、古い木は多数の幹を持つことになる[48]。
生物多様性
健全な生態系において、本種は多くの動植物と関わっている。最も普通に見られる着生植物は、シダ類・アステリア属・ラン科である。成長した木は、蔓性のチャセンシダ属の茂みに覆われたり、湿潤な場所ではコケシノブ科や、特にマメゴケシダ属のTrichomanes reniforme が枝に絡みつくこともある。アステリア属や、同じアステリア科のCollospermum hastatum が枝の分岐部に生育したり、数種の着生性ラン類の宿主となることもできる。他の着生植物としては、グリセリニア属のGriselinia lucida や、コケ類・地衣類・菌類などがある。Phanaerochaeta cordylines ・Sphaeropsis cordylines の2種の菌類は本種の生体組織のみから発見されている[49]。
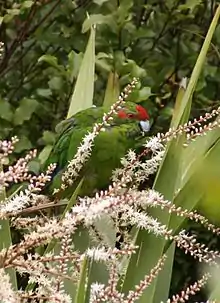
鳥類では、ニュージーランドミツスイが古い葉や花序の間に営巣するほか、クロアカツクシガモは一般的に、平野に立つ老木の根本に巣を作る。アオハシインコが枝葉の間で摂餌する姿もよく見られる[50]。カンタベリー地方南部では日中に、ミゾクチコウモリが鳥の巣として用いられた後の枝の空洞で休息する[51] 。果実はニュージーランドミツスイ・エリマキミツスイやニュージーランドバトに好まれる[52]。マオリ人は、ハトを果実によって惹き寄せて捕獲するための木立 (pā tī) を作成していた[53]。ある入植者は1840年頃に見た光景について、"ある時期になるとハトの巨大な群れが白い果実を食べるために飛来し、飛ぶことも難しくなるほどの重さになるまで食べ続けた。銃の使用は禁じられていた。マオリ人は先端に輪縄を付けた長い竿を持って葉の下に座り込み、食事中の不注意なハトの首に輪縄を巻き付けて締め上げ、捕まえていた" と語っている[54]。森林破壊により在来の鳥は減少してしまったため、現在では外来種のホシムクドリが果実に群がっている[51]。
花の蜜も昆虫やミツスイ類に好まれる。葉と粗い樹皮は、イモムシ・蛾・小型の甲虫・ハエの幼虫・クロギリス科・有肺類などの理想的な棲家となる。これらの虫はセアカホオダレムクドリやサンショクヒタキ属のPetroica longipes などの鳥に捕食される。樹皮は着生植物の足場を提供している他、枯れた葉には昆虫や花の蜜を食べるトカゲ類が潜む[6][8]。花を摂食するトカゲ類も見られ、コモチヤモリ属のHoplodactylus chrysosireticus は本種の葉の間に隠れるための保護色を持っている[51]。
甲虫・蛾・ハチ・ハエなどの昆虫が樹皮・葉・花を様々な方法で利用する。植物体を餌とするものだけでなく、枯れて垂れ下がった葉はクロギリス類の冬場の隠れ場所となる。これらの多くの昆虫は、自生個体だけでなく公園や庭の栽培個体でも見られる[55]。葉が分解した後には黒い腐食が残り、これは端脚類・ミミズ・ヤスデなどを養うことになる[56]。本種に固有の昆虫が9種確認されている。最もよく知られているのがシャクガ科のEpiphryne verriculata で、枯れ葉に完全に擬態している。卵は中央にある葉の芽の基部に産み付けられ、孵化した幼虫は葉の表面に大きな穴を開けて食い進み、葉の縁に特徴的な切り欠きを残す。この蛾は若い木にも産卵するが、成虫の隠れ場所となる枯れた葉が少ないため、成長した木に比して被害の度合いは少ない[57]。
脅威
Sudden Decline
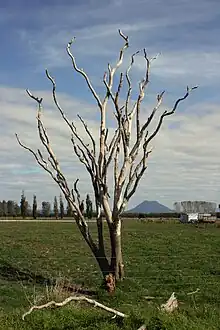
疫病による枯死が最初に報告されたのは、1987年、北島でのことである。これはすぐにノースランド地方・オークランド地方に拡大して大流行を始めた。この症状は後に"Sudden Decline"と呼ばれることになる。影響を受けた木は葉が黄色に変色し、古い葉から萎れて落ち始め、2-12ヶ月で全ての葉を喪失する。新しい葉の成長も止まり、枯れた枝のみ、または乾燥した花序を残すのみとなる。同時に樹皮も弱くなり、すぐに脱落するようになる。枯死率は最大で、オークランド周辺で18-26%を記録した[58]。
長年に渡ってこの現象の原因は不明で、加齢・菌類・ウイルス・紫外線量の上昇などが考えられた[35]。また、他の地域から持ち込まれた個体をノースランド地方・オークランド地方に移植したことで、現地の環境に適応できていない株が普及してしまったことも要因の一つとして考えられている[12]。ニュージーランドの土地情報局は、北島火山高原のタウポに在来植物の育種場を持っており、ここから公園・保護区・街路樹などの目的で本種個体が供給されていた。多くのノースランド地方の公園で、この個体が在来個体のすぐ近くに植えられており、その交雑した子孫は地域の環境にうまく適応していない可能性がある[15]。5年間の研究の結果、Sudden Declineの原因は、おそらくオーストラリアから移入されたハゴロモ科昆虫のScolypopa australis によって媒介されるファイトプラズマの一種、Phytoplasma australiense であるとの結論が下された。
Sudden Declineによって各地の個体群は打撃を受け、特に北部では大型の木が全て枯死した場所もある。だが、農地など開けた場所の木が影響を受けた一方、自然林の木はあまり影響を受けなかった。北島南部と南島北部の個体でも、枝の枯死は少なく、症状は軽微だった。2010年までに、感染によって重い症状を示す個体は減少したというデータがある[2][35][58]。
Rural Decline
Sudden Declineによる被害を契機として、農村部において本種が危機に瀕していることも注目されるようになった[59]。これは、放牧地などに生える成長した個体が、次第に枝を失って枯死していくというもので、植物学者はこの現象を"Rural Decline"と呼ぶことを提案している。
農家によって沼地が干拓された後も、本種の木立は残されることがよくある[2][60]。だが、本種が牧場での唯一の木陰となった結果、家畜はその周囲に集まり、幹に体を擦り付けて樹皮を傷付け、周囲の土を踏み固める。牛・羊・山羊・鹿は樹皮を剥がし、その下の栄養のある組織を食べる[61]。哺乳類によって傷付けられた幹が治ることは少なく、時間とともに傷口は広がってゆき、最終的に幹の中央の組織が腐り落ち、植物体の全長に渡る空洞を残すのみとなる。幹は変形し、地上1mほどの樹皮が完全に剥がれ落ちた状態となる。これは細菌や菌類の感染を招き、枝や樹冠に感染が広がることで、植物体全体が枯死する[62]。
他の外来の哺乳類による被害も報告されている。フクロギツネは葉は食べないが、糖分の多い若い花序を好んで食べ、木を休息場所としても用いる。ウサギはより破壊的で、特に旱魃時には木が倒れるまで根を齧り続け、倒れた木を全て食べる。馬も幹を齧ることで木を倒すことがある[61]。
減少の他の要因として、Phanerochaete cordylines などの腐朽菌や腐生性の微生物による感染、昆虫の幼虫による葉の摂食などがある[63]。
文化
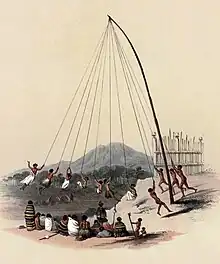
マオリ人は古くから、本種の精神的・生態的・実用的側面に関する多くの知識を保持してきた。ヨーロッパ人の移民後にこれらの知識の多くは失われたが、食用・薬用としての利用は続いており、繊維の利用はより一般的になってきている[31]。
食用
サツマイモ (kūmara) の南限は南緯43°のバンクス半島で、ここよりも南ではその代わりとして、特に本種の栽培が発達していた。自生個体・栽培個体双方が収穫されていた[20]。
茎は切断され、大人数のチームで前処理が行われて数日から数週間乾燥させられる[64][65]。根茎は大きなニンジンのような形をしているが、これも掘り返されて食用とされる。1840年代にEdward Shortlandは、マオリ人は肥沃な深い土で育った根茎を好み、花序ができる直前の春から初夏に最も甘くなるため、この時期に掘り返して食べる、と語っている[25]。南島では11月に好んでkāuruが作成される[66]。
乾燥後、茎と根茎はアースオーブンの一種(大型のハンギであるumu tī)の中で24時間以上蒸し上げられる。これは大量に含まれるフルクタンを分解して非常に甘いフルクトースとする役割がある。調理後にこれを叩いて平たくし、村に持ち帰って乾燥した状態で貯蔵する。これは甘味料として、シダの根などの食物の味付けに用いられる。糖分が結晶化して繊維の間に集まることもあるが、これは繊維を裂くことで容易に分離することができる。Kāuruを水につけてそのまま噛むこともあり、風味は廃糖蜜に似ていると言われる[25][64][65][67]。
カンタベリー地方南部とオタゴ地方北部の丘では大きなアースオーブンの跡が発見されており、ここは現在でも本種の大きな木立が見られる場所である[20]。ヨーロッパ人は本種をアルコールの原料として用い、ひどい醸造酒が造られて鯨やオットセイの漁師に賞味された[67]。
成長点は kōata と呼ばれて生食される。また、調理したものは kōuka と呼ばれる[68]。収穫時には、開いていない葉の芽を探し、周囲の固い葉を掴んで折り取る。葉を除去した中心には小さなアーティチョークに似た芯があり、苦い野菜として、蒸す・焼く・煮るなどの調理法でkōukaとして年中食された。Kōuka は、ウナギ・ハイイロミズナギドリ・ハト、現代では豚・羊・牛など脂肪の多い食材の付け合せとして賞味される。木によって苦味の度合いが異なり、強いものは薬用、弱いものは野菜と使い分けられていた[53]。
繊維
葉からは丈夫な繊維を取ることができる。この繊維は強靭で、特に海水に対する耐久性がよく、アンカーロープ・釣り糸・料理用マット・バスケット・サンダル・レギンスなどの材料に用いられた。南島の高地にはセリ科のAciphylla 属やクロウメモドキ科のDiscaria toumatou (tūmatakuru, matagouri) など棘だらけの植物が生えているが、このような製品はこの地域を旅する時にも役立っていた[69]。マオリの子供に好まれるアトラクションであった、MorereまたはMoariと呼ばれる遊びがある。これは地面に立てた棒と、そこから下げられたロープを用いるため、ロープは強靭なものである必要がある[70]。本種の繊維はマオランの繊維より強靭であり、この用途によく用いられた[6][64]。葉は雨合羽として用いられることもあったが、この目的では同属のCordyline indivisa の葉の方が望ましい[69] 。
栽培
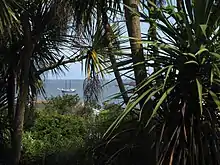
ニュージーランド産の樹木の中では最も広く栽培されているものの一つで、欧州や米国でも観賞用樹木として非常に人気が強い[72]。南部や南島内陸部の寒い地域に由来するものは北半球の環境にもよく耐えるが、北島由来のものは寒さに弱い[73]。種子から容易に育てることができ、栽培地の近くでは鳥の種子散布によって自発的に生えてくることもある。切断した芽や茎、幹を用いた挿し木も容易である。植木鉢やプランターでも育てることができる[2][25]。
イギリスはメキシコ湾流の影響を受けるため、スコットランド西岸でも全域で栽培することが可能である[74]。イングランド南部ではこれよりもよく栽培され、気候が穏やかなアイルランドでは全島で非常に一般的に見られる。ヤシとは近縁ではないが、Cornish palm・Manx palm・Torbay palmの名で販売されることもある。Torbay palmはトーベイで多く栽培されていることに因み、この地域では旅行者向けのポスターや公的なシンボルにも用いられている。他の国では、スペイン・イタリア・日本でも栽培できる[74]。また、北極からの風を防ぐ微気候とメキシコ湾流の効果により、北極圏から5°しか離れていないノルウェーのMasfjordenで栽培された記録がある[75]。
品種

北島では[76]、マオリ人が食用に育種した品種が存在する[77]。tī paraまたはtī tāwhitiと呼ばれる品種は、吸枝を伸ばして複数の多肉の根茎を形成する。この品種は矮小で開花せず、ゴム状の柔らかい茎と厚い緑色の葉を持つ[77]。マオリ由来の品種の多くは絶滅したが、この品種は19世紀にThomas Kirkにより収集され、小型であることから、Cordyline 'Kirkii'の名で園芸家に好まれていた。だが1991年に再発見されるまでは、この品種がマオリに由来することは忘れられていた。'Tawhiti' はマオリ神話における永遠の地、ハワイキと同義である[65]。 近年のDNA解析では、北島の火山高原の個体群に由来することが示された[78]。
全世界で多くの栽培品種が販売されている[2][25]。他のセンネンボク属同様に、ピンクの縞が入るものや、葉が緑・黄・赤などの色合いを帯びるものが作出されている。初期の品種には、1870年にフランスとイングランドで公表された、葉が赤褐色を帯びるCordyline australis 'Lentiginosa'がある。中肋が真紅となる'Veitchii' (1871) 、青銅色の葉に赤い模様の入る'Atrosanguinea' (1882) 、紫の葉を持つ'Atropurpurea' (1886) や'Purpurea' (1890) などの他、'Doucetiana' (1878) ・'Argento-striata' (1888) ・'Dalleriana' (1890) などの品種がある。他のセンネンボク属との雑種も多く存在し、1925年には既にニュープリマスにおいてC. banksii との雑種が作出されている。ニュージーランドでは、いくつかの品種や雑種は在来の蛾の被害を受けやすいようである[74][79]。
未熟な個体は'Spikes'やDracaena 'Spikes'の名で観葉植物として販売されることがあるが、ドラセナ属とは全く異なる植物である[80]。また、Cordyline indivisa (syn. Dracaena indivisa) と混同されることもある[81]。
アメリカ合衆国農務省は本種の耐寒性区分を10–11としている[80]。
英国においては、本種自体に加え[82]、'Sundance'[83]・'Torbay Dazzler'[84]・'Torbay Red'[85]の品種が英国王立園芸協会のガーデン・メリット賞を受賞している。
脚注
- “BSBI List 2007” (xls). Botanical Society of Britain and Ireland. 2015年1月25日時点のオリジナルよりアーカイブ。2014年10月17日閲覧。
- “Cordyline australis”. New Zealand Plant Conservation Network. 2010年3月10日閲覧。
- Simpson, p.52
- Simpson, p.96
- “Ti Kouka”. Supporters of Tiritiri Matangi Inc. 2015年1月7日閲覧。
- “Ti Kouka”. Some Tiri Plants, continued, Department of Conservation. pp. 163–164. 2010年3月10日閲覧。
- “2. C australis (Forst. f.) Endl. Prodr. Fl. norf. 1833, 29.”. Flora of New Zealand. 2010年3月23日閲覧。
- Salmon J. T. (1973). The Native Trees of New Zealand. Wellington. AH & AW Reed. ISBN 0-589-01340-8, pp. 348-349.
- Simpson, p.76
- Simpson, p.98
- Simpson, p.41
- Simpson, p.68
- Simpson, p.71
- Simpson, p.58
- Simpson, p.69
- Simpson, pp.70–71
- Simpson, p.70
- Simpson, pp.69,71
- Simpson, p.72
- Simpson, p.66
- Simpson, p.73
- “Cordyline australis (G.Forst.) Endl.; syntype”. Museum of New Zealand Te Papa Tongarewa. 2010年3月23日閲覧。
- “Dracaena australis”. The International Plant Names Index. 2010年3月24日閲覧。
- Bok-mun Ho (2006年). “Cordyline obtecta”. Australian National Botanic Gardens. 2010年3月27日閲覧。
- A. L. Poole (1966年). “Cabbage Tree - Ti”. An Encyclopedia of New Zealand. Editor: A. H. McLintock. Originally published in 1966. 2007年7月20日閲覧。
- Forster, G. (1777). A Voyage round the World in His Britannic Majesty's Sloop Resolution, Commanded by Capt. James Cook, during the Years 1772, 3, 4, and 5. London
- Simpson, p.95
- Simpson, p.77
- Williams, H. W. (1971). A dictionary of the Maori language (7th ed.). Wellington, New Zealand: Government Printer.
- Best, Elsdon (1931). “Maori agriculture”. Journal of the Polynesian Society 40: 1–22.
- Simpson, p.143
- Simpson, pp.143–145
- Simpson, p.57
- Simpson, p.67
- “Cabbage tree/tī kōuka”. Department of Conservation Factsheet. Department of Conservation. 2010年4月9日閲覧。
- Simpson, pp.67,142
- Dawson, John (1988). Forest Vines to Snow Tussocks: The Story of New Zealand Plants. Wellington: Victoria University Press. p. 213. ISBN 0-86473-047-0
- Simpson, pp.52–53
- Simpson, pp.53–54
- Simpson, pp.54–55
- Simpson, p.89
- Simpson, p.108
- Simpson, p.109
- Simpson, p.110
- Simpson, p.112
- Simpson, p.111
- Simpson, pp.108,112
- Simpson, pp.98–100
- Simpson, pp.80–82
- Catedral, Luis Ortiz; Brunton, Dianne (2006). “Advancing the knowledge of New Zealand's Red-crowned Kakariki”. PsittaScene 18 (1): 9. オリジナルの2011年6月7日時点におけるアーカイブ。.
- Simpson, pp.82–83
- McEwen, W. M. (1978). “The food of the New Zealand pigeon (Hemiphaga novaeseelandiae)”. New Zealand Journal of Ecology 1: 99–108.
- Simpson, p.150
- Clarke, George (1903). Notes on Early Life in New Zealand. Hobart: J Walch & Sons. p. 26
- Simpson, pp.83–84
- Simpson, p.86
- Simpson, p.84
- Rees-George, J., Robertson, G. I., & Hawthorne, B.T. (1990). Sudden decline of cabbage trees (Cordyline australis) in New Zealand. New Zealand Journal of Botany, 1990, Vol. 28: 363-366.
- Simpson, p.10
- Simpson, pp.80–86
- Simpson, pp.87,267
- Simpson, p.267
- Beever, p.65
- Orwin, Joanna (1-Mar-09). “Shrubs and small trees of the forest - Cabbage trees”. Te Ara - the Encyclopedia of New Zealand. 2015年1月7日閲覧。
- Harris, Warwick (1999年). “The domestication of New Zealand plants”. New Zealand Plants and their Story: Proceedings of a conference held in Wellington, 1–3 October 1999. Wellington: Royal New Zealand Institute of Horticulture. pp. 59–69. 2010年3月15日閲覧。
- James Cowan (1930年). “The Maori: Yesterday and To-day”. New Zealand Electronic Text Centre. Originally published by Whitcombe and Tombs Limited, Christchurch. pp. 174–175. 2012年12月28日時点のオリジナルよりアーカイブ。2010年3月15日閲覧。
- Scheele, p.12
- Simpson, pp.146,150
- Scheele, p.11
- Simpson, p.160
- “Cordyline australis. Tī kōuka”. Maori Uses of Plants Database. Landcare Research Manaaki Whenua. 2010年9月19日閲覧。
- Simpson, pp.70–74
- Harris, Warwick; Beever, Ross E.; Smallfield, Bruce (2001). “Variation in response to cold damage by populations of Cordyline australis and of some other species of Cordyline (Lomandraceae)”. New Zealand Journal of Botany 39 (1): 147–159. doi:10.1080/0028825X.2001.9512723. オリジナルの2010年5月25日時点におけるアーカイブ。 2010年3月15日閲覧。.
- Ross Galbreath. “New Zealand species overseas - Plants overseas”. Te Ara - the Encyclopedia of New Zealand. 2010年3月15日閲覧。
- “Cabbage tree in Norway”. GIT Forestry Consulting. 2009年6月18日時点のオリジナルよりアーカイブ。2009年6月18日閲覧。
- Maggy Wassilieff. “Gardens — Māori gardens”. Te Ara - the Encyclopedia of New Zealand. 2010年3月27日閲覧。
- Simpson, p.145
- Scheele, pp.12–13.
- Simpson, pp.250–251
- Caring for a Dracaena Spike Indoors
- Denver Plants: Dracaena indivisa
- “RHS Plant Selector - Cordyline australis”. 2013年6月16日閲覧。
- “RHS Plant Selector - Cordyline australis 'Sundance'”. 2013年6月16日閲覧。
- “RHS Plant Selector - Cordyline australis 'Torbay Dazzler'”. 2013年6月16日閲覧。
- “RHS Plant Selector - Cordyline australis ”. 2013年6月16日閲覧。
参考文献
- Beever, R. E.; Forster, R. E.; Rees-George, J.; Robertson, G. I.; Wood, G.A.; Winks, C.J. (1996). “Sudden Decline of the Cabbage Tree (Cordyline australis): Search For The Cause”. New Zealand Journal of Ecology 20: 53–68.
- Scheele, S. (2007). The 2006 Banks Memorial Lecture: Cultural uses of New Zealand native plants. New Zealand Garden Journal 1:10–16. Retrieved 2010-04-04.
- Simpson, Philip (November 2000). Dancing Leaves: The story of New Zealand's cabbage tree, ti kouka. Christchurch: Canterbury University Press / Department of Conservation (New Zealand). pp. 324 (560 colour illustrations). ISBN 0-908812-76-0
さらに知るための資料
- Arkins, A. (2003). The Cabbage Tree. Auckland. Reed Publishing.
- Harris, W. (2001). Horticultural and conservation significance of the genetic variation of cabbage trees (Cordyline spp.). In: Oates, M. R. ed. New Zealand plants and their story: proceedings of a conference held in Wellington 1–3 October 1999. Lincoln, Royal New Zealand Institute of Horticulture. pp. 87–91.
- Harris, W. (2002). The cabbage tree. Journal of the Royal New Zealand Institute of Horticulture, 5, 3–9.
- Harris, W. (2003). Genotypic variation of height growth and trunk diameter of Cordyline australis (Lomandraceae) grown at three locations in New Zealand. New Zealand Journal of Botany, 41, 637–652.
- Harris, W. (2004). Genotypic variation of dead leaf retention by Cordyline australis (Lomandraceae) populations and influence on trunk surface. New Zealand Journal of Botany, 42, 833–844.