ピット器官
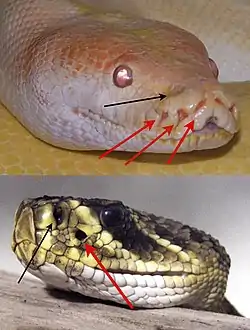
ピット器官(ピットきかん、英語: pit organ)は、マムシ亜科、ニシキヘビ科、ボア科のヘビ(爬虫綱有鱗目ヘビ亜目)が持つ赤外線受容器官[1][2]。英語そのままにピット・オルガン、単純にピットとも呼ばれる[3]。ヘビの顔面に開口した小孔として存在し、マムシ亜科が持つ眼と鼻孔の間の頬部に一対存在するものを頬窩(きょうか:loreal pit)、ニシキヘビ科とボア科が持つ口唇に沿って複数並ぶものを口唇窩(こうしんか:labial pit)と呼ぶ[2]。数メートルはなれた位置にいる温度差のある物体を「視る」ことができ、少なくとも0.003℃の温度差を感知できる[4]。赤外線領域の電磁波に対する感覚として可視光領域の電磁波に対する視覚と同様に働き、眼球と合わせて総合的な視覚をヘビにもたらしている[2][5]。
研究史
マムシ亜科ヘビがほとんど分布していない土地からきたヨーロッパ移民にとっては、アメリカ大陸のマムシ亜科毒蛇の顔面に存在するピット器官(頬窩)は特徴的なものだった[3]。英語 (pit viper)をはじめとして、フランス語 (vipères à fosse)、スペイン語 (víboras de foseta)、ポルトガル語 (cobra-covinha) などのヨーロッパ言語におけるマムシ亜科ヘビの呼称には「穴」「窪み」を指す語が含まれている。
ピット器官が科学界に登場するのは1683年にエドワード・タイソン (Edward Tyson) がロンドンの王立協会でガラガラヘビの解剖学について報告したときであると言われている。彼はピット器官の解剖学的特徴について述べ、これをなんらかの感覚器ではないかと(その点では)正しく推測したが、残念ながら聴覚器と考えた[6]。その後もこの他に似た例のない器官について、「余分な鼻孔」「角膜洗浄用の分泌腺」「嗅覚器」「魚類の側線のようなもの」「第六感」など様々な説が飛び交った。
1930年代になって、ピット器官が熱を感じていることがわかり始めた。ピット器官と赤外線放射との関連性について初めて注目されたのは1935年のことで、M. Ros によってアフリカニシキヘビの口唇窩を塞いだ場合に温物体への誘引行動が変化することが報告された。数年後、頬窩についても口唇窩についても同様に熱放射に対する感知器官であり、かなり小さな温度差をも感知することがNoble and Schmidt (1937) によって明らかになった[7]。
1950年代に入るとT. H. Bullock等によってピット器官に分布しているのが三叉神経の温繊維(温感を伝える神経繊維)であることが証明され、個々の神経細胞からの活動電位が記録できるようになって、その後の研究の基礎が確立された。以来現在に至るまで様々な電気生理学的・行動学的・形態学的・組織学的研究が成されている[8]。
構造
ピット器官の構造はボア科・ニシキヘビ科の口唇窩とマムシ亜科の頬窩とでかなり異なる。また、同じ口唇窩でもニシキヘビ科の物とボア科の物にも差がある。マムシ亜科のものとニシキヘビ科のものは基本的には奧に受容体が広がった空隙の入り口が狭まった小孔となっており、レンズを持たないピンホールカメラと同様の構造を持っている[2]。
口唇窩の構造
 |
 | |
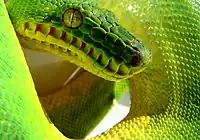
ボア科の口唇窩。鱗と鱗の間に開口している(エメラルドツリーボア) |
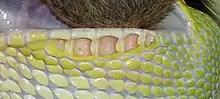
ニシキヘビ科の口唇窩。個々の鱗(下唇板)の中央に開口している(ミドリニシキヘビ) |
ヘビの頭部の鱗で口吻周りの鱗について、上顎先端にある鱗を吻端板 (rostal scale)、上顎縁に沿ってある鱗を上唇板 (superlabial scale)、下顎縁に沿う鱗を下唇板 (infralabial scale) と呼ぶ(「ヘビの鱗」を参照)。ボア科の口唇窩がニシキヘビ科の物と異なる点は、ボア科の口唇窩は鱗と鱗の間に開口しているのに対し、ニシキヘビ科の口唇窩は鱗の中に開いているという点である。
ボア科には口唇窩を持つものと持たないものが存在するが、口唇窩を持たないものでも試験された全てのボア科ヘビは赤外線を感じることができた[9]。口唇窩を持たずに赤外線感覚をもつボア科では、隣接する2枚の上唇板(下顎ならば下唇板)のうち、前方にある鱗の後端と後方にある鱗の前端に赤外線受容体が分布している。口唇窩を持つボア科では前後の鱗の間が陥入することでピット器官が形成されるが、その場合でも陥入部の底部には赤外線受容体は分布せず、受容体はあくまで前方鱗の後端と後方鱗の前端である。陥入部が比較的広がっているツリーボア属 (Corallus) などでは、そのことにより他のボア科よりも方向感覚が良い可能性がある。
ニシキヘビ科の口唇窩は、吻端板、上唇板、下唇板のおおよその中央部に開いた空隙であり、その底部に赤外線受容体が広がっている。この赤外線受容器は pit fundus(仮訳:ピット底[† 1])とよばれ、後述のピット膜と同様に網膜の機能を果たす。ピット底の奧には毛細血管網が位置する[7]。
頬窩の構造
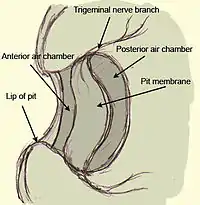
マムシ亜科の頬窩は、ボアやニシキヘビの口唇窩と比べてかなり複雑な構造をもつ。空孔の外側の空間と内側の空間が薄い膜で隔てられており、外側の空間は外腔(外室:outer chamber, outer cavity)、内側の空間は内腔(内室:inner chamber, inner cavity)、二つの空間を隔てて網膜の働きをする薄膜はピット膜 (pit membrane) と呼ばれる[† 1]。外腔は空孔径より少し狭まったピット器官開口部に向いて外気に接しており、内腔もポアー(pore:小穴)と呼ばれる細い管が眼とピット器官の間に通じている。ポアーは耳におけるエウスタキオ管と同様にピット膜内外の気圧を等しくする働きがある[10]。ピット膜の外腔側には赤外線受容体が並び、内腔側には発達した毛細血管網がある。これら2層を合わせてもピット膜の厚さは15μm ほどで、この厚さはマムシ類の楕円形をした赤血球の長径よりも小さい。この薄さとピット孔壁から離れて懸架されている配置のため、ピット膜の熱容量は小さくなっており感度の増大に寄与している[8][9]。
胚の段階では頬窩のある位置には2つの窪みが前後に並んでおり、発生に従って後方の窪みが前方の窪みの内側に潜り込むように成長し、前方の窪みが外腔へ、後方の窪みが内腔へと変化する。2つの窪みの間にあった壁が非常に薄くなってピット膜となり、前方の窪みの陥入孔がピット器官開口部に、後方の窪みの陥入孔も細く残存してポアーとなる[8]。
神経系
ピット器官に分布している神経は三叉神経由来であり、他の動物の温熱情報が視床を経由して大脳皮質の体性感覚野に向かうのに対し、ピットからの情報は三叉神経節を通って延髄を経由し視蓋(上丘)へ向かう[8]。頬窩のピット膜は三叉神経の第一支(眼神経)と第二支(上顎神経)の支配を受ける。口唇窩については、Goris (2011)では同じく第一支・第二支のみとしているが、寺嶋 (1989) や Molenaar (1992)[11] では第三支(下顎神経)も含めた3支全てが関係するとしている。
末梢神経
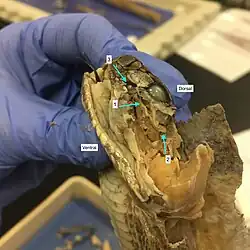
1. ピット器官(頬窩)に向かう三叉神経束
2. 脳の三叉神経起始部
3. ピット器官(頬窩)
ピット器官に入った自由神経終末は細かく枝分かれし、シュワン細胞周りに絡みついた状態でミトコンドリアと一緒に詰め込まれた原繊維の塊を形成する。この塊は終末神経塊[† 2] (terminal nerve mass:TNM) と名付けられ、これが個々の赤外線受容体となる。すなわち、視覚における桿体や錐体、聴覚における有毛細胞のような物理的情報を活動電位に変換する専門の感覚細胞は存在せず、神経末端がそのまま受容体となっている[8]。これがピット膜やピット底の表面に数千個集まって赤外線の像を受け取る[7]。受容体の構造は、ピット膜のものとピット底のものに基本的な差異は無い[9]。
通常の感覚ならば適切な刺激が無い場合は沈黙し、適切な刺激が入ったときに発火する(信号を発する)。しかし全ての物体は常に赤外線を放射しているので、赤外線神経は常に継続的に発火し続ける。背景よりも高い温度による刺激に対しては発火頻度が増加することによって反応する。発火頻度は刺激となる赤外線の波長によっても変化し、応答は波長 8000〜12000 nm で最も強くなる。これは鳥類や哺乳類など恒温動物の体表から放射される赤外線波長と一致する[7](ヒトの場合だと波長 10000 nm あたりにエネルギー最高値が来る[8])。また、背景よりも低温の物体が視野にいた場合は発火頻度は減少する。このことにより、少なくともマムシ亜科は冷たい背景に対して移動する暖かい物体と同様に暖かい背景に対して移動する冷たい物体も感知可能であることが確かめられている[7]。
中枢神経
ピット膜やピット底や口唇赤外線受容体で発生した活動電位は三叉神経節を経由して延髄に入る。赤外線感知能力を持つヘビには延髄中に外側下行路核 (nucleus descendens lateralis) と呼ばれる処理中枢があり、赤外線受容器からの情報はここで最初の情報処理を受ける。外側下行路核は1974年に Molenaar によって発見され、三叉神経の下行路核の外側にあるため名付けられたもので、他のどのグループのヘビにも存在しない構造である[8]。外側下行路核で処理を受けた後の情報は口唇窩(ボア科・ニシキヘビ科)と頬窩(マムシ亜科)では少し異なる経路を取る。
眼球からの可視光情報は視神経交叉によって脳の対側(左右反対側)の視蓋に入るが[† 3]、ピットからの赤外線情報も延髄の同側(左右同じ側)で処理された後、対側の視蓋に入る。口唇窩の場合は外側下行路核の後すぐに対側の視蓋へ向かうが、頬窩の場合は外側下行路核の処理後、延髄の同側にあるもう一つの中継神経核を経由する。これは熱核 (nucleus reticularis caloris) と呼ばれ、延髄網様体の中の腹外側部に存在し、外側下行路核からの出力を全て受ける。同側の熱核での処理を受けてあらためて対側の視蓋へと送られる。熱核はボア科・ニシキヘビ科にも存在しない構造であり、マムシ類の頬窩がボアやニシキヘビの口唇窩よりも高解像度の画像を生成する証拠であると考えられている。
電気生理学的実験によって眼の視野とピット器官の視野が重なっていることが確かめられている。この2つの視野を視蓋表面にマッピングすると、同側の眼とピット器官の視野はどちらも対側の視蓋の同じ場所に記録される。ただしおそらくは解像度の関係で、記録される領域は赤外線のほうが可視光よりも粗いものとなる。視蓋からの赤外線/視覚情報は視床の円形核へ進み、さらに終脳の前背側脳室隆起へ向かう。円形核からの情報の一部は対側の円形核に移動する。鳥類における研究で円形核は、色彩・形状・移動・視野への登場、を処理していることが判明しており、ヘビにおいても同様であると推測される[7]。
機能
中枢神経系内でのピット情報の取り扱いで理解できるように、ピットは視覚とは別の感覚と言うよりは視覚の一部(または視覚の拡張)として機能している。脊椎動物は網膜に数種類の錐体視細胞を持ち、それぞれの錐体は異なる視物質を含んで特定の波長域の電磁波(光)を感じる。その特定波長の光を「光の原色」として、各錐体からの刺激が様々に組み合わさることにより動物は色覚を得ている。ピットは眼から検出された3原色にさらに赤外線波長域の「原色」を加えることによって広帯域画像を構築することを可能としている[2][7]。
立体視
ピットは左右にあるため、両眼と同様に視野の重なる部分では立体視が可能で対象までの距離も認識可能であると考えられている。一般的にヘビの両眼は側方を向いていることが多いが、そういった種でも頬窩は前方を向いていることが多く、そのような場合眼球よりも立体的視野をもたらすことが可能である[9]。これも眼と同様、動くものには敏感だが対象が急停止すると一瞬見失うこともあると言われている。ただしその場合も頭を左右に振って立体視を行い対象を再確認する[5]。
解像度
視蓋に記録される赤外線領域と可視光領域の比較により、ピット器官の解像度は眼と比べて低いと考えられている。これは眼球の光受容体(視細胞)数が数百万個であるのに対してピットの赤外線受容体数は数千個であること、眼球にはレンズ(水晶体)があり焦点を結ぶことができるのに対しピットにはピンホールの役割を持つ穴しかないことからも裏付けられる[7]。さらにピンホールカメラの構造をもつとはいえ、ピットの開口部は比較的大きいので受容面上に明確な像を映し出すことはできない。しかしマムシ亜科やニシキヘビ科ではピット開口部は必ず受容領域よりも小さく、また開口部形状も円形・三角形・四角形・スリット型など様々である。受容領域は同時に全領域が照らし出されることはなく、常に複雑な明暗パターンが受容領域上に描かれることになる[10]。この明暗パターンが視野内の物体移動やヘビ自身の移動に伴って受容領域上を移動し、ヘビはそれを知覚することができる[5]。少なくとも赤外線の照射方向の感知はかなり正確で、ガラガラヘビで調べられた方向感覚の誤差は 5° 以内であった[8]。
感度調節
眼球においては瞳孔の拡大と収縮により入射光量を変化させ感度を調節しているが、ピット膜やピット底においては同様な感度調節機構が存在している。それがピット膜やピット底の受容器層の裏側に存在する毛細血管網である。これら毛細血管の第一の役割はもちろん赤外線受容体への酸素/エネルギー供給であるが、これには受容体を反応させた温度変化を除去する役目もあると考えられている[10]。ピット膜は0.003℃(ことによると0.001℃)の温度変化に反応できることが多くの研究によって確認されている。しかし例えば、赤外線入射によって温度が上昇し発火頻度が増した受容体が、入射が無くなっても温度が高いままだといわば「残像」が残ったままとなってしまう。よって入射が無くなれば速やかに背景と同レベルまで冷却する必要があり、これが背景と同温の血液が流れている毛細血管による温度の平衡化によって行われる。これは低温の物体を視て発火頻度が減少した受容体についても同じ事である。蛍光マイクロビーズを血流中に入れ高速動画撮影を行った実験においても、ピット膜の一部を赤外線レーザーで照射すると、その部分を血流に乗って流れるマイクロビーズの速度が照射していない部分に比べて増加することが確かめられている。血液の流速調整は毛細血管を取り囲む周皮細胞の収縮と弛緩によって行われているのではないかと推測されている[7]。
起源
頬窩、ニシキヘビの口唇窩、ボアの口唇窩の形態は頬窩の方がより精巧であり[2]、ニシキヘビの口唇窩とボアの口唇窩の形態にも差異がある。その精巧さに伴って熱線刺激の検出感度は、頬窩、ニシキヘビの口唇窩、ボアの口唇窩の順に優れている。既に述べた構造上の違い、神経系における大きな差、他にも頬窩の受容体が真皮に存在するのに対し口唇窩の受容体は表皮に存在するので脱皮のたびに脱落して新しいものに更新される[7]などの点から、頬窩と口唇窩は各々独立に発達してきたと考えられている[8]。ピット器官をもっているヘビにとっては恒温動物の体はいわば「光って」見えるため、獲物を探すのにも敵を避けるのにも非常に都合が良く[1][5][13]そのために進化してきたとされているが、最近の研究ではさらに変温動物であるヘビ自身の体温調節のためにも役立っていることが示唆されている[14]。
他の動物の可視光外波長視覚
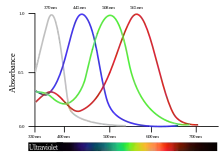
他の動物でもヒトの可視光外の波長を視ることができるものがいるが、そのほとんどが紫外線視覚である。紫外線を視ることでよく知られているのは昆虫で、その研究は19世紀末のジョン・ラボックがアリに紫外線を照射した実験に端を発し、その後20世紀に入ってカール・フォン・フリッシュのミツバチ色覚研究へと続くことになる[15]。これは天敵である鳥類が認識できない波長を視ることで昆虫は優位を得ていると考えられていたが、実際にはここ数十年の研究を経て、鳥類、トカゲ類、カメ類、多くの魚類が紫外線視覚を持つことがわかってきた[16]。これらの脊椎動物の紫外線視覚は彼らの網膜に紫外線波長に対応した視物質をもつ錐体視細胞が存在することによって達成されている[† 4]。すなわち紫外線を視る能力は我々が可視光の特定の波長を視る能力と同様の機構により獲得されている。しかし赤外線については、第1点:少なくとも現在まで発見されている中で、赤外線に対応する視物質が存在しないこと[7]、第2点:水は赤外線をほぼ通さないので[† 5]、レンズ(水晶体)はもちろん角膜や硝子体も赤外線に対してほぼ完全に不透明であること[3]、以上2点により眼球の網膜内の感知機構として組み込むことはできない。よって赤外線感知能力を得るためには眼球以外の別の器官を発達させる必要があり、紫外線視覚をもつ動物が多数いるのに対し、赤外線感知能力をもつ動物は少ない。脊椎動物ではピット器官を持つヘビ以外にはチスイコウモリが鼻先に赤外線受容器を持つことが報告されている[8][9][19]。
脚注
注釈
- 和文用語の”内腔/外腔”はゴリス(1989)、”内室/外室”は疋田(2002)での用例。英文の用例はそれぞれの訳語に対応しているわけではない。”ポアー”はゴリス(1989)での用例。”ピット膜”はゴリス(1989)、疋田(2002)、寺嶋(1989)など複数の日本語文献で用いられていて定訳と考えられるが、口唇窩におけるpit fundusについては日本語の定訳をみつけられず暫定的に”ピット底”としてある。適切な日本語用例が見つかれば出典を伴って置き換えられるべきものである。
- ”終末神経塊”・”外側下行路核”・”熱核”の和文用語は寺嶋 (1989) における用例
- ヒトを含む哺乳類では網膜が受け取った情報が左半分・右半分に分かれ、各網膜の片側の情報はどちらも同側の脳に向かうという不完全交叉であるが[12]、ヘビの場合は一つの網膜が受け取った情報は全て対側の視蓋へと向かう完全交叉であり、ピット器官からの情報も同様に全て対側の視蓋へ向かう[7]。
- これはそれらの動物が特殊化しているのではなく、逆にヒトを含む現生哺乳類が紫外線感知能力を失う方向に特殊化したのであることがわかっている。脊椎動物の共通祖先は紫外線に対応した視物質を含む4種類の視物質を持っていた。我々の祖先が哺乳類に進化する際、おそらくは夜行性化への過程で2種の視物質を失い、結果紫外線領域は哺乳類にとって可視光範囲外となったと考えられている[17]。
- 可視光域での水中の透過距離は約10m(海水)になるが、ピット器官が最も高感度になる帯域(8000〜12000nm)を含む中赤外線領域では透過距離は0.1mm 以下となる[4][18]。
出典
- 『脊椎動物のからだ』 p411
- 『爬虫類の進化』 p98
- 『日本の両生類と爬虫類』 p66
- 重中圭太郎:編、2003、「環境の赤外線Q&A」、『日本赤外線学会誌』13巻1号、日本赤外線学会、ISSN 0916-7900 pp. 79-95
- 『日本の両生類と爬虫類』 p68
- TYSON, E. 1683. “Vipera Caudi-sona Americana, or the anatomy of a rattle-snake, dissected at the repository of the Royal Society in January 1682”. Philosophical Transactions of the Royal Society of London 13 :25–46.
- Goris, Richard C. (2011). “Infrared Organs of Snakes: An Integral Part of Vision”. Journal of Herpetology (The Society for the Study of Amphibians and Reptiles) 45 (1): 2-14. doi:10.1670/10-238.1 2023年9月15日閲覧。.
- 寺嶋真一、1989、「赤外線感覚系の研究」、『日本生理学雑誌』51巻2号、日本生理学会、ISSN 0031-9341 pp. 65-73
- Goris, Richard C. (1988). “INFRARED “VISION” IN SNAKES”. Animal Eye Research (Japanese Society of Comparative and Veterinary Ophthalmology) 7 (1・2): 1-6. doi:10.11254/jscvo.7.1 2023年12月25日閲覧。.
- 『日本の両生類と爬虫類』 p67
- Molenaar, G. J. (1992). “Anatomy and physiology of infrared sensitivity of snakes”. In Gans, C,. Biology of the Reptilia. University of Chicago Press. pp. 368-453. ISBN 9780226281193
- 『脊椎動物のからだ』 p427
- 『爬虫類の進化』 p99
- Krochmal, Aaron R.; George S. Bakken; Travis J. LaDuc (15 November 2004). “Heat in evolution's kitchen: evolutionary perspectives on the functions and origin of the facial pit of pitvipers (Viperidae: Crotalinae)”. Journal of Experimental Biology 207 (Pt 24): 4231–4238. doi:10.1242/jeb.01278. PMID 15531644.
- 『鳥のサイエンス』 p31
- 『鳥のサイエンス』 p32
- 『鳥のサイエンス』 p34
- 市川眞人・西岡明久、1988、「中,遠赤外放射に対する水の吸収率と浸透深さの分光特性」、『照明学会誌』72巻2号、照明学会、ISSN 0019-2341 pp. 102-108
- 『日本の両生類と爬虫類』 p69
- A.S.ローマー, T.S.パーソンズ 『脊椎動物のからだ その比較解剖学』 1983 ISBN 4-588-76801-8
- 疋田努 『爬虫類の進化』 東京大学出版会 2002 ISBN 4-13-060179-2
- リチャード・ゴリス、1989、「ピット ー マムシの第2の目」、疋田努・その他『日本の両生類と爬虫類』、大阪市立自然史博物館 pp. 66-69
- T. H. ゴールドスミス、日経サイエンス編集部(編)、2018、「鳥たちが見る色あざやかな世界」、『鳥のサイエンス 知られざる生態の謎を解く』、日経サイエンス ISBN 978-4-532-51227-9 pp. 30-38