フランキア属
フランキア属(-ぞく、Frankia)は放線菌に分類される細菌の一属。窒素固定を行う能力を持ち、アクチノリザル植物と呼ばれるグループの被子植物と共生を行う。フランキアは、アクチノリザル植物の根に形成される根粒というコブ状の器官に共生する。根粒中でフランキアは窒素固定反応により窒素分子(N2)をアンモニア(NH3)に還元し、宿主植物に供給する。この性質によりアクチノリザル植物は窒素養分に乏しい土地でも旺盛に生育することから、植生回復のパイオニア植物としての役割を担う。また、荒廃地の緑化や森林再生のために植林されることもある。
| フランキア属 | ||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
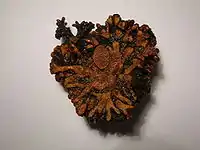 ハンノキの根粒断面 | ||||||||||||||||||
| 分類 | ||||||||||||||||||
| ||||||||||||||||||
| 学名 | ||||||||||||||||||
| Frankia Brunchorst 1886 | ||||||||||||||||||
| タイプ種 | ||||||||||||||||||
| フランキア・アルニ Frankia alni (Woronin 1866) Von Tubeuf 1895 (IJSEMリストに記載 1980) | ||||||||||||||||||
| シノニム | ||||||||||||||||||
| ||||||||||||||||||
| 下位分類(種)[1] | ||||||||||||||||||
|
研究の歴史
1800年代終わりまでに、根粒が形成されたAlnus glutinosa(セイヨウヤマハンノキ)は大気中の窒素を利用して生育できること、根粒細胞内には菌糸が含まれることなどが知られていた。当時は共生菌の素性は明らかでなく、カビや粘菌ではないかと考えられていた。その後50年程のあいだ詳細な顕微鏡観察がなされ、根粒内の共生菌は放線菌(バクテリア)だとわかった。根粒からの共生菌の単離培養は長らく成功しなかったことから、絶対共生菌ではないかと考えられていた。共生菌の単離培養の試みは続けられ、1959年にPommerがAlnus glutinosaから共生菌を単離培養したという論文を発表したが[2]、彼は培養菌体を失ってしまった。しかし、ついに1978年にTorreyらのグループがヤマモモ科のComptonia peregrinaから共生菌の単離培養に成功した[3]。一般的にはこれがフランキアの単離培養の最初の成功例とみなされている。彼らはこの株をCpI1と名付けたが、これはComptonia peregrina Isolate No. 1の略である。フランキアの単離培養が困難を極めた理由は、生育が非常に遅いため根粒表面が十分に殺菌処理されなければ雑菌が優先的に増殖してしまうこと、生育に適切な組成の培地の確立が困難だったことがあげられる。この成功以降さまざまな宿主樹木から数百種の株が単離培養され、形態学・生化学・生理学・遺伝学的な側面から研究がなされるようになった。しかしながら、バラ科やダティスカ科、ドクウツギ科、クロウメモドキ科のCeanothus属の植物と共生するフランキアの単離培養は現在でも成功していない。
分類
フランキアは放線菌門に属する高GC含量のグラム陽性細菌である。Frankiaという属名は、非マメ科植物の根粒中に見出された共生菌に対して、1886年Brunchorstにより提唱された[4]。この属名は、彼の師であるスイスの微生物学者A. B. Frankに由来する。その後、Beckingが1970年にFrankiaceae科の代表属として記載したことをきっかけに、Frankiaの属名は広く定着した[5]。同時に彼は根粒破砕液を用いた接種試験により決定した宿主範囲にもとづいて、Frankia属のメンバーとして10の種を提案した。しかし、現在ではFrankia alni以外の種名はほとんど用いられることはない。再接種しても単離元の植物を含むどの植物とも共生しないケースや、単離元以外の植物としか共生しないケース、例外的な宿主範囲を示すケース等があり、宿主範囲による種の命名が混乱を招くことがその理由だ。このため「Frankia sp. 株名」 の形式で記載されることがほとんどだ。これまで株名のつけ方の規則がいくつか提唱されたが、広く定着したものはない。単離元の植物の種名や属名、単離地などの頭文字や単離された順番を適当に組み合わせることにより、単離者が任意に命名していることが多い。ただし、上記の理由で株名が宿主植物に対応しないケースがあることは注意する必要がある(例えば、PtI株はPurshinia tridentateから単離されたが、この植物を含めテストしたどの植物とも共生しなかった)。
Frankia属はFrankiaceae科に含まれる唯一の属であり、16S rRNA遺伝子の系統解析ではセルロース分解細菌Acidothermus属と最も近縁だ。Acidothermusの生息場所はフランキアとはまったく異なり、イエローストーン国立公園で単離され、高温(55℃)・酸性条件下(pH5.2)が最適な培養条件だ。しかし、両者はホパノイド脂質を多く含む、セルロースを分解する(一部のフランキア)という共通点を持つ。
形態
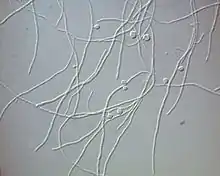
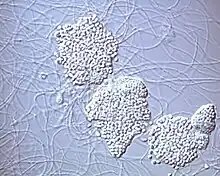
菌糸、ベシクル、胞子(胞子のう)の3つのタイプの細胞に分化する。通常は、一般的な放線菌と同様に菌糸として生育する。細胞間には細胞壁(隔壁)が存在し、多細胞性の菌糸である。培地中の窒素源が欠乏すると、ベシクルと呼ばれる球状の細胞を分化させ、そこで窒素固定反応を行う。ベシクルを分化させて窒素固定を行う生物は、フランキアしか見つかっていない。根粒内では、ほとんどのフランキアの細胞はベシクルに分化している。ただし、モクマオウの根粒は例外で、ベシクルへの分化がまったく見られない。窒素やリンが欠乏すると、胞子(胞子のう)を形成する。胞子の発芽率は株により大きく異なる。DNAを含まない胞子が形成されることもある。
酸素問題に対する対応
窒素固定酵素は酸素により容易に失活するという性質を持つため、好気環境に生育する窒素固定生物はその問題を回避することを余儀なくされる。フランキアは次のような酸素防御策をとる[6]。
ベシクル
ベシクルは窒素固定の場となる細胞である。このことは次の3つの証拠にもとづいて結論された ― 細胞を窒素固定能が誘導される条件に置くとベシクルが形成される、精製したベシクル画分で窒素固定活性がみられた、抗体を用いた実験において窒素固定酵素がベシクル内で検出された。ベシクルはホパノイド脂質(bacteriohopantetrolおよびそのフェニル酢酸誘導体)からなる多重膜で覆われており、これが細胞内への酸素の侵入を制限すると考えられている。機能的に類似した細胞として、窒素固定シアノバクテリアのヘテロシストがあるが、ヘテロシストの膜成分は糖脂質である。ベシクル膜の厚さは均一なことから、これらはホパノイド脂質の結晶からなると考えられている。位相差顕微鏡ではベシクルは明るい光の暈(かさ、ハロー)として観察されるが、これはベシクル膜が光を複屈折させるためだと考えられる。ベシクルは脂質に親和性の高いナイルレッドにより特異的に染色することもできる。ベシクル内部は隔壁(septum)により仕切られている。すなわちベシクルは多細胞からなっている。ベシクルと菌糸との間にはstalk cellと呼ばれる棒状の細胞が存在する。stalk cellは通常の菌糸とは異なり、ホパノイド脂質の多重膜を持つ。この膜はベシクルのものより厚い。ベシクルとstalk cellの内部には繊維状の構造物の束が観察され、ベシクルの分化と発達に何らかの関連を持つと予想されている。
ベシクル膜がガスの拡散を制限するという仮説は、次のような実験により支持されている。Murryら[7]はベシクルを含む培養液と含まない(アンモニア存在下で培養した)培養液とを用いて、さまざまな酸素濃度下で呼吸活性を測定した。その結果、飽和レベルの呼吸活性を与えるために必要な酸素濃度は、ベシクルを含む培養液のほうが高かった。つまり、ベシクル膜は酸素の拡散を阻害するため、細胞内の呼吸鎖に十分な酸素を供給するためにはより高い濃度の細胞外酸素が必要だと解釈された。
フランキアを0.3 kPa以下という非常に低い酸素分圧(大気圧での酸素分圧は20 kPa)で培養すると、ベシクルを形成することなく窒素固定を行う。また、最高の窒素固定活性を与える酸素分圧は、フランキアを培養した酸素分圧によって変化する。20 kPaの酸素分圧で培養したフランキアは20 kPaで最高の窒素固定活性を示し、5 kPaの場合は5 kPaで最高値を示すという具合である。その際、ベシクル膜は酸素分圧が高いほど厚くなる。これらの結果は、窒素固定に最適なベシクル膜の厚さは酸素分圧により異なることを示唆する。すなわち、フランキアを培養時より低い酸素分圧に移す場合、既に作られているベシクル膜では厚すぎて呼吸に必要な酸素を十分獲得することができず、逆にフランキアを培養時より高い酸素分圧に移す場合は、ベシクル膜が薄すぎて酸素による窒素固定酵素の阻害が起こってしまう。
マメ科植物の根粒では、皮層細胞によるバリアとレグヘモグロビンによる除去により感染細胞の酸素濃度は極めて低く保たれている。対照的に、アクチノリザル植物の根粒は通気性が高く、レグヘモグロビンも持たないため、感染細胞での酸素濃度は比較的高い。フランキアはベシクルを形成することにより自分自身で酸素防御を行うため、このような好気状態でも窒素固定を行える。
根粒中でのベシクルの形態は宿主植物により大きく異なる。同じフランキア株を異なる宿主植物に感染させた実験から、ベシクルの形態は植物により制御されていることがわかった。ハンノキ(Alnus)属やグミ科(Elaeagnaceae)、一部のクロウメモドキ科の植物のベシクルはハンノキタイプと呼ばれ、free-living時に形成されるベシクルとよく似た形態を示す。すなわち、球状であり、隔壁に仕切られた多細胞で、stalkを持っている。繊維状の構造体も観察される。ベシクルの直径は4~5 μmであり、free-living時のサイズ(約2.5 μm)と比べて大きい。Alnus serrulataの場合、ベシクル膜の厚さは約65 nmで、14のホパノイド脂質層が積み重なっていた。一方Elaeagnus umbellataの場合はより薄く、39 nmの厚さで9のホパノイド層からなっていた。
セアノサスタイプのベシクルは、セアノサス属(Ceanothus)やバラ科の植物で観察され、洋ナシ型(楕円型)であり、隔壁もstalk cellも繊維状の構造体も持たない。直径もハンノキタイプより小さめである(2~4 μm)。Ceanothus americanusの観察例では、ベシクル膜の厚さは43 nmであり、8のホパノイド層からなっていた。
ヤマモモタイプのベシクルは、ヤマモモ属(Myrica)やコンプトニア属(Comptonia)の植物で観察され、こん棒型(先端ほど太い)の特徴的な形状を示す。隔壁はもつがstalk cellは持たない。ハンノキタイプのものとは若干異なるが、繊維上の構造物も観察される。Myrica ceriferaの観察例では、ベシクル膜の厚さは64 nmであり6のホパノイド層を含んでいた。
ダティスカ/ドクウツギタイプのベシクルは、隔壁を持たない単細胞で、幅が菌糸とほぼ同じ約1 μmの棒状の形状を示す。長さは3~4 μmである。ベシクルは植物のミトコンドリアに取り囲まれており、これは酸素分圧を低下させる効果があると考えられている。
他の植物とは異なり、モクマオウ属(Casuarina)とAllocasuarina属の根粒ではベシクルは観察されない。すなわち窒素固定は菌糸で行われる。窒素固定を行う菌糸は通常のものと異なり隔壁を持たない。植物の感染細胞の細胞壁はリグニン化しており、フロログルシノールにより染色される。リグニン化した細胞壁は酸素のバリアとしての機能を持つと考えられている。
根粒の構造
宿主植物もいくつかの酸素防御機構を持つ。すなわち根粒全体として見た場合、酸素防御は植物側の機構とフランキア側の機構(ベシクル形成)が協調することにより成し遂げられているが、それらの貢献度のバランスは植物種により異なる。また、植物側の酸素防御機構は種によって異なる。
ハンノキ属の根粒は皮目(通気組織、lenticel)が多く、それらから通じたエアスペースが根粒内に網の目のように広がっている。しかし、エアスペースから隔離された感染細胞群も存在する。感染細胞中ではベシクルがよく発達しており、フランキア自身が積極的に酸素防御を行っている。加えて、呼吸活性を高めることで酸素濃度を低めている。
モクマオウ属の根粒は先端から根が伸びており(根粒根)、そこから大気を取り込み、根粒中のエアスペースへ送り込む。しかし感染細胞周辺にはエアスペースはほとんどみられない。加えて感染細胞の細胞壁はリグニン化しており酸素の透過性は低い。さらに感染細胞にはヘモグロビンタンパク質が発現しており、遊離酸素の濃度を低下させる。このようにモクマオウは植物側の酸素防御機構が充実している。よって根粒中でのフランキアはベシクルを形成しないにもかかわらず窒素固定を行える。
ヤマモモ属の根粒は、根粒根とそれに通じるエアスペースの配置、感染細胞の細胞壁のリグニン化についてはモクマオウと類似している。しかし、感染細胞中のフランキアばベシクルを形成する。すなわち、ヤマモモの根粒はハンノキとモクマオウの中間的な様相を呈する。
ドクウツギ属の根粒は皮目からつながるエアスペースを持ち、通気性が高い。それにも関わらず、ベシクルの膜はそれほど厚くない。ベシクル細胞は感染細胞の中心部に密集しており、この構造が酸素濃度の低下に貢献すると考えられている。
ダティスカ属(Datisca)の根粒は根粒根につながるエアスペースを持ち、通気性が高い。ドクウツギ属と同様に、膜の薄いベシクルが感染細胞中央に密集した構造をとる。加えてベシクルの基部にミトコンドリアが局在しており、酸素防御に何らかの役割を持つと考えられている。
ヘモグロビン
マメ科植物はヘモグロビン遺伝子を持つ。これが感染細胞で発現して酸素と結合することにより、細胞質内の遊離酸素濃度が低く保たれる。これはレグヘモグロビンや共生ヘモグロビンなどと呼ばれ、細胞質での濃度がmMレベルに達するほど大量に合成される。
アクチノリザル植物では、モクマオウ属とヤマモモ属の根粒はマメ科植物に匹敵する濃度のヘモグロビンを含み、これらは根粒中の酸素濃度の制御に関わると考えられる。その他のアクチノリザル植物の根粒は、少量のヘモグロビンしか含まない。
モクマオウ(C. glauca)の共生ヘモグロビン遺伝子はクローニングされており、最も研究がなされている。ヘモグロビンは感染細胞でのみ発現しており、(フランキアの菌糸ではなく)植物の細胞質に存在する。ヘモグロビン遺伝子の発現は未熟な感染細胞でもみられるが、フランキアの窒素固定遺伝子(nifH)の発現はその時期には検出されない。すなわち、ヘモグロビンの発現は窒素固定能の発現よりも早く、これはマメ科植物と同様の特徴である。ヤマモモ属のヘモグロビンについてはモクマオウほどの詳細な知見は得られていない。
マメ科植物の根粒では、レグヘモグロビン(II型ヘモグロビン)とはアミノ酸配列がやや異なるI型ヘモグロビンも少量発現している[8]。I型ヘモグロビンは、窒素固定酵素の阻害剤である一酸化窒素(NO)を除去する役割があると考えられている。ハンノキ属(Alnus firma)ではI型ヘモグロビン遺伝子が同定・単離されており、マメ科植物と同様に根粒中で高い発現を示し、NOの解毒活性をもっている[9]。
参考文献
- Euzéby JP, Parte AC.. “Genus Frankia”. List of Prokaryotic names with Standing in Nomenclature (LPSN). 2023年2月16日閲覧。
- Pommer, E. H. Uber die isolierung des endophyten aus den wurzelknollchen von Alnus glutinosa Gaertn. und uber erfolgreiche reinfektionsversuche. Ber Dtsch Bot Ges 72, 138-150 (1959)
- Callaham, D., Deltredici, P. and Torrey, J. G. Isolation and cultivation in vitro of the actinomycete causing root nodulation in Comptonia. Science 199, 899-902, (1978)
- Brunchorst, J. Uber einige wurzelanschwellungen, besonders diejenigen von Alnus und den Elaeagnaceen. Untersuch Bot Instit Tubingen 2, 1 50-177 (1886-1888)
- Becking, J. H. Frankiaceae fam. Nov. (Actinomycetales) with one new combination and six new species of the geneus Frankia Brunchorst 1886. Int J System Bacteriol 20, 201-220 (1970)
- Silvester, W. B., Berg, R. H., Schwintzer, C. R. and Tjepkema, J. D. Oxygen responses, hemoglobin, and the structure and function of vesicles. In: Pawlowski, K. and Newton, W. E. (eds) Nitrogen-fixing Actinorhizal Symbioses. Springer, Dordrecht, Netherlands, pp 105-146
- Murry, M. A., Fontaine, M. S. , Tjepkema, J. D. Oxygen protection of nitrogenase in Frankia sp. HFPArI3. Arch Microbiol 139, 162-166 (1984)
- Shimoda, Y., Shimoda-Sasakura, F., Kucho, K., Kanamori, N., Nagata, M., Suzuki, A., Abe, M., Higashi, S. and Uchiumi T. Overexpression of class 1 plant hemoglobin genes enhances symbiotic nitrogen fixation activity between Mesorhizobium loti and Lotus japonicus. Plant J. 57, 254-263 (2009)
- Sasakura, F., Uchiumi, T., Shimoda, Y., Suzuki, A., Takenouchi, K., Higashi, S. and Abe, M. A class 1 hemoglobin gene from Alnus firma functions in symbiotic and nonsymbiotic tissues to detoxify nitric oxide. Mol. Plant Microbe. Interact., 19, 441-450 (2006)
関連項目
外部リンク
- ヤマハンノキの根粒から分離されたフランキア菌 日本林學會誌1995