ロトカ・ヴォルテラの競争方程式
ロトカ・ヴォルテラの競争方程式(ロトカ・ヴォルテラのきょうそうほうていしき)は、競争関係にある生物の個体数の変動を表す数理モデルの一種である[1]。2つの種AとBが食料や生息場所などを巡って競争するとき、種Aの存在は、種Bの繁殖を阻害する。種Aにとっても、種Bの存在は繁殖を邪魔する。このような、お互いの存在がそれぞれの個体数増殖に相互にマイナスの影響を与える点を含め、2種の個体数の時間変化を表したモデルがロトカ・ヴォルテラの競争方程式である。
名称はアルフレッド・ロトカとヴィト・ヴォルテラに由来する[2]。競争方程式以外に競争式や競争系、競争モデル、単にロトカ・ヴォルテラ方程式などとも呼ばれる[3][4][5][6]。英語では Lotka-Volterra competition model や Lotka-Volterra equations などと呼ばれる[5][7]。
導出
モデルを導出する過程には様々なものがあるが、典型的にはロトカ・ヴォルテラの競争方程式はロジスティック方程式の拡張として導入できる[8]。簡単な状況から始めるために、2種ではなく、他の種と生物間相互作用を持たない1種のみが環境内に存在する場合を考える。種が1つであっても、各個体は限られた資源(食料や生息場所)を競い合う。そのため、個体数が増えるほど個体数増加は落ち着いていき、ある程度の個体数で飽和すると考えられる。それを簡潔に表したのがロジスティック方程式で
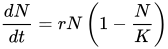
という常微分方程式で表される[9]。ここで、t は時間、N は個体数、dN/dt は N の時間微分で個体数増加率を示す。r は内的自然増加率と呼ばれる、K は環境収容力と呼ばれる正の定数である。右辺の (1 − N/K) が個体数が増えるほど個体数増加率を抑える効果を与えている[10]。
ここにもう一種が加わり、元からいた種と限られた資源を巡って競争する状況が考えられる。それぞれの種を「種1」「種2」と呼ぶとする。種1の存在は、種2の繁殖を阻害する。種1にとっても、種2の存在は繁殖を邪魔する。このように、競争関係にある2つの種が存在するとき、お互いの存在がそれぞれの個体数増殖に相互にマイナスの影響を与える[11]。この点を含め、2種の個体数の時間変化を表したモデルがロトカ・ヴォルテラの競争方程式である。
ロジスティック方程式では、自らの個体数増加による個体数増加率への抑制効果を (1 − N/K) で表していた。同じように、他方の種の個体数が多いほど、一方の種の個体数増加率は抑制されると考えられる。そのため2種の場合は、種1に対する抑制の効果を (1 − N1 + α12 N2/K1) で表すことが考えられる[12]。ここで、N1, N2 は種1と2のそれぞれの個体数である。α12 が種2の個体数が種1の個体数増加率に与える影響の大きさを与える正の定数である[13]。このようなモデリングによって、種1と種2についてのロトカ・ヴォルテラの競争方程式は、以下のような2変数の連立常微分方程式で表される[14]。
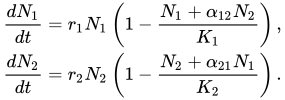
ここで、r1, r2 は種1と種2のそれぞれの内的自然増加率、K1, K2 は種1と2それぞれの環境収容力である。α12 が種2の個体数が種1の個体数増加率に与える影響の大きさを、α21 が種1の個体数が種2の個体数増加率に与える影響の大きさを表している。α12 と α21 は競争係数と呼ばれる[15][16]。
同じモデルは
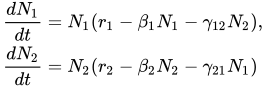
という形式でも表され、使われる[17][8]。β1, β2 は種内競争係数と呼ばれ、γ1, γ2 は種間競争係数あるいは単に競争係数と呼ばれる[18]。上のモデルの係数との関係は K1 = r1/β1, K2 = r2/β2, α12 = γ12/β1 , α21 = γ21/β2 となっている[1]。よって、α の値は種間競争の強さと種内競争の強さの相対値ともいえる[19]。
解の振る舞い
アイソクライン
ロトカ・ヴォルテラの競争方程式の陽な解は求まっていない[17]。アイソクライン法によって解の大域的な振る舞いを知ることができる[13]。N1-N2平面上のアイソクラインは
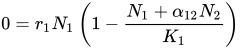
または
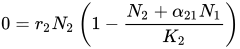
を満たす曲線である。この条件を満たす曲線は
- 直線1:
- 直線2:
- 直線3:
- 直線4:


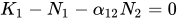
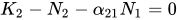
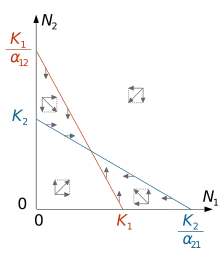
という4つの直線である[20]。1番目は N2 軸と一致する直線である。2番目は N1 軸と一致する直線である。3番目はN1切片が K1、N2切片が K1/α12 の直線である。4番目はN1切片が K2/α21、N2切片が K2 の直線である。これらの直線を境界にして、それぞれの個体数増加率の正負が切り替わる。現実の生物個体数は正の値であるから、特に関係するのは3番目と4番目の直線である。3番目の直線上では、dN1/dt = 0 であるから、この直線を通る解は平面上を上下方向(N2軸方向)にだけ動く。そのため、このアイソクライン直線を傾き無限大のアイソクラインと呼ぶ[21]。一方、4番目の直線上では、dN2/dt = 0 であるから、この直線を通る解は平面上を左右方向(N1軸方向)にだけ動く。そのため、このアイソクライン直線を傾き0のアイソクラインと呼ぶ[21]。
定性的な挙動
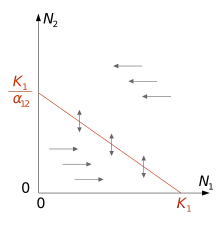
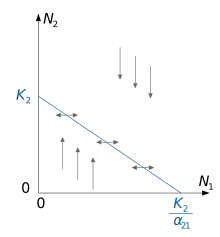
アイソクラインを使って、解(時間が経過したときのそれぞれの個体数の変化)の定性的な挙動を知ることができる。すなわち、N1-N2相平面上の点(各個体数)がアイソクライン直線の内側、外側、あるいは直線上にあるかどうかに注目すれば、個体数増加率の値そのものは不明でも、個体数増加率の正負は知ることができる[14]。直線3の場合は
- 直線内側(K1 − N1 − α12N2 > 0)のとき: dN1/dt > 0
- 直線外側(K1 − N1 − α12N2 < 0)のとき: dN1/dt < 0
- 直線上(K1 − N1 − α12 N2 = 0)のとき:dN1/dt = 0
なので、内側では N1 は増加する方向、外側では N1 は減少する方向、直線上では N1 は増減しないことがわかる(上図)。直線4の場合も同様に、内側では N2 は増加する方向、外側では N2 は減少する方向、直線上では N2 は増減しないことがわかる[14][22]。
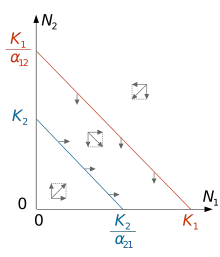
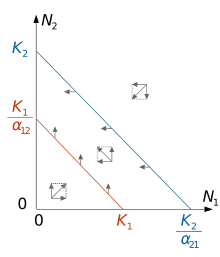
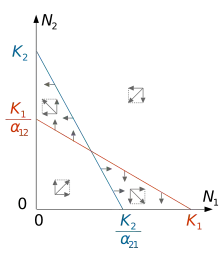
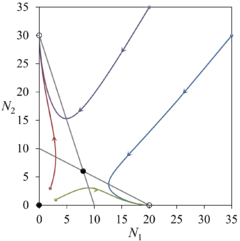
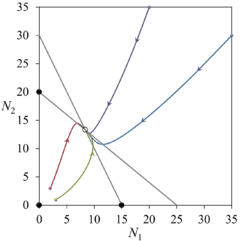
直線3と直線4を重ね合わせることで、各個体数が変化する方向が判明する。N1-N2相平面上で直線3と直線4の相対的な位置関係は、係数の値によって次のように4種類ある[23]。
- (1) K2 < K1/α12 かつ K1 > K2/α21 のとき
- (2) K2 > K1/α12 かつ K1 < K2/α21 のとき
- (3) K2 > K1/α12 かつ K1 > K2/α21 のとき
- (4) K2 < K1/α12 かつ K1 < K2/α21 のとき
したがって、それぞれの場合ごとに解の大局的な挙動が異なり、下図のようになる[24][25]。
 |
 |
| (1)のとき | (2)のとき |
 |
 |
| (3)のとき | (4)のとき |
平衡点と最終結果
解の平衡点は dN1/dt = 0 かつ dN2/dt = 0 を満たす点である[26]。それらは、
- 平衡点1:
- 平衡点2:
- 平衡点3:
- 平衡点4:


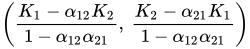
という4点である[27]。これらの平衡点の安定性は、競争係数と環境収容力の値によって次のように決まる[28]。
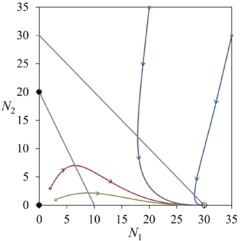
- (1) K2 < K1/α12 かつ K1 > K2/α21 のとき:平衡点4は第1象限に存在せず、平衡点1, 3は不安定、平衡点2が大域的に安定
- (2) K2 > K1/α12 かつ K1 < K2/α21 のとき:平衡点4は第1象限に存在せず、平衡点1, 2は不安定、平衡点3が大域的に安定
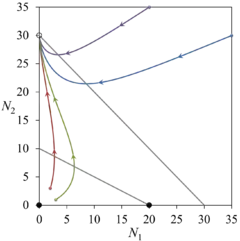
- (3) K2 > K1/α12 かつ K1 > K2/α21 のとき:平衡点1, 4は不安定、平衡点2, 3が局所的に安定
- (4) K2 < K1/α12 かつ K1 < K2/α21 のとき:平衡点1, 2, 3は不安定、平衡点4が大域的に安定
これらの結果を具体的に言い換えると、十分な時間経過後、それぞれの個体数は次のような結果になるといえる。
- (1) 種2は絶滅して種1が残る。種1の個体数は K1 の値に収束する。
- (2) 種1は絶滅して種2が残る。種2の個体数は K2 の値に収束する。
- (3) 種2は絶滅して種1が残るか、種1は絶滅して種2が残るか、初期の個体数によってどちらかの結果となる。個体数は K1 または K2 の値に収束する。
- (4) 種1と種2が共存して残る。それぞれの個体数は K1 − α12 K2/1 − α12α21 と K2 − α21 K1/1 − α12α21 の値に収束する。
 |
 |
| (1)のとき | (2)のとき |
 |
 |
| (3)のとき | (4)のとき |
競争排除則
モデルから得られた結果は、(1), (2), (3) のケースでは片方の種はもう一方の種によって排除されるということであった[29]。この結果は多くの場合に共存は不可能ということを示唆している[30]。ロシアの生態学者ゲオルギー・ガウゼは、ロトカ・ヴォルテラの競争方程式が示す種間の排他性の存在をゾウリムシやイースト菌を用いた実験で確認した[31]。この結果をもとにガウゼは、同じニッチにある複数の種は平衡状態で長期的に共存できないという原則を提唱し、今日では競争排除則と呼ばれる[32][31]。
名称
名称については、競争方程式以外に、競争式や競争系、競争モデルなどとも呼ばれる[3][4][5]。表記揺れとしてヴォルテラではなくボルテラとも記される[4]。他にロトカとヴォルテラの名を冠した生物の個体数のモデルとして、ロトカ・ヴォルテラの方程式がある。こちらは競争関係ではなく捕食・被食関係にある2種の個体数変動を表すモデルである。ただし、本記事で説明してきた競争関係を表すモデル(方程式)についても単に「ロトカ・ヴォルテラの方程式」と呼ぶことも多い[33]。
ロトカ・ヴォルテラの競争方程式はアメリカの数学者アルフレッド・ロトカとイタリアの数学者ヴィト・ヴォルテラに由来する。方程式の初出として、ロトカの1925年の著作、ヴォルテラの1926年あるいは1931年の論文・著作がしばし引用される[34][35]。一方で、科学技術史研究者のシャロン・キングスランドは、ロトカは捕食・被食モデルの方には重点的に取り組んでいたものの、競争モデルへの関心は比較的薄く、競争モデル自体の論文を提出したのは1932年の1つだけであることを指摘している[33]。それに対してヴォルテラは競争モデルに積極的に取り組み、ゲオルギー・ガウゼはヴォルテラの結論を前述のように実験的に検証した[33]。そのためキングスランドは、ジョージ・イヴリン・ハッチンソンが呼んでいたように、Volterra-Gause equations(ヴォルテラ・ガウゼの方程式)と呼ぶ方がより正確だろうと述べている[33]。
脚注
- 寺本 1997, pp. 76–77.
- 巌佐 2015, p. 31.
- 日本生態学会(編) 2004, p. 133.
- 巌佐 1990, p. 13.
- 寺本 1997, p. 77.
- 浅川伸一. “ロトカ・ヴォルテラ方程式”. 2016年8月10日閲覧。
- Silvertown 1992, p. 175.
- ハーバーマン 1992, p. 130.
- 巌佐 2015, p. 19.
- ハーバーマン 1992, p. 35.
- マレー 2014, p. 65.
- 大串 1994, pp. 65–66.
- 北原(編) 2003, p. 249.
- 日本生態学会(編) 2004, pp. 134–135.
- 大串 1994, p. 65.
- 日本生態学会(編) 2004, p. 134.
- 重定 1993, p. 7.
- 日本数理生物学会(編) 2008, p. 17.
- 巌佐 2015, p. 35.
- 北原(編) 2003, pp. 249–250.
- 巌佐 2005, p. 33.
- 巌佐 1990, p. 14.
- 重定 1993, p. 8.
- 寺本 1997, p. 78.
- 大串 1994, p. 67.
- マレー 2014, p. 79.
- 巌佐 1990, p. 15.
- 寺本 1997, pp. 78–80.
- マレー 2014, p. 82.
- 寺本 1997, p. 80.
- 寺本 1997, p. 81.
- 日本生態学会(編) 2004, pp. 132–133.
- Sharon Kingsland (2015-08-04). “Alfred J. Lotka and the origins of theoretical population ecology”. PNAS 112 (31): 9493–9495. doi:10.1073/pnas.1512317112.
- 大串 1994, pp. 65, 96, 98.
- Gause, G. F. (1932). “Experimental Studies on the Struggle for Existence”. Journal of Experimental Biology (The Company of Biologists Ltd) 9 (4): 389-402. ISSN 1477-9145.
参照文献
- 重定南奈子、日本数理生物学会(編)、1993、「第1章 数理生態学」、『生命・生物科学の数理』、岩波書店〈岩波講座 応用数学 4 [対象 8]〉 ISBN 4-00-010514-0 pp. 1–26
- 日本数理生物学会(編)、瀬野裕美(責任編集)、2008、『「数」の数理生物学』初版、共立出版〈シリーズ 数理生物学要論 巻1〉 ISBN 978-4-320-05675-6
- ジェームス・D・マレー、三村昌泰(総監修)、瀬野裕美・河内一樹・中口悦史・三浦岳(監修)、勝瀬一登・吉田雄紀・青木修一郎・宮嶋望・半田剛久・山下博司(訳)、2014、『マレー数理生物学入門』初版、丸善出版 ISBN 978-4-621-08674-2
- 巌佐庸、1990、『数理生物学入門―生物社会のダイナミックスを探る』初版、HBJ出版局 ISBN 4-8337-6011-8
- 寺本英、川崎廣吉・重定南奈子・中島久男・東正彦・山村則男(編)、1997、『数理生態学』初版、朝倉書店 ISBN 4-254-17100-5
- 大串隆之、2014、「3章 昆虫の個体群と群集」、『昆虫生態学』初版、朝倉書店 ISBN 978-4-254-42039-5 pp. 49–98
- 巌佐庸、日本生態学会(編)、巌佐庸・舘田英典(担当編集委員)、2015、「第3章 競争と共存」、『集団生物学』初版、共立出版〈シリーズ 現代の生態学 1〉 ISBN 978-4-320-05744-9
- R. ハーバーマン、稲垣宣生(訳)、1992、『生態系の微分方程式』初版、現代数学社 ISBN 4-7687-0307-0
- 日本生態学会(編)、2004、『生態学入門』初版、東京化学同人 ISBN 4-8079-0598-8
- Jonathan W. Silvertown、河野昭一・高田壮典・大原雅(訳)、1992、『植物の個体群生体学 第2版』初版、東海大学出版会 ISBN 4-486-01157-0
- 北原武(編)、2003、『水産資源管理学』、成山堂書店 ISBN 4-425-82991-3
外部リンク
- 法則の辞典『ロトカ‐ヴォルテラの式』 - コトバンク