分子生物学の歴史
分子生物学の歴史 (ぶんしせいぶつがくのれきし) は1930年代、生化学、遺伝学、微生物学、ウイルス学、物理学といった、以前は異なるものとされていた生物学や物理学のさまざまな分野が収束することで始まった。最も基礎的なレベルで生命を理解するという願望を持っていた多くの物理学者や化学者たちも、後に分子生物学となるものに対して関心を抱いていた。
分子生物学は、生命現象を生み出す高分子の性質を出発点として生命現象を説明しようとする試みである。分子生物学者の研究の焦点となっていたのはとりあえず2種類の高分子である。1つは核酸で、中でも遺伝子の構成要素であるデオキシリボ核酸 (DNA) であり、もう1つは生体の活動を支えるタンパク質である。これらに限定しても、いわゆる「分子生物学革命」 を記述し、基本的な発展についての年表を作成したりするには十分であろう。
概説
分子生物学という名称は1938年にロックフェラー財団のウォーレン・ウィーバーによって造られたものである[1]。分子生物学が最初に出現したとき、それは明確な分野というよりはむしろ、生命の物理学・化学的な探索についての概念を表していた。1910年代のメンデルの法則に基づく染色体説の出現と1920年代の原子理論と量子力学の成熟を受けて、このような探索が手の届くもの思われるようになった。ウィーバーらは生物学、化学、物理学を横断する研究を奨励し、ニールス・ボーアやエルヴィン・シュレーディンガーといった著名な物理学者が生物学的な思索へと関心を向けた。しかし1930年代や40年代には、どのような学際的研究が結実するかは全く判然としなかった。コロイド化学、生物物理学、放射線生物学、結晶学やその他の新興分野は、すべて有望であるように思われた。
1940年にジョージ・ビードルとエドワード・タータムは、遺伝子とタンパク質の間の正確な関係の存在を実証した[2]。遺伝学と生化学を結びつける実験の過程で、彼らは研究対象を遺伝学の中心であったショウジョウバエからより適当なモデル生物であるアカパンカビへと切り替えた。新たなモデル生物の構築と探索は、分子生物学の発展に繰り返し出現するテーマである。1944年に、ニューヨークのロックフェラー研究所に勤務していたオズワルド・アベリーは、アベリー-マクロード-マッカーティの実験において遺伝子がDNAから構成されていることを実証した[3] 。1952年、アルフレッド・ハーシーとマーサ・チェイスは、細菌に感染するウイルスであるバクテリオファージの遺伝物質がDNAから構成されていることを確認した[4] (ハーシーとチェイスの実験)。1953年、ジェームズ・ワトソンとフランシス・クリックは、DNA分子の二重らせん構造を発見した[5]。1961年、フランソワ・ジャコブとジャック・モノーは、ある遺伝子の産物が、他の遺伝子の末端の特定の部位に作用し、その発現を調節することを実証した。また彼らは、DNAとそのタンパク質産物の間に中間物質が存在することを仮定し、それをメッセンジャーRNAと呼んだ[6]。1961年から1965年の間に、DNAが持つ情報とタンパク質の構造との関係が決定された。そこには遺伝暗号と呼ばれるコードが存在し、DNA配列中の一連のヌクレオチドとタンパク質中の一連のアミノ酸の間の対応関係を作り出していた。
分子生物学の主要な発見は、わずか約25年の間に起こった。現在では遺伝子工学という名で総称されている、新たなより高度な技術が誕生するにはもう15年を要し、これによって遺伝子、特に高等で複雑な生物の遺伝子の単離と特定が可能となった。
分子の世界の探索
生物学の歴史の文脈で「分子革命」の評価を行うとき、それが顕微鏡による最初の観察から始まる長い過程の蓄積であることを指摘するのは容易である。初期の研究者たちの目的は、顕微鏡レベルで生体の構造を記述し、その機能を理解することであった。18世紀末以降、生命体を構成する化学物質の特定がますます大きな関心を集めるようになり、19世紀にはドイツの化学者ユストゥス・フォン・リービッヒによって生理化学 (physiological chemistry) が誕生し、続く20世紀初頭には、これまたドイツの化学者エドゥアルト・ブフナーの貢献により生化学が誕生した。化学者の研究対象である分子と光学顕微鏡下で観察される細胞核や染色体などの微細構造の間には、化学者・物理学者 Wolfgang Ostwald が「無視された次元の世界」(the world of the ignored dimensions) と呼んだ不明瞭な領域が存在した。この「世界」はコロイドによって占められており、その化学物質の構造や機能は明確には理解されていなかった。
分子生物学の成功は、化学者や物理学者によって開発された新技術を利用して未知の世界を探索することで得られたものであった。それらの技術にはX線回折、電子顕微鏡、超遠心、電気泳動がなどが含まれる。これらを用いた研究によって高分子の構造や機能が明らかにされていった。
この過程における記念碑的な業績の1つは、1949年ライナス・ポーリングによるもので、初めて鎌状赤血球症患者の特定の遺伝的変異が、個々のタンパク質、すなわち赤血球中のヘモグロビンの変化と関連づけられた。
生化学と遺伝学の出会い
分子生物学の発展は、20世紀の初めの30年間に大きな進展を遂げた2つの分野、生化学と遺伝学の出会いでもあった。生化学は生体を構成する分子の構造と機能を研究する分野である。1900年から1940年の間に、消化の過程と糖などの栄養素の吸収といった代謝の中心的な過程が記述された。これらの過程の各段階は、特定の酵素によって触媒される。酵素は、血中に存在する抗体や筋収縮を担っているものと同じく、タンパク質である。そのため、タンパク質の研究、その構造や合成の研究が生化学者にとっての主要な目的の1つとなった。
20世紀の初頭に発展した2つ目の生物学の分野は遺伝学である。1900年のユーゴー・ド・フリース、カール・エーリヒ・コレンス、エーリヒ・フォン・チェルマクの研究によるメンデルの法則の再発見の後、トーマス・ハント・モーガンが1910年に遺伝学研究のモデル生物としてキイロショウジョウバエ (Drosophila melanogaster) を採用したことで、この学問は具体化し始めた。その直後、モーガンは遺伝子が染色体に局在していることを示した。この発見の後も、彼はショウジョウバエを用いた研究を継続し、多数の他の研究グループとともに、生命と個体発生における遺伝子の重要性を確証した。それにもかかわらず、遺伝子の化学的実体とその作用機構は謎のままであった。分子生物学者たちは、遺伝子とタンパク質の構造の決定と、それらの間の複雑な関係を記述することに尽力した。
分子生物学の発展は、思想史におけるある種の必然性の結実であるだけでなく、未知、偶発性、評価の難しさのすべてを伴う特徴的な歴史的現象でもあった。20世紀初頭の物理学の顕著な発展によって生物学の発展の相対的な遅れが浮き彫りになり、そこは経験的世界の知識探索の新たなフロンティアとなった。さらに、1940年代の軍事的急迫を受けて発展した情報理論とサイバネティクスは、新たな生物学に多くのアイデアと、特にメタファーをもたらした。
生命の基本的機構の研究のためのモデルとして、細菌とそのウイルスであるバクテリオファージを選んだことは、それらは存在が知られている最も小さな生命体であることを考えると、ほとんど自然な選択であった。このモデルの成功は、とりわけドイツの物理学者マックス・デルブリュックの名声と組織形成のセンスによるものである。彼はアメリカ国内でバクテリオファージの研究を専門的に行うファージ・グループという動的な研究グループを作り出した[7]。
新しい生物学の発展の地理的なパノラマは、とりわけ先行研究による制約を受けていた。遺伝学が最も迅速に発展したアメリカ合衆国と、高度で先進的な遺伝学と生化学の研究が共存していたイギリスがその最前線にいた。物理学の革命の発祥地のドイツは世界で最先端の遺伝学と研究所を有しており、分子生物学の発展において主要な役割を果たすはずであった。しかし、歴史は異なる道を歩んだ。1933年のナチスの到来、そしてそれほど極端ではないものの、ファシストイタリアにおける全体主義的措置の厳格化は、ユダヤ人とユダヤ人以外の多数の科学者の移住を引き起こした。彼らの大多数はアメリカやイギリスに逃げ、それらの国々の科学的な活力をさらに刺激することとなった。これらの動きのため、分子生物学はその最初の段階から真に国際的な科学となった。
DNAの生化学の歴史
DNAの研究は分子生物学の中心である。
DNAの最初の単離
19世紀に作業していた生化学者たちは、まず細胞核からDNAとRNA (の混合物) を単離した。彼らは単離された「核酸」が多量体であることを比較的すぐに認識したが、ヌクレオチドが2つのタイプ (リボースとデオキシリボース) を含むことが理解されたのは後になってからであった。この後の発見によって、DNAがRNAとは異なる物質として同定され、その名称がつけられた。
フリードリッヒ・ミーシェルは、1869年に彼が「ヌクレイン」(nuclein) と呼ぶ物質を発見した[8]。しばらく後に、彼は現在ではDNAとして知られている物質の純粋な試料をサケの精子から単離し、1889年に彼の弟子であるリヒャルト・アルトマンはそれを「核酸」(nucleic acid) と名付けた[9]。この物質は染色体にのみ存在することが判明した。
1919年にロックフェラー研究所のフィーバス・レヴィーンは「核酸」の構成要素 (4種類の塩基、糖、リン酸の鎖) を同定し、それらがリン酸-糖-塩基の順に結合していることを示した。彼はこれらの単位をヌクレオチドと呼び、分子はヌクレオチドの単位が連結された「ひも」から構成され、リン酸基が各単位を連結する「主鎖」(backbone) であることを示唆した。しかしレヴィーンは、鎖は短く、一定の固定された順序で反復していると考えた。トルビョルン・カスペルソンと Einar Hammersten はDNAが多量体であることを示した。
染色体と遺伝形質
1927年、ニコライ・コルツォフは、遺伝形質は2つの鏡像の鎖からなる巨大な遺伝分子を介して遺伝し、それらは互いを鋳型として半保存的複製を行うことを提唱した[10]。マックス・デルブリュック、ニコライ・チモフィエフ=ルソフスキー、カール・ツィマーは1935年に、染色体は非常に巨大な分子であること、その構造はX線照射によって変化すること、構造を変化させることでその染色体によって支配される遺伝形質を変化させることができることを発表した[11]。1937年にウィリアム・アストベリーは、最初のDNAのX線回折パターンを撮影した[12]。彼は正確な構造を提唱することはできなかったものの、そのパターンはDNAが規則的な構造を持つこと、それゆえ構造がどのようなものであるかを導出することが可能であることを示していた。
1943年オズワルド・アベリーと科学者のチームは、肺炎球菌 (Pneumococcus) の「滑らかな」(smooth, S型) の形質が「粗い」(rough, R型) 形質を持つ同種の細菌へ、単に死んだS型の細菌を生きたR型の細菌へ与えるだけで移動することを発見した[3]。極めて予想外なことに、生きたR型の細菌は新たなS型の株へと形質転換したのであり、転換したS型の形質は遺伝することが判明した。アベリーは形質の移動の媒体を「形質転換因子」(transforming principle) と呼んだ。彼は、それまで考えられていたようなタンパク質ではなく、DNAが形質転換因子であると同定した。彼は本質的にはフレデリック・グリフィスの実験を再現していたのであった。1953年アルフレッド・ハーシーとマーサ・チェイスは、T2ファージを用いてDNAが遺伝物質であることを実験的に示した[4]。
DNAの構造の発見
1950年代、3つのグループがDNAの構造の決定を目標としていた。最初に手を付けたのはモーリス・ウィルキンスに率いられたキングス・カレッジ・ロンドンのグループで、後にロザリンド・フランクリンが加わった。他のグループはケンブリッジ大学のフランシス・クリックとジェームズ・ワトソンのグループ、3つ目のグループはライナス・ポーリングに率いられたカリフォルニア工科大学のグループであった。クリックとワトソンは金属の棒と球を使って物理的なモデルを構築し、既知のヌクレオチドの化学構造とヌクレオチドを連結する結合の位置をもとに組み立てていった。キングス・カレッジでは、ウィルキンスとフランクリンはDNA繊維のX線回折パターンを調査した。3つのグループのうち、ロンドンのグループだけが良質の回折パターンを作り出すことができ、そのため構造に関する十分な量的なデータを生産するができた。
らせん構造
1948年、ポーリングは多くのタンパク質がらせん構造 (α-ヘリックス) を含むことを発見した[13]。ポーリングはX線回折パターンと物理的なモデル構築からこの構造を導出した。(また、後にポーリングはアストベリーのデータに基づいて三重らせんからなる不正確なDNA構造を提唱した[14]。) ウィルキンスの初期のDNAの回折データにおいても、その構造がらせん構造を伴うことは明らかだった。しかし、この洞察は始まりに過ぎなかった。何本の鎖が集まっているのか、その数はどのらせんにおいても同一なのか、塩基はらせん軸に向かっているのか外を向いているのか、そして最終的にはすべての原子の座標と結合の角度の正確な値はどのようなものか、という疑問が残っていた。このような疑問はワトソンとクリックのモデリングのモチベーションとなった。
相補的なヌクレオチド
ワトソンとクリックは、モデリングにおいて、化学的そして生物学的に妥当であるように見えるものだけに限定することにした。それでもまだ可能性の幅は非常に広かった。ブレイクスルーは1952年エルヴィン・シャルガフがケンブリッジを訪れたことでもたらされ、シャルガフが1947年に発表した実験の説明はクリックにひらめきをもたらした。シャルガフは、4つのヌクレオチド比率はDNA試料によってさまざまであるが、特定のヌクレオチドのペア (アデニンとチミン、グアニンとシトシン) は常に同じ比率で存在していることを発見していた[15][16]。
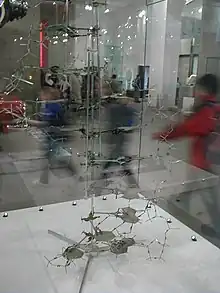
フランクリンのX線回折や他のデータ、そして塩基が対になっているという情報をもとに、ワトソンとクリックは1953年にDNAの分子構造の最初の正確なモデル (二重らせん構造) に到達し、それは精査を行ったフランクリンによっても受け入れられた[17]。発見は1953年2月28日に発表され、最初のワトソン/クリック論文は1953年4月25日にネイチャー誌に掲載された[5]。ワトソンとクリックが勤務していたキャヴェンディッシュ研究所の所長ローレンス・ブラッグは、1953年5月14日にロンドンのガイズ病院医学校で講演を行い、リッチー・カルダーによって "Why You Are You. Nearer Secret of Life" と題された記事となってロンドンのニューズ・クロニクル紙に5月15日に掲載された。そのニュースは翌日にはニューヨーク・タイムズ紙の読者に届くこととなった。Victor K. McElhenyは、伝記 "Watson and DNA: Making a Scientific Revolution" のための調査中に、ロンドンから書かれたニューヨーク・タイムズ紙の5月16日付の "Form of 'Life Unit' in Cell Is Scanned" という見出しの6段落の記事を発見した。この記事は早版に掲載されており、その後、より重要と思われる記事のスペースのために除かれた。(ニューヨーク・タイムズ紙はその後6月12日により長い記事を掲載した。) ケンブリッジ大学の学生新聞も5月30日に発見に関する短い記事を掲載した。1962年にワトソン、クリック、ウィルキンスは、DNAの構造の決定の業績で合同でノーベル生理学・医学賞を受賞した。
「セントラル・ドグマ」
ワトソンとクリックのモデルは、発表後すぐさま大きな関心を引いた。1953年2月21日に結論に達した後、ワトソンとクリックは2月28日に最初の発表を行った。1957年の影響力のあるプレゼンテーションにおいてクリックは、DNA、RNA、タンパク質の間の関係を予言する「分子生物学のセントラルドグマ」を提示し、「配列仮説」(sequence hypothesis) について明確に述べた。二重らせん構造から暗示されていた複製のメカニズム (半保存的複製) の決定的な確証が続いて行われた (メセルソン-スタールの実験)[18]。クリックと共同作業者の業績によって遺伝暗号がコドンと呼ばれる重複しない3つの塩基に基づいていることが示され[19]、ハー・ゴビンド・コラナらによって1966年に遺伝暗号が解読された。これらの発見は分子生物学の誕生を代表するものである。
RNAの立体構造の歴史
前史:RNAのらせん構造
RNAの構造生物学の最初期の研究は、多かれ少なかれ、1950年代初頭にDNAに行われた研究と一致していた。ワトソンとクリックは1953年の重要な論文において、リボースの2'位のヒドロキシル基によるファンデルワールス的な混雑のため、RNAは彼らが提唱した、現在ではB型DNAとして知られているモデルと同一の構造をとることはできないことを示唆した[20]。このことから、RNAの三次元構造についての疑問が生じた。この分子は何らかのらせん構造を形成することができるのだろうか、もしそうだとしたら、それはどんなものだろうか?DNAの場合と同じく、RNAの初期の構造的な研究は、繊維回折実験のための内在RNA多量体の単離を中心に行われた。部分的には試料の不均質さのために、初期の繊維回折パターンはたいてい曖昧で、容易に解釈することはできなかった。1955年、マリアンヌ・グリュンベール=マナゴらはポリヌクレオチドホスホリラーゼについて記述した論文を発表した。この酵素は、ヌクレオシド二リン酸からリン酸を除去し、ヌクレオチドの多量体化を触媒した[21]。この発見によって均質なヌクレオチドの多量体を合成することが可能となり、それらを組み合わせて二本鎖の分子が造り出された。これらの試料は、これまでに得られたものの中で最も容易に解釈可能な繊維回折パターンを作り出し、正しく塩基対を形成した二本鎖RNAは規則的ならせん構造で、DNAで観察されたものとは異なる形状であることが示唆された。これらの結果は、RNAのさまざまな性質や傾向についての一連の調査への道を開いた。1950年代後半から1960年代初頭にかけて、RNAの構造に関するさまざまなトピックについて、多数の論文が発表された。それらの中には、RNA-DNAのハイブリッド[22]、三本鎖RNA[23]、らせん状に配置された2ヌクレオチドのRNA (G-CとA-U) の小スケールの結晶構造までもが含まれていた[24]。RNA構造生物学の初期の研究に関するより詳細なレビューとしては、アレクサンダー・リッチによる The Era of RNA Awakening: Structural biology of RNA in the early years が挙げられる[25]。
始まり:tRNAPheの結晶構造
1960年代中盤には、タンパク質合成におけるtRNAの役割が精力的に研究されていた。この時点では、リボソームがタンパク質合成に関与することが示唆されており、これらの構造を形成するためにはmRNAの鎖が必要であることが示されていた。1964年に発表された論文において、Johathan R. Warner とリッチは、タンパク質合成活性のあるリボソームはA部位とP部位にtRNA分子を含んでいることを示し、これらの分子がペプチド転移反応を助けるという概念について議論した[26]。しかし、かなりの生化学的な性状解析が行われたにもかかわらず、tRNAの機能の構造基盤は謎のままであった。1965年ロバート・W・ホリーらは、初めてtRNA分子を精製してシーケンシングを行い、分子の特定の領域がステムループ構造を形成することに基づいて、tRNAがクローバー型の構造をとることを提唱した[27]。tRNAの単離は、RNA構造生物学における最初の大きな「たなぼた」であった。ホリーの発表の後、多数の研究者が結晶学的な研究のためにtRNAの単離を行い始め、分子の単離の技術を改善していった。1968年までにいくつかのグループがtRNAの結晶を作り出していたが、品質的な限界のため、これらから構造決定に必要な分解能のデータを得ることはできなかった[28]。1971年、Kimらがブレイクスルーを起こし、スペルミンを用いることで 2–3 Å の分解能で回折する酵母tRNAPheの結晶を作り出した。天然に存在するポリアミンであるスペルミンは、tRNAに結合して安定化した[29]。しかし、適当な結晶があるにもかかわらず、tRNAPheの構造がすぐに高分解能で解かれたわけではなかった。むしろ、重金属誘導体を利用する先駆的研究と分子全体の高品質な電子密度マップを作成することにより多くの時間がかかった。1973年、KimらはtRNA分子の 4 Å分解能のマップを作り出し、分子の主鎖を完全に明確にたどることができた[30]。さまざまな研究者が構造の改善を試みるにつれて、塩基の対合やスタッキング相互作用はますます徹底的に明らかにされ、発表された分子構造が検証されていった。
tRNAPheの構造は核酸構造の分野で特筆に値するものである。というのもそれは、RNAであれDNAであれ、長鎖の核酸で最初に解かれた構造であり、リチャード・E・ディッカーソンがB型DNA12量体の構造を解く10年近く前のことであった[31]。また、tRNAPheはRNAの構造で見られる三次元的な相互作用の多くを示していた。それらの分類と完全な理解には数年を要し、すべての将来的なRNA構造研究に基盤を提供するものであった。
再興:ハンマーヘッドリボザイムとグループIイントロン: P4-6
最初のtRNAの構造の後のかなりの期間、RNA構造の分野に劇的な進展は生じなかった。RNA構造の研究は標的となるRNAを単離できるかどうかに依存していた。このことは長年この分野の限界となっており、リボソームなどの既知の標的は単離や結晶化が格段に困難であった。さらに、興味深い他のRNA標的が単に見つかっていない、または興味深いと思えるほどに十分に理解されていないために、構造的な研究を行う対象も不足していた。そのため、tRNAPheの構造の最初の発表の後の約20年は、ほんの一握りの他のRNA標的の構造が解かれただけであり、それらのほとんどはtRNAファミリーに属するものであった[32]。この不運な機会不足は、最終的には核酸研究の2つ大きな前進によって克服されることとなった。リボザイムの同定と、それらのin vitro転写による生産技術である。
テトラヒメナのグループIイントロンが自己触媒を行うリボザイムであることを示唆する発表をトーマス・チェックが行った後[33]、シドニー・アルトマンのリボヌクレアーゼPRNAによる触媒の報告など[34]、いくつかの他の触媒性RNAが1980年代後半に同定され[35]、その中にはハンマーヘッド型リボザイムも含まれていた。1994年、McKayらは「ハンマーヘッド型RNA-DNA リボザイム-阻害剤複合体」の 2.6 Å分解能の構造を発表した。それは自己触媒活性をリボザイムがDNAの基質と結合することで中断した構造であった[36]。この論文で発表されたリボザイムのコンフォメーションはいくつかの可能な状態のうちの1つであることが最終的には示された。この試料は触媒的に不活性であったものの、その後活性状態の構造が解明された。この構造に続いて、ジェニファー・ダウドナによってテトラヒメナのグループIイントロンのP4-P6ドメインの構造が発表された。これはチェックによって有名になったリボザイムの断片である[37]。この論文のタイトルの2番目の句として用いられた Principles of RNA Packing (RNAのパッキングの原理) は、これら2つの構造の価値を適切に表現していた。詳しく記述されたtRNAの構造とtRNAファミリー外の球状RNAの構造の比較が初めて可能となったのである。これによって、RNA三次元構造の分類の枠組みが作られた。現在では、モチーフ、フォールドやさまざまな局所的な安定化相互作用化の保存性を提案することが可能である。これらの構造とそれらからの示唆についてのレビューとしては、ダウドナとFerré-D'Amaréによる RNA FOLDS: Insights from recent crystal structures を参照のこと[38]。
結晶学によってなされた全体構造の決定における進歩に加えて、1990年代の初頭にはNMRがRNA構造生物学の強力な技術として実装されることとなった。大きなリボザイムの構造が結晶学的手法によって解かれるとともに、多数の小さなRNAや薬剤やペプチドと複合体を形成したRNAの構造がNMRを利用して解かれた[39]。加えて、現在ではNMRは結晶構造を精査し補完するものとしても利用されている。その一例は1997年に発表されたテトラループレセプター単独の構造決定において示されている[40]。このような精査によって、大きなRNA分子の全体的なフォールドを安定化している、塩基対形成や塩基のスタッキング相互作用をより正確に特徴づけることが可能となった。RNAの三次元構造モチーフを理解することの重要性は、MichelとCostaがテトラループモチーフを同定した論文において予言的に記されている。「...自らフォールディングを行うRNA分子が比較的少数の三次元モチーフのみを集中的に使用していたとしても驚くには当たらない。これらのモチーフの同定はモデリングの試みに大いに役立つだろう。そして大きなRNAの結晶化が困難な課題である限り、必要であり続けるだろう」[41]
現代:RNA構造生物学の時代
1990年代中盤からのRNA構造生物学の再興は、核酸構造研究の分野にまぎれもなく爆発的拡大をもたらした。ハンマーヘッドリボザイムとP4-6の構造の発表以降、多数の大きな貢献がこの分野になされた。最も注目すべき例としては、グループIイントロンとグループIIイントロン[42]、トマス・A・スタイツの研究室のネナド・バンらによって解かれたリボソーム[43]の構造がある。これらの中にはin vitro転写によって生産されたものが含まれること、NMRによって部分構造の精査が行われたことは特筆すべきであり、両方の技術がRNA研究に不可欠であることの証となっている。2009年には、リボソームの構造に関する業績によってアダ・ヨナス、ヴェンカトラマン・ラマクリシュナン、トマス・A・スタイツがノーベル化学賞を受賞し、現代の分子生物学におけるRNA構造生物学の大きな役割が示されている。
タンパク質の生化学の歴史
最初の単離と分類
タンパク質は、18世紀にアントワーヌ・ド・フルクロワらによって生体分子のクラスとして明確に認識されていた。このクラスのメンバー (albuminoids、Eiweisskörper、matières albuminoides などと呼ばれていた) は、熱や酸などのさまざまな処理によって凝集した凝析したりする性質によって認識されていた。19世紀の初めによく知られていた例としては、卵白に由来するアルブメン (albumen)、血清のアルブミン、フィブリン、小麦のグルテンなどがあった。
イェンス・ベルセリウスの助言のもと、オランダの化学者ヨハンネス・ムルデルはよく知られた動物や植物のタンパク質の元素分析を行った。驚くべきことに、すべてのタンパク質がほぼ同じ実験式、およそC400H620N100O120で表され、それに加えて固有の硫黄とリン原子を含んでいた。ムルデルは彼の発見を2本の論文[44][45]で発表し、これらのタンパク質には1つの基本的な物質 (Grundstoff) が存在し、それは植物で合成されて消化によって動物に吸収されるという仮説を立てた。早くからのこの理論の支持者であったベルセリウスは1838年7月10日付の手紙の中で、この物質が動物の栄養の主要な物質であるように思われることから、ギリシャ語で「主要な」などの意味を持つπρωτειοςに由来する"protein"という名称を提案した。
ムルデルは、アミノ酸のロイシンなどのタンパク質分解産物の同定を行い、その分子量について 131 という(ほぼ正確な) 値を得た。
精製と質量の測定
ムルデルの分析によって示唆されていた分子量の下限は約 9 kであり、当時研究されていた分子の数百倍は大きい値であった。それゆえ、タンパク質の化学構造 (一次構造) は、1949年にフレデリック・サンガーがインスリンのアミノ酸配列を明らかにするまで活発な研究領域とはならなかった。タンパク質がアミノ酸がペプチド結合で連結された多量体であるという (正しい) 理論は、フランツ・ホフマイスターとエミール・フィッシャーによって1902年の同じ会議において独立して同時に提唱された。しかし一部の科学者は、そのような長い高分子が溶液中で安定していることに懐疑的であった。その結果、タンパク質の一次構造について、タンパク質は低分子の集合体であるとするコロイド仮説、ドロシー・リンチのシクロール仮説、エミール・アブデルハルデンのジケトピペラジン仮説、N. Troensegaardのピロール/ピペリジン仮説など、代替的な理論が多数提唱された。これらの理論の大部分は、タンパク質の分解によってペプチドやアミノ酸が生じるという事実を説明することが困難であった。最終的に、タンパク質は明確な組成を持つ (コロイド状の混合物ではない) 高分子であることがテオドール・スヴェドベリによって分析超遠心を用いて示され、その分子量が測定された[46]。タンパク質の一部はこのような高分子が非共有結合的に結合したものである可能性がギルバート・スミスソン・アデアによるヘモグロビンの浸透圧の測定によって示され[47]、後にフレデリック・M・リチャーズのリボヌクレアーゼSの研究においても示された[48]。
タンパク質の質量分析は、長く翻訳後修飾を同定する有用な技術であったが、近年ではタンパク質の構造を探索する目的でも利用されている。
ほとんどのタンパク質は、現代の技術を用いてもミリグラム以上の量の精製には困難が伴う。そのため初期の研究は、血液や卵白のタンパク質、さまざまな毒素、屠畜場で得られる消化・代謝酵素など、大量に精製を行えるものに焦点を当てていた。第二次世界大戦中、兵士の生存を助けるための血液タンパク質の精製を目的としたエドウィン・ジョゼフ・コーンに率いられたプロジェクトによって、多くのタンパク質精製技術が開発された。1950年代後半にはアーマー・アンド・カンパニーが 1 kgの純粋なウシ膵臓リボヌクレアーゼAを精製し、世界中の科学者が低価格で利用できるようにした[49]。この気前の良い行動によってリボヌクレアーゼAはその後の数十年間基礎研究で用いられる主要なタンパク質となり、いくつかのノーベル賞がもたらされた。
タンパク質のフォールディングと最初の構造モデル
タンパク質のフォールディングの研究は、ハリエット・チックとチャールズ・ジェームス・マーティンがタンパク質の凝析が2つの異なる過程からなることを示した1910年の有名な論文に始まる[50]。溶液からのタンパク質の沈殿の前には変性と呼ばれる別の過程が起こり、その過程でタンパク質は極めて可溶性が低くなり、酵素活性を失い、化学的な反応性が高くなる。1920年代の中盤、モーティマー・ルイス・アンソンとアルフレッド・ミルスキーは変性が可逆的な過程であると提唱した[51]。それは正しい仮説であったが、初めは一部の科学者に「ゆで卵を元に戻す」 (unboiling the egg) と揶揄された。またアンソンは、変性は2状態 (「全か無か」) の過程であり、1つの大きな分子的な転換が可溶性、酵素活性、化学的反応性に劇的な変化をもたらすことを示唆した。さらに彼は、変性に伴う自由エネルギーの変化は、通常の化学反応に伴うものよりもずっと小さいことを指摘した。1929年、呉憲 (Hsien Wu) は、変性はタンパク質のアンフォールディング (フォールディングがほどける) 過程であり、アミノ酸側鎖の溶媒への露出を引き起こすコンフォメーション変化であるという仮説を立てた[52]。この (正しい) 仮説によると、脂肪族で反応性の高い側鎖が溶媒に露出することで、タンパク質は可溶性が低く反応性が高い状態となり、特定のコンフォメーションが失われることで酵素活性は失われる。相当な妥当性があったものの、タンパク質の構造や酵素学の知見は乏しく、可溶性、酵素活性、化学的反応性の変化を説明する他の因子が存在する可能性があったため、この仮説はすぐには受け入れられなかった。1960年代初頭、クリスチャン・アンフィンセンは、リボヌクレアーゼAのフォールディングが他の外的な補因子を必要としない、完全に可逆的な過程であることを示し[53]、フォールディングした状態がタンパク質の最小自由エネルギー状態であるという「熱力学仮説」を確証した。
タンパク質のフォールディングの仮説に続いて、フォールディングしたタンパク質構造を安定化する物理的な相互作用の研究が行われた。疎水性相互作用が重要な役割を果たすという仮説が、ドロシー・リンチとアーヴィング・ラングミュアによって彼女のシクロール構造を安定化する機構として提唱された[54][55]。ジョン・デスモンド・バナールらの支持が得られたものの[56]、この (正しい) 仮説は、1930年代にライナス・ポーリングらによって反証されたシクロール仮説と共に却下された。代わりにポーリングは、ウィリアム・アストベリーによって1933年に最初に推し進められた、タンパク質構造は主に水素結合によって安定化されているという考えを支持した[57]。驚くべきことに、ポーリングの水素結合に関する誤った理論は、α-ヘリックスやβ-シートといった、タンパク質の二次構造要素についての正しいモデルをもたらした。疎水性相互作用が正当な名声を回復したのは、カイ・ウルリク・リンデルストロム=ラングの研究に一部基づいてなされた、ウォルター・カウスマンによる変性に関する1959年の有名な論文によってであった[58]。タンパク質のイオン性の性質はBjerrum、Weber、ティセリウスによって示されていたが、リンデストロム=ラングは電荷は一般的に溶媒と接触可能であり、互いには結合していないことを1949年に示した[59]。
球状タンパク質の二次構造や低分解能の三次元構造は、初期は分析超遠心や流動複屈折などの流体力学的手法で調べられていた。円偏光二色性、蛍光、近紫外・赤外吸収などのタンパク質を精査する分光学的手法が1950年代に発達した。タンパク質の原子分解能の構造は、X線結晶構造解析によって1960年代に、NMRによって1980年代に初めて解かれた。2006年の段階で、蛋白質構造データバンクには4万近くのタンパク質の原子分解能の構造が登録されている。より近年では、巨大な高分子複合体のクライオ電子顕微鏡解析や小さなタンパク質ドメインの構造予測が原子分解能に到達するための2つの手法として登場している。
出典
- Weaver, Warren (6 November 1970). “Molecular Biology: Origin of the Term”. Science 170 (3958): 581–582. doi:10.1126/science.170.3958.581-a. ISSN 0036-8075. JSTOR 1731491.
- Beadle, G. W.; Tatum, E. L. (1941). “Genetic Control of Biochemical Reactions in Neurospora”. PNAS 27 (11): 499–506. Bibcode: 1941PNAS...27..499B. doi:10.1073/pnas.27.11.499. PMC 1078370. PMID 16588492.
- Avery, Oswald T.; Colin M. MacLeod; Maclyn McCarty (1944-02-01). “Studies on the Chemical Nature of the Substance Inducing Transformation of Pneumococcal Types: Induction of Transformation by a Desoxyribonucleic Acid Fraction Isolated from Pneumococcus Type III”. Journal of Experimental Medicine 79 (2): 137–158. doi:10.1084/jem.79.2.137. PMC 2135445. PMID 19871359.
- Hershey, A.D. and Chase, M. (1952) "Independent functions of viral protein and nucleic acid in growth of bacteriophage" J Gen Physiol.
- Watson J.D.; Crick F.H.C. (1953). “A Structure for Deoxyribose Nucleic Acid”. Nature 171 (4356): 737–738. Bibcode: 1953Natur.171..737W. doi:10.1038/171737a0. PMID 13054692 2007年2月13日閲覧。.
- Jacob, F; Monod, J (1961). “Genetic regulatory mechanisms in the synthesis of proteins”. J Mol Biol 3 (3): 318–356. doi:10.1016/S0022-2836(61)80072-7. PMID 13718526.
- Keen, E. C. (2015). “A century of phage research: Bacteriophages and the shaping of modern biology”. BioEssays 37 (1): 6–9. doi:10.1002/bies.201400152. PMC 4418462. PMID 25521633.
- Dahm, Ralf (2008-1). “Discovering DNA: Friedrich Miescher and the early years of nucleic acid research”. Human Genetics 122 (6): 565–581. doi:10.1007/s00439-007-0433-0. ISSN 1432-1203. PMID 17901982.
- Gribbin, John, 1946- ([©2003]). The scientists : a history of science told through the lives of its greatest inventors (1st U.S. ed ed.). New York: Random House. p. 546. ISBN 1400060133. OCLC 51983438
- Soyfer VN (September 2001). “The consequences of political dictatorship for Russian science”. Nat. Rev. Genet. 2 (9): 723–9. doi:10.1038/35088598. PMID 11533721.
- Über die Natur der Genmutation und der Genstruktur. Berlin Weidmann. (1935). OCLC 73076219
- Astbury, W. T.; Bell, Florence O. (1938-4). “X-Ray Study of Thymonucleic Acid” (英語). Nature 141 (3573): 747–748. doi:10.1038/141747b0. ISSN 0028-0836.
- Pauling, L.; Corey, R. B.; Branson, H. R. (1951-4). “The structure of proteins; two hydrogen-bonded helical configurations of the polypeptide chain”. Proceedings of the National Academy of Sciences of the United States of America 37 (4): 205–211. doi:10.1073/pnas.37.4.205. ISSN 0027-8424. PMC 1063337. PMID 14816373.
- Pauling, L.; Corey, R. B. (1953-2). “A Proposed Structure For The Nucleic Acids”. Proceedings of the National Academy of Sciences of the United States of America 39 (2): 84–97. doi:10.1073/pnas.39.2.84. ISSN 0027-8424. PMC 1063734. PMID 16578429.
- Elson, D.; Chargaff, E. (1952-04-15). “On the desoxyribonucleic acid content of sea urchin gametes”. Experientia 8 (4): 143–145. ISSN 0014-4754. PMID 14945441.
- Chargaff, E.; Lipshitz, R.; Green, C. (1952-3). “Composition of the desoxypentose nucleic acids of four genera of sea-urchin”. The Journal of Biological Chemistry 195 (1): 155–160. ISSN 0021-9258. PMID 14938364.
- “Molecular structure of nucleic acids; a structure for deoxyribose nucleic acid”. Nature 171 (4356): 737–8. (1953). Bibcode: 1953Natur.171..737W. doi:10.1038/171737a0. PMID 13054692.
- Meselson, M.; Stahl, F. W. (1958-07-15). “THE REPLICATION OF DNA IN ESCHERICHIA COLI”. Proceedings of the National Academy of Sciences of the United States of America 44 (7): 671–682. doi:10.1073/pnas.44.7.671. ISSN 0027-8424. PMC 528642. PMID 16590258.
- Crick, F. H.; Barnett, L.; Brenner, S.; Watts-Tobin, R. J. (1961-12-30). “General nature of the genetic code for proteins”. Nature 192: 1227–1232. ISSN 0028-0836. PMID 13882203.
- “Molecular structure of nucleic acids; a structure for deoxyribose nucleic acid”. Nature 171 (4356): 737–738. (April 1953). Bibcode: 1953Natur.171..737W. doi:10.1038/171737a0. PMID 13054692.
- “Enzymatic synthesis of nucleic acidlike polynucleotides”. Science 122 (3176): 907–10. (November 1955). Bibcode: 1955Sci...122..907G. doi:10.1126/science.122.3176.907. PMID 13274047.
- “A new, two-stranded helical structure: polyadenylic acid and polyuridylic acid”. J. Am. Chem. Soc. 78 (14): 3548–3549. (July 1956). doi:10.1021/ja01595a086.
- “Formation of a three-stranded polynucleotide molecule”. J. Am. Chem. Soc. 79 (8): 2023–2024. (April 1957). doi:10.1021/ja01565a074.
- “The crystal structure of an intermolecular complex containing a guanine and a cytosine derivative”. Proc. Natl. Acad. Sci. U.S.A. 49 (6): 885–92. (June 1963). Bibcode: 1963PNAS...49..885S. doi:10.1073/pnas.49.6.885. PMC 300027. PMID 13989773.
- Rich A (May 2009). “The era of RNA awakening: structural biology of RNA in the early years”. Q. Rev. Biophys. 42 (2): 117–37. doi:10.1017/S0033583509004776. PMID 19638248.
- “The number of soluble RNA molecules on reticulocyte polyribosomes”. Proc. Natl. Acad. Sci. U.S.A. 51 (6): 1134–41. (June 1964). Bibcode: 1964PNAS...51.1134W. doi:10.1073/pnas.51.6.1134. PMC 300225. PMID 14215634.
- Holley, RW, Apgar, J, Everett, GA, Madison, JT, Marguisse, M, Merrill, SH, Penwick, JR, Zamir (March 1965). “Structure of a ribonucleic acid”. Science 147 (3664): 1462–5. Bibcode: 1965Sci...147.1462H. doi:10.1126/science.147.3664.1462. PMID 14263761.
- “Single crystals of transfer RNA: an X-ray diffraction study”. Science 162 (3860): 1381–4. (December 1968). Bibcode: 1968Sci...162.1381K. doi:10.1126/science.162.3860.1381. PMID 4880852.
- “High-resolution x-ray diffraction patterns of crystalline transfer RNA that show helical regions”. Proc. Natl. Acad. Sci. U.S.A. 68 (4): 841–5. (April 1971). Bibcode: 1971PNAS...68..841K. doi:10.1073/pnas.68.4.841. PMC 389056. PMID 5279525.
- “Three-dimensional structure of yeast phenylalanine transfer RNA: folding of the polynucleotide chain”. Science 179 (4070): 285–8. (January 1973). Bibcode: 1973Sci...179..285K. doi:10.1126/science.179.4070.285. PMID 4566654.
- “Structure of a B-DNA dodecamer: conformation and dynamics”. Proc. Natl. Acad. Sci. U.S.A. 78 (4): 2179–83. (April 1981). Bibcode: 1981PNAS...78.2179D. doi:10.1073/pnas.78.4.2179. PMC 319307. PMID 6941276.
- “RNA structure at high resolution”. FASEB J. 9 (11): 1023–33. (August 1995). doi:10.1096/fasebj.9.11.7544309. PMID 7544309.
- “In vitro splicing of the ribosomal RNA precursor of Tetrahymena: involvement of a guanosine nucleotide in the excision of the intervening sequence”. Cell 27 (3 Pt 2): 487–96. (December 1981). doi:10.1016/0092-8674(81)90390-1. PMID 6101203.
- “Ribonuclease P: an enzyme with an essential RNA component”. Proc. Natl. Acad. Sci. U.S.A. 75 (8): 3717–21. (August 1978). Bibcode: 1978PNAS...75.3717S. doi:10.1073/pnas.75.8.3717. PMC 392857. PMID 358197.
- “Autolytic Processing of Dimeric Plant Virus Satellite RNA”. Science 231 (4745): 1577–1580. (March 1986). Bibcode: 1986Sci...231.1577P. doi:10.1126/science.231.4745.1577. PMID 17833317.
- “Three-dimensional structure of a hammerhead ribozyme”. Nature 372 (6501): 68–74. (November 1994). Bibcode: 1994Natur.372...68P. doi:10.1038/372068a0. PMID 7969422.
- “Crystal structure of a group I ribozyme domain: principles of RNA packing”. Science 273 (5282): 1678–85. (September 1996). Bibcode: 1996Sci...273.1678C. doi:10.1126/science.273.5282.1678. PMID 8781224.
- “RNA folds: insights from recent crystal structures”. Annu Rev Biophys Biomol Struct 28 (1): 57–73. (1999). doi:10.1146/annurev.biophys.28.1.57. PMID 10410795.
- “Recent solution structures of RNA and its complexes with drugs, peptides and proteins”. Curr. Opin. Struct. Biol. 7 (3): 317–23. (June 1997). doi:10.1016/S0959-440X(97)80046-2. PMID 9204272.
- “Solution structure of a GAAA tetraloop receptor RNA”. EMBO J. 16 (24): 7490–9. (December 1997). doi:10.1093/emboj/16.24.7490. PMC 1170348. PMID 9405377.
- “Frequent use of the same tertiary motif by self-folding RNAs”. EMBO J. 14 (6): 1276–85. (March 1995). doi:10.1002/j.1460-2075.1995.tb07111.x. PMC 398207. PMID 7720718.
- PDB: 3BWP; “Crystal structure of a self-spliced group II intron”. Science 320 (5872): 77–82. (April 2008). Bibcode: 2008Sci...320...77T. doi:10.1126/science.1153803. PMC 4406475. PMID 18388288.; rendered with PyMOL
- PDB: 1FFK; “The complete atomic structure of the large ribosomal subunit at 2.4 A resolution”. Science 289 (5481): 905–20. (August 2000). Bibcode: 2000Sci...289..905B. doi:10.1126/science.289.5481.905. PMID 10937989.; rendered with PyMOL
- Bulletin des Sciences Physiques et Naturelles en Néerlande (1838). pg 104. SUR LA COMPOSITION DE QUELQUES SUBSTANCES ANIMALES
- Mulder, G. J. (1839). “Ueber die Zusammensetzung einiger thierischen Substanzen” (ドイツ語). Journal f�r Praktische Chemie 16 (1): 129–152. doi:10.1002/prac.18390160137. ISSN 0021-8383.
- Svedberg, The; Fåhraeus, Robin (1926-2). “A NEW METHOD FOR THE DETERMINATION OF THE MOLECULAR WEIGHT OF THE PROTEINS” (英語). Journal of the American Chemical Society 48 (2): 430–438. doi:10.1021/ja01413a019. ISSN 0002-7863.
- Adair, G. S. (1925-10-01). “The Osmotic Pressure of Haemoglobin in the Absence of Salts” (英語). Proceedings of the Royal Society A: Mathematical, Physical and Engineering Sciences 109 (750): 292–300. doi:10.1098/rspa.1925.0126. ISSN 1364-5021.
- Richards, F. M.; Vithayathil, P. J. (1959-6). “The preparation of subtilisn-modified ribonuclease and the separation of the peptide and protein components”. The Journal of Biological Chemistry 234 (6): 1459–1465. ISSN 0021-9258. PMID 13654398.
- Richards, F. M. (1972-11-03). “The 1972 nobel prize for chemistry”. Science (New York, N.Y.) 178 (4060): 492–493. doi:10.1126/science.178.4060.492. ISSN 0036-8075. PMID 17754377.
- Chick, Harriette (1910-07-01). “On the ‘heat coagulation’ of proteins” (英語). The Journal of Physiology 40 (5): 404–430. doi:10.1113/jphysiol.1910.sp001378.
- Anson, M. L.; Mirsky, A. E. (1925-11-20). “ON SOME GENERAL PROPERTIES OF PROTEINS”. The Journal of General Physiology 9 (2): 169–179. ISSN 0022-1295. PMC 2140798. PMID 19872240.
- Edsall, J (1995) (英語). Advances in Protein Chemistry. 46. Elsevier. pp. 1–5. doi:10.1016/s0065-3233(08)60329-0. ISBN 9780120342464
- Anfinsen, C. B.; Haber, E.; Sela, M.; White, F. H. (1961-09-15). “The kinetics of formation of native ribonuclease during oxidation of the reduced polypeptide chain”. Proceedings of the National Academy of Sciences of the United States of America 47: 1309–1314. doi:10.1073/pnas.47.9.1309. ISSN 0027-8424. PMC 223141. PMID 13683522.
- Langmuir, Irving; Wrinch, Dorothy (1939-1). “Nature of the Cyclol Bond” (英語). Nature 143 (3611): 49–52. doi:10.1038/143049a0. ISSN 0028-0836.
- Langmuir, Irving (1939-07-01). “The structure of proteins”. Proceedings of the Physical Society 51 (4): 592–612. doi:10.1088/0959-5309/51/4/305. ISSN 0959-5309.
- Bernal, J. D. (1939-4). “Structure of Proteins*” (英語). Nature 143 (3625): 663–667. doi:10.1038/143663a0. ISSN 0028-0836.
- Astbury, W. T.; Woods, H. J. (1934-01-01). “X-Ray Studies of the Structure of Hair, Wool, and Related Fibres. II. The Molecular Structure and Elastic Properties of Hair Keratin” (英語). Philosophical Transactions of the Royal Society A: Mathematical, Physical and Engineering Sciences 232 (707-720): 333–394. doi:10.1098/rsta.1934.0010. ISSN 1364-503X.
- Kauzmann, W. (1959) (英語). Advances in Protein Chemistry. 14. Elsevier. pp. 1–63. doi:10.1016/s0065-3233(08)60608-7. ISBN 9780120342143
- Jacoesen, C. F.; Linderstrøm-Lang, K. (1949-9). “Salt Linkages in Proteins” (英語). Nature 164 (4166): 411–412. doi:10.1038/164411a0. ISSN 0028-0836.
文献
- Fruton, Joseph. Proteins, Genes, Enzymes: The Interplay of Chemistry and Biology. New Haven: Yale University Press. 1999. ISBN 0-300-07608-8
- Lily E. Kay, The Molecular Vision of Life: Caltech, the Rockefeller Foundation, and the Rise of the New Biology, Oxford University Press, Reprint 1996
- Morange, Michel. A History of Molecular Biology. Cambridge, MA: Harvard University Press. 1998.
関連項目
| |||||||
| 概観 |
| ||||||
| 工学 |
| ||||||
| |||||||
