抗微生物ペプチド
抗微生物ペプチド(こうびせいぶつペプチド;宿主防御ペプチド[しゅくしゅぼうぎょペプチド]とも呼ばれる)は、進化的に保存された自然免疫反応の1種として機能するペプチドの総称であり、あらゆる種類の生命で認められる。原核生物と真核生物の細胞には基本的な違いがあり、それは抗微生物ペプチドの標的の違いを表しているのかもしれない。これらのペプチドは薬効を持ち、広いスペクトルをもつ抗生物質であり、新規治療薬としての可能性を示している。抗微生物ペプチドはグラム陰性およびグラム陽性細菌(通常の抗生物質に耐性のある種を含む)、マイコバクテリウム属 (結核菌を含む)、エンベロープを持つウイルス、真菌、および濃度によっては哺乳類細胞でさえ殺すことが示されている[1][2]。通常の抗生物質の多くとは異なり、抗微生物ペプチドは 免疫調節薬として機能することで免疫力を高めることができるようにみえる。
構造
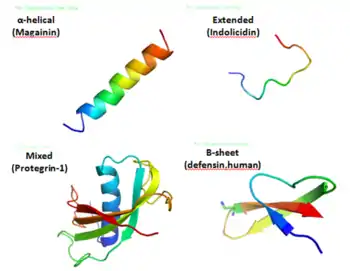
抗微生物ペプチドは独特で多様な分子のグループであり、アミノ酸の組成と構造によってサブグループに分けられる[3]。多くの抗微生物ペプチドは12から50アミノ酸残基からなる。これらのペプチドには2つ以上の正に荷電した残基アルギニンとリジン(または酸性環境ではヒスチジン)、および通常50%を超える疎水性の残基が含まれる[4][5][6]。これら分子の二次構造は以下の4つのテーマに従う。2つ以上のジスルフィド結合の存在による①αヘリックス、②βシート、 1つのジスルフィド結合および/またはペプチド鎖の環化の存在による③βヘアピンまたはループ、および④引き伸ばし構造である[7]。これらのペプチドの多くは自由溶液中では構造をとらないが、生体膜の中では最終的な形態をとる。抗微生物ペプチドでは、ヘリックスのある面に沿って親水性の残基が並び、反対側には疎水性の残基が並ぶ[3]。抗微生物ペプチドのこの両親媒性が脂質二重膜への分配を可能にしている。膜への透過性付与はかならずしも必要ではなく、膜に作用する能力が抗微生物ペプチドの決定的な特徴である[8]。これらのペプチドは膜透過性付与からさまざまな細胞質の標的への作用と多岐にわたる。
| タイプ | 特徴 | 例 |
|---|---|---|
| 陰イオン性ペプチド | グルタミン酸残基とアスパラギン酸残基が多い | 両生類のマクシミンH5、ヒトのダームシジン |
| 直鎖陽イオン性α-ヘリックスペプチド | システイン残基を含まない | セクロピン、アンドロピン、モリシン、昆虫のセラトトキシンとメリチン、マガイニン, デルマセプチン、ボンビニン、ブレビニン-1、両生類のエスクレチンとブフォリンII、ウサギのCAP18、ヒトのLL37 |
| 特定のアミノ酸残基が多い陽イオン性ペプチド | プロリン、アルギニン、フェニルアラニン、トリプトファンが多い | アバエシン、ミツバチのアピダエシン、ブタのプロフェニン、ウシの インドリシジン |
| システイン残基を含みジスルフィド結合がある陰イオン性および陽イオン性ペプチド | 1~3個のジスルフィド結合を含む | 結合数1:ブレビニン、結合数 2:ブタのプロテグリンとカブトガニのタキプレシン、結合数3:ヒトのディフェンシン、結合数4以上:ショウジョウバエのドロソマイシン |
抗微生物活性
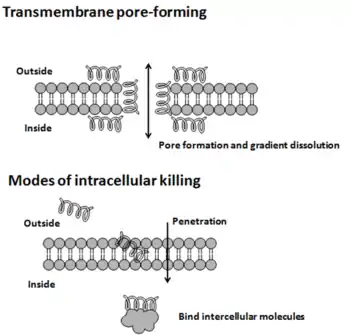
抗微生物ペプチドの殺菌作用の様式はさまざまであり、細胞膜の破壊、代謝への干渉、および細胞内成分のターゲッティングを含む。そのペプチドと標的生物との最初の接触は、ほとんどの細菌の表面は陰イオン的であるので、静電的相互作用によるだろう。そのペプチドのアミノ酸組成、両親媒性、陽イオン的荷電、および大きさは、脂質二重層にくっつき、挿入され、「バレルステーブ」、「カーペット」、または「ドーナツ型小孔」機構によって小孔を形成することを可能にする。あるいは細胞に入り細胞の生存にとって重要な細胞内分子と結合することを可能にする[9]。細胞内結合モデルは細胞壁合成阻害、細胞膜の改変、自己分解酵素の活性化、DNA、RNA、タンパク質の合成阻害、および特定の酵素の阻害を含む。しかし、多くの場合、正確な殺菌機構は不明である。そのような機構の研究に対する新しい技術の1つは二面偏波式干渉計である[10][11]。通常の抗生物質の多くとは異なり、これらのペプチドは静菌的(細菌の増殖を阻害する)ではなく殺菌的(細菌を殺す)であるように見える。一般的に、これらペプチドの抗微生物活性は最小発育阻止濃度(MIC、細菌の増殖を阻害する薬剤の最小濃度)を測定することにより決定される[12]。
免疫調節活性
直接細菌を殺すことに加え、多くの免疫調節剤としての機能も持つことが示されている。その機能には、宿主の遺伝子発現を変える力、ケモカインとして、あるいはケモカイン産生を誘導する作用、リポ多糖によって誘導される炎症誘発性ケモカイン産生の阻害、傷の回復促進、樹状細胞と獲得免疫反応に関する細胞の反応を調節して感染の除去に関わるかもしれない。動物モデルでは、宿主の防御ペプチドが感染の予防と除去に重要であることが示された。多くのペプチドが初めは「抗微生物ペプチド」として単離されても、名付けられた「抗微生物ペプチド」が生体内では別にもっと重要な機能があると示されることがある(例えば、ヘプシジン[13])。
抗微生物ペプチド作用の決定
抗微生物ペプチド活性の機構を決めるためにいくつかの方法が使われてきた[9]。
| 方法 | 使い方 |
|---|---|
| 顕微鏡観察 | 微生物細胞への抗微生物ペプチドの効果を可視化するため |
| 蛍光色素 | 膜小胞に透過性を付与する抗微生物ペプチドを測定するため |
| イオンチャネル形成 | 抗微生物ペプチドによって作られた小孔の形成と安定性を評価するため |
| 円偏光二色性および配向円偏光二色性 | 脂質二重層に結合した抗微生物ペプチドの配列と二次構造を測定するため |
| 二面偏波式干渉計 | 抗微生物ペプチドの異なる機構を測定するため |
| 固相NMR分光法 | 生物学的な液晶状態における脂質二重膜での抗微生物ペプチドの二次構造、向き、および貫通を測定するため |
| 中性子回折 | 整列した多重層または液体中の膜でのペプチドによってできた小孔の回折パターンを測定するため |
治療薬としての可能性
これらのペプチドは、新規治療薬および従来の抗生物質治療の新規補助剤の開発における非常に有力な候補である。それは、従来の抗生物質と比べ、抗生物質耐性を引き起こすように見えないが、一般に広範囲な活性を持っており、静菌的ではなく殺菌的であり、殺菌の誘導が短時間に起こるからである。非常に多くの天然ペプチドとそれらの派生物が、口腔粘膜炎、嚢胞性線維症(CF)に関連している肺の感染症、がん[14]、および典型的な皮膚感染症にわたるさまざまな疾患に対する新規抗伝染病療法として開発されてきた。ペクシガナンは糖尿病による足の壊疽を関係した感染症の治療で役に立つことが示されている。
抗微生物ペプチドのモデル
コンピュータシミュレーションにより、近年抗微生物ペプチドが膜とどのように相互作用するかの原子レベルの解像度の画像を提供している[15][16]。生物物理学研究では、固相NMRを使った実験で抗微生物ペプチドによる膜破壊の原子レベルの解像度での説明がなされた[17][18]。
抗微生物ペプチドの選択性
抗微生物ペプチドに対して細菌細胞と宿主細胞が競合した場合、抗微生物ペプチドは哺乳類細胞より細菌細胞と相互作用しやすく、そのため哺乳類細胞にはあまり毒性を与えずに微生物を殺すことが可能となっている。[19] 選択性は抗微生物ペプチドの非常に重要な性質であり、それが宿主の防衛システムでの抗生物質としての機能を保証している。
一方、癌細胞に対して考えた場合、癌細胞自身もdefensinをはじめとするヒト抗微生物ペプチドを分泌し、場合によっては癌細胞の方が周囲の正常細胞より耐性が高いことが報告されており、必ずしも選択性が高いとは言えない。また、微生物由来の抗微生物ペプチドも、その1つであるナイシンが癌ではない哺乳類細胞に作用することが報告されている[20][2][21]。
抗微生物ペプチドの選択性を決める要素
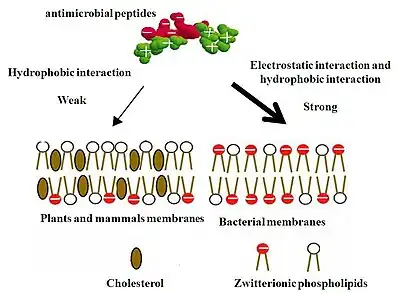
抗微生物ペプチドの選択性という性質に密接に関わる要素はいくつかあるが、最も大きな影響を持つのは陽イオン性の性質である。細菌の細胞膜の表面は哺乳類の細胞より負に荷電しているので、抗微生物ペプチドは細菌の細胞と哺乳類の細胞に対して異なった親和性を示すだろう[22]。
それに加え、他の要素も選択性に影響する。コレステロールは膜の安定化剤として哺乳類の細胞に通常広く分布しているが、細菌の細胞膜に存在しないことはよく知られている。そしてこのコレステロールの存在が、脂質二重膜を安定化させるためか抗微生物ペプチドと相互作用することにより、一般的にこのペプチドの活性を減少させるだろう。それで、哺乳類の細胞のコレステロールは抗微生物ペプチドの攻撃から細胞を守るだろう[23]。
他にも、膜電位はペプチドと脂質の相互作用に影響することがよく知られている[24]。細胞膜の外側から内側へ内部が負の膜電位が存在し、この内部が負の膜電位は、おそらく正に荷電したペプチドを膜に挿入しやすくすることで膜の透過性を増加するだろう。細菌の細胞の膜電位は正常な哺乳類の細胞の膜電位より、比較的負に偏っているので、正に荷電した抗微生物ペプチドに攻撃を受けやすいだろう。
同様に、増加するイオン強度[23]もまた一般的にはほとんどの抗微生物ペプチドの活性を減少させるが、初めの相互作用に必要な静電的相互作用を弱めることで抗微生物ペプチドの選択性に部分的には貢献していると思われている。
選択性の機構
細菌の細胞膜はフォスファチジルグリセロールとカルジオリピンのような酸性リン脂質に富む[19][25]。これらのリン脂質の頭部は非常に強く負に荷電している。そのため、細菌の膜の外側にさらされている二重膜の最も外側の部分が正に荷電した抗微生物ペプチドの攻撃を受けやすい。それで、正に荷電した抗微生物ペプチドと負に荷電した細菌の膜の相互作用は主として静電的な相互作用であり、それは細胞接着の主要な駆動力である。他にも、抗微生物ペプチドは正に荷電し、かつ疎水的な表面を形成するので、抗微生物ペプチドの疎水的な部分と細菌の膜表面の双性イオン性リン脂質(電荷は中性)との間の疎水的相互作用も多少あるが、この場合には大した効果はない。
対照的に、植物と哺乳類の膜の外側部分は主に正味の電荷がない脂質で構成されている。それは、負に荷電した頭部を持つ脂質は原則的に細胞膜の内側に隠されているからである[22]。 それで、哺乳類の細胞の場合、膜の外側の表面は負に荷電したガングリオシドを膜の外側表面に少しだけ含むが、通常、双性イオン性のフォスファチジルコリンとスフィンゴミエリンからなる。それで、両親媒性の抗微生物ペプチドと哺乳類の細胞の膜の細胞表面にある双性イオン性リン脂質との疎水的相互作用がペプチドと細胞の結合を形成する主要な役割を果たす[26]。しかし、疎水的相互作用は静電的相互作用と比べると弱いので、抗微生物ペプチドは細菌の膜と優先的に相互作用するだろう。
二面偏波式干渉計は、「試験管内」でリン脂質頭部の結合、脂質二重層への挿入、小孔形成、および膜の段階的な破壊を研究し定量するために用いられてきた[27][28]。
抗微生物ペプチドの選択性を調節する方法
細胞選択性を調節するために多くの努力が費やされてきた。たとえば、カツミはペプチドの正味の電荷、ヘリックス、残基当たりの疎水性、疎水性モーメント、および正に荷電した末端ヘリックスの表面に対する角度を含む物理化学的パラメータを変えて最適化し、選択性を調節しようとした。[24] その他には、D-アミノ酸を導入したり、疎水的表面のアミノ酸にフッ素を付加したりするような方法は、二次構造を破壊し、哺乳類の細胞と相互作用するのに必要な疎水的相互作用を減少させると思われている。Wan L Zらはまたプロリンを含むβターン抗微生物ペプチドでのPro→Nlys置換は、細胞内での作用機構を持つ短い細菌細胞選択的な新規抗微生物ペプチドを設計するための有用な戦略であることを見出した。Nadezhda V らは標的表面への直接的なmagaininの結合が非特異的な細胞結合を減らし、サルモネラと大腸菌のような細菌細胞の検出限界を改善することを示唆した。
細菌の耐性
細菌は、さまざまな耐性戦略を使い、抗微生物ペプチドによる死を防ぐ[9]。微生物には、表面の正味の電荷を変化させるものもある。黄色ブドウ球菌は、D-アラニンを細胞質から表面のテイコ酸へ輸送し、塩基性アミノ酸によって引き起こされる正味の負の電荷を減じる[29]。黄色ブドウ球菌は、その陰イオン性の膜をMprFを介してL-リジンで修飾し、正味の正の電荷を増やす[29]。肺炎桿菌のカプセル多糖は抗微生物ペプチドが膜ターゲットと相互作用するのを制限する[30]。リピドAにも変化が起こる。サルモネラ属は、ミリスチン酸の付加により増加したリピドAと2-ヒドロキシミリスチン酸を持つリピドAとの間の疎水的相互作用を増加させ、パルミチン酸の付加によりヘプタアシル化リピドAを形成することにより、外膜の流動性を減少させる。増加した疎水的モーメントにより、抗微生物ペプチドの挿入と小孔形成が遅れる、または阻止される。膜タンパク質を変更させるものもある。いくらかのグラム陰性細菌では、外膜タンパク質の生産を変えることが、抗微生物ペプチドによる殺菌への抵抗に関係している[31]。ATP結合カセット(ABC)トランスポーターは抗微生物ペプチドを取り込み、resistance-nodulation cell-division efflux pumpで排出する[32]。このトランスポーターは両方とも抗微生物ペプチド耐性に関係している。細菌はタンパク質分解酵素を分泌し、それが抗微生物ペプチドを分解し、耐性を持たせているかもしれない。[33]
例
抗微生物ペプチドの例には、 magainin、alamethicin、hydramacin-1、pexiganan、またはMSI-78およびMSI-843とMSI-594のような他のMSIペプチド、polyphemusin、ヒトの抗微生物ペプチドLL-37、ディフェンシン、および protegrinがある。
関連項目
- Peripheral membrane proteins
- カテリシジン(英)
参照文献
- Devine & Bibby 1994
- Kōkin pepuchido no kinō kaimei to gijutsu riyō. Nagaoka, Isao., 長岡功.. Tōkyō: Shīemushīshuppan. (2017). ISBN 9784781312453. OCLC 987660277
- Yeaman & Yount 2003
- Papagianni 2003
- Sitaram & Nagaraj 2002
- Dürr, Sudheendra & Ramamoorthy 2006
- Dhople, Krukemeyer & Ramamoorthy 2006
- Hancock & Rozek 2002
- Brogden 2005
- Daniel J Hirst, Tzong-Hsien Lee, Marcus J Swann, Sharon Unabia, Yoonkyung Park, Kyung-Soo Hahm and Marie Isabel Aguilar, The effect of acyl chain structure and bilayer phase state on the binding and insertion of HPA3 onto a supported lipid bilayer, European Biophysics Journal
- Tzong-Hsien Lee, Christine Heng, Marcus J. Swann, John D. Gehman, Frances Separovic, Marie-Isabel Aguilar, Real time quantitative analysis of lipid disordering by aurein 1.2 during membrane adsorption, destabilisation and lysis, . Biochimica et Biophysica Acta (BBA) - Biomembranes, Volume 1798, Issue 10, October 2010, Pages 1977-1986.
- Amsterdam 1996
- Hunter et al. 2002
- Hoskin & Ramamoorthy 2008
- Mátyus, Kandt & Tieleman 2007
- Langham, Ahmad & Kaznessis 2008
- Hallock, Lee & Ramamoorthy 2003
- Wildman, Lee & Ramamoorthy 2003
- Matsuzaki 2008
- Kitagawa, Norio; Otani, Takahito; Inai, Tetsuichiro (2018-10-23). “Nisin, a food preservative produced by Lactococcus lactis, affects the localization pattern of intermediate filament protein in HaCaT cells”. Anatomical Science International. doi:10.1007/s12565-018-0462-x. ISSN 1447-073X. PMID 30353456.
- “[www.fsc.go.jp/fsciis/attachedFile/download?retrievalId=kai20080131sfc&fileId=109 食品安全委員会]”. 厚生労働省. 2018年12月20日閲覧。
- Hancock & Sahl 2006
- Zasloff 2002
- Matsuzaki et al. 1995
- Chou et al. 2008
- Tennessen 2005
- Lanlan Yu, Lin Guo, Jeak Ling Ding, Bow Ho, Si-Shen Feng, Jonathan Popplewell, Marcus Swann, Thorsten Wohland. Interaction of an artificial antimicrobial peptide with lipid membranes. Biochimica et Biophysica Acta (BBA) - Biomembranes, Volume 1788, Issue 2, February 2009, Pages 333-344, Available online 25 October 2008
- Tzong-Hsien Lee, Kristopher Hall, Adam Mechler, Lisandra Martin, Jonathan Popplewell, Gerry Ronan, Marie-Isabel Aguilar Molecular Imaging and Orientational Changes of Antimicrobial Peptides in Membranes American Peptide Society (2007) Peptides for Youth. Eds. Emanuel Escher, William D. Lubell, Susan Del Valle
- Peschel et al. 1999
- Campos et al. 2004
- China et al. 1994
- Nikaido 1996
- Whitelock et al. 1996
- Amsterdam, D. (1996), “Susceptibility testing of Antimicrobials in liquid media”, in Lorian, V., Antibiotics in Laboratory Medicine (Fourth ed.), Baltimore, Md.: Williams and Wilkins, pp. 52–111
- Brogden, K.A. (March 2005), “Antimicrobial peptides: pore formers or metabolic inhibitors in bacteria?”, Nature Reviews Microbiology 3 (3): 238–250., doi:10.1038/nrmicro1098, PMID 15703760
- Campos, M.A.; Vargas, M.A.; Regueiro, V.; Llompart, C.M.; Alberti, S.; Bengoechea, J.A. (December 2004), Weiser, J.N., ed., “Capsule Polysaccharide Mediates Bacterial Resistance to Antimicrobial Peptides”, Infection and Immunity 72 (12): 7107–7114, doi:10.1128/IAI.72.12.7107-7114.2004, PMC 529140, PMID 15557634 2009年4月27日閲覧。
- China, B.; N'guyen, B.T.; De Bruyere, M.; Cornelis, G.R. (April 1994), “Role of YadA in resistance of Yersinia enterocolitica to phagocytosis by human polymorphonuclear leukocytes”, Infection and immunity 62 (4): 1275–1281, PMC 186269, PMID 8132334 2009年4月27日閲覧。
- Chou, Hung-Ta; Kuo, Tsun-Yung; Chiang, Jung-Chun; Pei, Min-Ju; Yang, Wei-Ter; Yu, Hui-Chun; Lin, Shih-Bin; Chen, Wei-Jung (August 2008), “Design and synthesis of cationic antimicrobial peptides with improved activity and selectivity against Vibrio spp”, International Journal of Antimicrobial Agents 32 (2): 130–138, doi:10.1016/j.ijantimicag.2008.04.003, PMID 18586467
- Dhople, V.; Krukemeyer, A.; Ramamoorthy, A. (September 2006), “The human beta-defensin-3, an antibacterial peptide with multiple biological functions”, Biochimica et Biophysica Acta – Biomembranes 1758 (9): 1499–1512, doi:10.1016/j.bbamem.2006.07.007, PMID 16978580
- Dürr, U.H.N.; Sudheendra, U.S.; Ramamoorthy, A. (September 2006), “LL-37, the only human member of the cathelicidin family of antimicrobial peptides”, Biochimica et Biophysica Acta – Biomembranes 1758 (9): 1408–1425, doi:10.1016/j.bbamem.2006.03.030, PMID 16716248
- Giuliani, A.; Pirri, G.; Nicoletto, S. (March 2007), “Antimicrobial peptides: an overview of a promising class of therapeutics”, Cent. Eur. J. Biol. 2 (1): 1–33, doi:10.2478/s11535-007-0010-5
- Hallock, K.J.; Lee, D.K.; Ramamoorthy, A. (May 2003), “MSI-78, an analogue of the magainin antimicrobial peptides, disrupts lipid bilayer structure via positive curvature strain”, Biophys. J. 84 (5): 3052–3060, doi:10.1016/S0006-3495(03)70031-9, PMC 1302867, PMID 12719236
- Hancock, Robert E.W.; Rozek, A. (2002), “Role of membranes in the activities of antimicrobial cationic peptides.”, FEMS Microbiology Letters 206 (2): 143–149, doi:10.1111/j.1574-6968.2002.tb11000.x, PMID 11814654
- Hancock, Robert E.W.; Sahl, Hans-Georg (2006), “Antimicrobial and host-defense peptides as new anti-infective therapeutic strategies”, Nature Biotechnology 24 (12): 1551–1557, doi:10.1038/nbt1267, PMID 17160061
- Hoskin, D.W.; Ramamoorthy, A. (February 2008), “Studies on anticancer activities of antimicrobial peptides”, Biochimica et Biophysica Acta – Biomembranes 1778 (2): 357–375, doi:10.1016/j.bbamem.2007.11.008, PMC 2238813, PMID 18078805
- Hunter, H.N.; Fulton, D.B.; Ganz, T.; Vogel, H.J. (October 2002), “The solution structure of human hepcidin, a peptide hormone with antimicrobial activity that is involved in iron uptake and hereditary hemochromatosis.”, J Biol Chem 277 (40): 37597–37603, doi:10.1074/jbc.M205305200, PMID 12138110
- Langham, Allison A.; Ahmad, Abdallah Sayyed; Kaznessis, Yiannis N. (April 2008), “On the Nature of Antimicrobial Activity: A Model for Protegrin-1 Pores”, J. Am. Chem. Soc. 130 (13): 4338–4346, doi:10.1021/ja0780380, PMC 2474802, PMID 18335931
- Matsuzaki, Katsumi (2008), “Control of cell selectivity of antimicrobial peptides”, Biochimica et Biophysica Acta – Biomembranes 1788 (8): 1687–92, doi:10.1016/j.bbamem.2008.09.013, PMID 18952049
- Matsuzaki, Katsumi; Ken-ichi, S.; Nobutaka, F.; Koichiro, M. (March 1995), “Molecular Basis for Membrane Selectivity of an Antimicrobial Peptides, Magainin 2”, Biochemistry 34 (10): 3423–3429, doi:10.1021/bi00010a034, PMID 7533538
- Mátyus, Edit; Kandt, Christian; Tieleman, D Peter (2007), “Computer simulation of antimicrobial peptides”, Curr Med Chem 14 (26): 2789–98, doi:10.2174/092986707782360105, PMID 18045125
- Moore, A.J.; Devine,, D.A.; Bibby,, M.C. (1994), “Preliminary experimental anticancer activity of cecropins”, Peptide Research 7 (5): 265–269, PMID 7849420
- Nikaido, H. (October 1996), “Multidrug efflux pumps of gram-negative bacteria”, Journal of Bacteriology 178 (20): 5853–5859, PMC 178438, PMID 8830678 2009年4月27日閲覧。
- Papagianni, M. (September 2003), “Ribosomally synthesized peptides with antimicrobial properties: biosynthesis, structure, function, and applications”, Biotechnol Adv 21 (6): 465–499, doi:10.1016/S0734-9750(03)00077-6, PMID 14499150
- Peschel, A.; Otto, M.; Jack, R.W.; Kalbacher, H.; Jung, G.; Götz, F. (March 1999), “Inactivation of the dlt operon in Staphylococcus aureus confers sensitivity to defensins, protegrins, and other antimicrobial peptides”, Journal of Biological Chemistry 274 (13): 8405–8410, doi:10.1074/jbc.274.13.8405, PMID 10085071
- Sitaram, N.; Nagaraj, R. (2002), “Host-defense antimicrobial peptides: importance of structure for activity”, Curr Pharm Des 8 (9): 727–742, PMID 11945168
- Tennessen, Jacob A. (November 2005), “Molecular evolution of animal antimicrobial peptide: widespread moderate positive selection”, Journal of Evolutionary Biology 18 (6): 1387–1394, doi:10.1111/j.1420-9101.2005.00925.x, PMID 16313451
- Whitelock, J.M.; Murdoch, A.D.; Iozzo, R.V.; Underwood, P.A. (April 1996), “The Degradation of Human Endothelial Cell-derived Perlecan and Release of Bound Basic Fibroblast Growth Factor by Stromelysin, Collagenase, Plasmin, and Heparanases”, Journal of Biological Chemistry 271 (17): 10079–10086, doi:10.1074/jbc.271.17.10079, PMID 8626565
- Wildman, K.A.H.; Lee, D.K.; Ramamoorthy, A. (2003), “Mechanism of Lipid Bilayer Disruption by the Human Antimicrobial Peptide, LL-37”, Biochemistry 42 (21): 6545–6558, doi:10.1021/bi0273563, PMID 12767238
- Yeaman, M.R.; Yount, N.Y. (March 2003), “Mechanisms of antimicrobial peptide action and resistance”, Pharmacological reviews 55 (1): 27–55, doi:10.1124/pr.55.1.2, PMID 12615953
- Brogden, K.A. (March 2005), “Antimicrobial peptides: pore formers or metabolic inhibitors in bacteria?”, Nature Reviews Microbiology 3 (3): 238–250., doi:10.1038/nrmicro1098, PMID 15703760
- Zasloff, Michael (January 2002), “Antimicrobial peptides of multicellular organisms”, Nature 415 (6870): 389–395, doi:10.1038/415389a, PMID 11807545
外部リンク
- A list of Antimicrobial Peptides cataloged from the literature - The Antimicrobial Index
- Antimicrobial peptides: an overview of a promising class of therapeutics Cent. Eur. J. Biol., 2007, 2(1), pp. 1–33
- A good basic overview of cationic peptides at scq.ubc.ca
- Review with helpful links at ejbiotechnology.info
- Antimicrobial Peptide Database at unmc.edu
- AntiBP: Prediction of antibacterial peptides BMC Bioinformatics. 2007 Jul 23;8:263
- AntiBP2: Improved version of antibacterial peptide predictions BMC Bioinformatics. 2010 Jan 18;11 Suppl 1:S19
- DESTAMP Designing of stable antibacterial peptides.
- UMich Orientation of Proteins in Membranes classes/type-3 - Calculated spatial positions of peptides in the lipid bilayer
- Antimicrobial Cationic Peptides - MeSH・アメリカ国立医学図書館・生命科学用語シソーラス(英語)