神経振動子
神経振動子[1](しんけいしんどうし、neural oscillator)[2](オシレーター)[3]は生体における非線形振動を生成する神経細胞、あるいは神経細胞群を指し、それらによって構成された[2]中枢パターン・ジェネレーター[3]、中枢内リズム生成回路[4]、中枢パターン生成器(central pattern generator; CPG)[5] が脊椎動物の脊椎の中に見出され[2]大脳皮質や感覚器からの入力とは独立してリズム活動し[6]自己組織的に運動を生成する[7]神経回路網である[6]。CPG神経回路網は周期的な出力を形成し、心拍、呼吸、歩行、遊泳、這行のように繰り返される筋肉の収縮により形成される行動を制御している[8]。CPGは「感覚入力や上位中枢からの神経指令なしに周期的な運動パターンを生成する神経回路網」と定義されるが[9]、CPGのモデルとして、センサ入力無しでも振動が可能な振動子を考えるグループと、センサ入力があって初めてパターンを生成できる非振動子を考えるグループがある[10]。
脊椎動物の歩行リズムを生成するCPGは脊髄中に存在し、無脊椎動物の神経回路の解析と比較してまったく別個に進化してきたネコとゴキブリの歩行生成系に多くの相似点があることが報告されている[11]。
解剖学的及び生理学的概要
CPGニューロン固有の特性
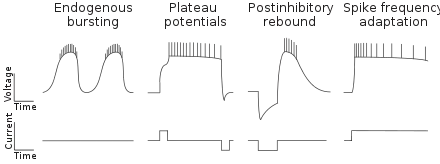
周期的出力を発生するネットワークの構成ニューロンには、長く緩い脱分極のプラトー電位、群発誘導性歩調取り電位、抑制後の電位跳ね返り(post-inhibitory rebound; PIR)、スパイク頻度の適応などの膜特性が見られる[13]。 静止状態のニューロンに外向き電流を加えると繰り返し発火が起きるが、普通は周期的な運動として外に現れることはない。周期的運動として外に現れる例としてアメフラシ腹部神経節の歩調取り電位の発生メカニズムが調べられている[14]。ヤツメウナギ類や両生類の脊髄に存在するCPGを構成するニューロンの同定が試みられた結果、個々のCPGは少なくともグルタミン酸作動性の興奮性下降介在ニューロンとグリシン作動性の抑制性交叉介在ニューロンの二種類の介在ニューロンからなることが分かった[4]。
リズム発生の仕組み
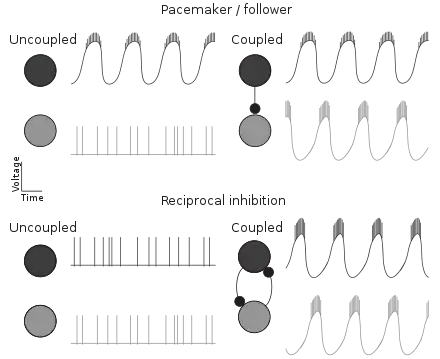
CPGを構成するオシレーターとしては、細胞自体がリズム形成能を持っている場合と、リズム形成能を持っていない個々のニューロンが相互にシナプス結合することで発振作用を現す場合が考えられる[14]。
運動ニューロンを含むオシレーターとして機能する神経回路が発見されたイセエビの口胃神経系の2つのCPGのうち幽門系にはendgeneous bursterが存在するが、この細胞を殺してもリズムが残ることが確かめられ、電気的結合が速い伝達や細胞間の同期化以外に位相の調節に重要な役割を果たしていることが報告された[12]。
ニューラルオシレーターの微分方程式モデルは、ペースメーカー型とネットワーク型に大別することができ、ペースメーカー型としてはファン・デル・ポール振動子やBVP方程式などの2変数からなる非線形振動子があげられ、ネットワーク型はさらに興奮抑制型回路、相互抑制型回路、巡回抑制型回路の三種類に分類できる[15]。
オシレーターとして機能すると以前から考えられていた相互抑制や回帰循環抑制の回路が発見されたヒルの心臓駆動系のオシレーターは、基本的には左右一対のbursting cellが相互抑制回路を形成して、互いに活動状態と静止状態を交代しているものと考えられている[12]。
CPG における相互抑制
自己抑制と疲労効果を持ち、それぞれが関節の屈筋と伸筋を駆動するニューロンを相互抑制的に結合し屈筋と伸筋の変位をニューロンにフィードバックする神経振動子モデルをCPGとしてシミュレーションを行った結果、ネコにおいても観察されるCPGと脚運動の引き込みを再現する[16]。伸筋への指令を司る介在ニューロン群EHC (extensor half center)、屈筋への指令を司る介在ニューロン群FHC (flexor half center)が相互に抑制性結合を持つことで屈曲伸展の交互運動を生み出し、FHC同士も相互抑制性の結合を持っているCPGモデルは、左右の体肢間の周期的な運動出力も説明できる[9]。
CPGニューロンの位置と特定
高次の脳機能を持たない動物であっても移動運動を可能としていることは知られており[9]、脊椎動物の歩行リズムを生成するCPGは脊髄中に存在し、歩行は脳幹(中脳)以下の比較的下位の神経系において自律的に生成されていることが明らかになっている[17]。 嚥下の運動を引き起こすCPGは下位脳幹あるいは脊髄に存在すると考えられている[18]。
歩行パターン生成の神経回路網を実験動物で同定したような方法はヒトでは取れず[19]、 現在も研究されているが細胞レベルでの研究はまだ不十分で[20]、ネコなどの高等動物のCPGがどのような神経回路から構成されているのかは明らかになっていない[17]。
神経修飾
生物のCPGは回路を構成する要素(神経振動子)間の結合荷重を変更することで環境に適した運動を同一の回路から発現させている。もともと存在していて顕在化していなかったシナプス結合が顕在化し独立発振していた各部位が再構成されて協調運動を始める現象は神経修飾物質(neuro- modulator NM)がシナプスの特性を変化させるために発生する現象で神経修飾と呼ばれ、神経修飾により回路構造を変化させて多様な出力パターンを生成する回路を「多型回路(polymorphic circuit)」と呼ぶ[21]。
行動発現に重要な役割を持つシナプス修飾作用によるCPG神経回路の再編成
遊泳パターンの発生と持続には上位中枢 からの入力だけでなく、回路に内在する神経修飾作用が重要な役割を持つことがKatzらのグループによって示された[22]。ホクヨウウミウシ科のトリトニア(Tritoina diomedea)は捕食者であるヒトデの水管や高浸透圧液や塩の結晶が表皮に触れると、忌避応答として定型的な逃避遊泳行動を示す。脳神経節中にある3種類の遊泳介在ニューロンから構成される中枢パターン発生回路の連続した群放電活動が遊泳パターンで、司令ニューロンの同定、セロトニン作動性の神経修飾機構などトリトニアの逃避遊泳を引き起こす中枢パターン発生回路の仕組みは詳細に調べられている[23]。神経修飾物質の効果はCPG回路全体に拡散し[24]、大脳基底核を代表とする報酬と罰に基づく学習を支えるのは神経修飾物質ドーパミン神経系だが[25]、大脳基底核は延髄に存在する嚥下のパターン形成器(CPG)によってプログラムされた咽頭期嚥下の神経機構に何らかの影響を及ぼしていると考えられ、その可能性の一つとして基底核におけるドーパミンの分泌量の低下が、nodose ganglion(節神経節)に存在する迷走神経知覚神経細胞のサブスタンスPの産生を減少させた結果、嚥下や咳などの上気道反射の減弱をまねくことが指摘されている[26]。脊椎動物が状況に応じて複数の歩行パターンを選択することができるのは、CPGの実質的な回路構造が神経修飾物質の作用により変化することによって行われていると考えられている。実際にヤツメウナギにおいて神経修飾物質の働きによってCPGの実質的な回路構造が変化し、複数の遊泳パターンが生成されることが確認されている[27]。
センサリーフィードバック
CPGはセンサー情報を入力されることにより初めて機構 や外界に適した運動パターンを生成することができる[10]。中でも、筋紡錘からの感覚情報の貢献は大きく、歩行中に絶えず変化する筋の長さと張力は運動制御のための有用な情報として活用される。特に股関節の動作とそれに伴う感覚情報はCPGの活動に大きく影響する[30]。ロブスターの幽門回路は多形回路で知られ、センサリーフィードバックにより神経修飾物質を調整し多様な位相パターンを実現する[31]。CPG が生成する周期的な運動指令と、身体の運動を協調させる役割を担う感覚フィードバックの影響は、CPG の存在を仮定する上でも重要となる。具体的には、ヤツメウナギの身体を周期的に外部から運動させるとCPG のリズムはそのリズムに引き込まれ同期する事例や、除脳ネコがトレッドミル上で歩行する際にトレッドミルの速度に応じて歩行パターンを遷移させる事例が、感覚フィードバックとCPG間の強固な連関を示唆している[32]。
一方、CPGが作り出す運動パターンが運動課題や環境条件に適応するために末梢からの感覚フィードバックによって随時調整されていることは、Forssebergによる脊髄化ネコを用いた研究によって示されている。更に柳原による実験ではそれぞれ異なる速度で駆動できる3つのベルトからなるトレッドミルを 上丘の前縁と乳頭体の下縁を結ぶ脳幹で断ち切られ、間脳と中脳の連絡は完全に断たれている除脳ネコを歩行させた。3つのベルトが等速の条件では、健常のネコと同じウォークと呼ばれる標準的な歩行パターンでトレッドミル上を歩行する。歩行しているところを左前脚のベルトだけを他の1.7倍速で駆動する外乱下では、 1回目は各脚の歩行周期および両脚支持相の長さは1歩ごとに非常に大きく変化し、歩行パターンも定常的なものは観察されないが、数分後の休憩をはさんで2回目では数歩でウォークとは異なる新しい定常的な歩行パターンで歩き、3回目には最初からその歩行を行う[33]。
除脳ネコを用いた研究によると、脊椎動物の歩行リズムを生成するCPGは脊髄中に存在し、歩行は中脳以下の比較的低レベルの神経系において自律的に生成され[11]、トレッドミルの速度に応じて歩容が変化し[1]、皮膚感覚刺激に対してリズミックな運動指令の位相をシフトしてリズムをリセットする (位相リセット) ような調整が行われることが知られている[34]。CPGの特性は生物学や神経生理学において活発に調べられ、CPGはセンサ入力なしでもリズムを生成すること、CPGは周期的なセンサ入力に簡単に引き込まれることなどが知られている[17]。
機能
動物の運動には歩行、咀嚼、呼吸、心臓の鼓動、嘔吐といった多くの周期運動が見られる。CPGは動物の周期的運動の殆どを司っていると言われる[35]。
ロコモーション
ロコモーションにおいてリズム生成を司る神経機構につ いては「CPG 派」と「Reflex 派」の 2 流派に大きく分かれ、明確な結論は出ていない。Reflex派は感覚フィードバックがリズム生成の起源という説で、1909 年に Sherrington により提唱された。対するCPG派はリズム生成を担う神経回路は感覚ニューロンなどからの入力を受け取らずフィードフォワード的にリズムを生成しているという説で1911年にBrownが提唱した[32]。
昆虫では古くからバッタの飛翔や歩行などの研究から. CPGの存在が知られてきた[20]。脊椎動物では、除脳ネコを用いた研究が行われ、歩行リズムを生成するCPGが脊髄中に存在することが明らかになっている[11]。 ヤツメウナギは生体での実験がネコよりも容易であるので脊髄におけるCPGの解明に多く用いられ、Grillnerらによりその電気化学的なメカニズムまで明らかにされている[16]。
ヤツメウナギの脊髄を身体から取り出し、その神経活動を記録した研究によれば、身体から取り出した脊髄の神経活動は、身体内に存在したときと非常に似た発火パターンを示したことから、この発火パターンは Fictive locomotion(Fictiveは Fiction の形容詞)とよばれている。このような Fictive lcoomotion はサンショウウオなどを含む様々な生物でも発見されており、CPGの存在を示唆する生物学的証拠となっている[32]。 EkebergはヤツメウナギのCPGをモデル化し、神経回路モデルと筋骨格系モデルを結合したシミュレーションにより、ヤツメウナギと同等の遊泳運動が実現可能なことや、非対称な入力により方向転換が可能なことなどを示している.Ekebergの神経モデルとは異なるが、Ayersらはロブスター型ロボット用に開発した神経モデルをヤツメウナギ型ロボットの遊泳運動に応用した。ヤツメウナギの運動解析結果と同様な波を前後に送ることにより前進・後進・方向転換などを行うことができる。胴体は5つのセグメントから構成され、形状記憶合金により駆動される。センサ情報に基づく適応(行動の選択)は今後の課題となっている[16]。 CPG の活動を統御する上位の神経機構として、脳幹の特定の領域であるMLR(Mesencephalic Locomotor Region)への電気刺激が CPG によるロコモーション生成を誘発するという証拠が報告されている[32]。
ヒトにおいても新生児や胎児で脚のリズミックな運動が起こることから歩行パターンを生成するリズム発生回路網の存在が示唆され[19]、 多賀はCPGとして松岡により提案された神経振動子を用い、矢状面内の二足歩行運動シミュレーションを行った。二足歩行モデルの各関節の駆動を行う神経振動子を適切に結合することにより、腰・膝・足首の関節は神経振動子の振動に伴って二足歩行運動を生成する[16]。 小野らは脚式移動を適応可能な振動と考え、受動歩行可能な二足歩行モデルのロール運動について、横方向にスライドする可動質量を駆動するアクチュエータ出力に支持脚ロール角度をフィードバックすることにより自励 (self-exited) 振動系を構成している。また、胴体のないピッチ平面二足歩行モデルにおいて,遊脚・膝関節角度を腰関節トルクにフィードバックし,受動膝関節のクラッチを併用することにより自励振動型の二足歩行が可能である。一方、強制振動自体は適応機能を持たないので,外部環境に合わせるためには同調(synchronization, entrainment) 機能が必要であり,これは相互引き込み (mutual entrainment) 機能を持つ CPG (Central Pattern Generator) による振動生成・適応に相当する[36]。
Calancieらは、頸髄不全損傷者の麻痺下肢に周期的かつ屈筋-伸筋の交替性の不随意性筋活動が生じることを観察し、この運動は歩行トレーニングを積極的に開始した1週間後に生じ、それ以前は全く観察されなかったとして、この現象が脊髄CPGに依るものであると主張した。同様にDobkinらは脊髄不全損傷者が仰臥位姿勢をとる際に、股関節の伸展に続いて左右の脚に屈曲-伸展の交替性の活動が生じること、さらにこれらの活動は股関節を屈曲位に変換した際に停止することを報告している。これらの研究は実験的介入手段を取らない、いわば臨床報告であるが、ヒト脊髄CPGの存在可能性について実験的に検討した例として、脊髄損傷者を対象として脊髄CPGの特性を検討したVolker Dietzのグループは、脊髄損傷者をトレッド上に立たせ、麻痺下肢を歩行運動を模して受動的に動作させた際に歩行周期に同調した筋活動歩行様筋活動(locomotor-like muscle activity)が発現することを観察しており、これが歩行運動に伴う求心性感覚入力と脊髄CPGの連関によって発現するものと考え、Dimitrijevicらは、脊髄損傷者の脊髄硬膜外に電極を刺入し、電気刺激を課すことによって麻痺下肢に周期的筋活動を誘発できることを発見し「課された電気刺激が持続的なものであるにもかかわらず、誘発される筋活動は周期性を帯びたものであることから、この活動がCPGを介したものである」と結論した[9]。
哺乳類においてロコモーション生成を誘発する神経機構
ネコなどの哺乳類のCPGがどのような神経回路から構成されているかは明らかではないが[17]、CPG の活動を統御する上位の神経機構として、脳幹の特定の領域であるMLR(Mesencephalic Locomotor Region)への電気刺激がCPG によるロコモーション生成を誘発するという証拠が報告されている[35]。
基底核の出力核である黒質 (SNr) からの GABA 作動性出力は脚橋被蓋核 (PPN) 領域、中脳歩行誘発野 (MLR) へ投射している。PPN領域への電気刺激は筋緊張減弱を誘発し、MLR領域への電気刺激はロコモーションを誘発する。このことから、PPNからの下行性投射により筋緊張が制御されること、MLRからの下行性投射は延髄網様体脊髄路を介してCPG を駆動しロコモーションを制御することが示唆される[37]。
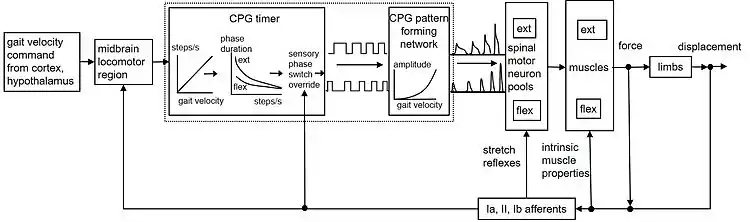
大脳基底核は脳の中心部近傍に位置する複数の神経核の総称で、基底核からの出力は脳幹のMLRに直接投射しており、歩行運動の発現や筋緊張の調節などの役割を持つ。中でも、筋紡錘からの感覚情報は入力はFHCに選択的な神経連絡を持ち、歩行中に絶えず変化する筋の長さと張力を感知し、脊髄のみならず上位中枢に末梢の状況を伝達することで運動制御のための有用な情報として活用される。歩行に参画する多数の関節のうち、股関節の動作とそれに伴う感覚情報はCPGの活動に大きく影響する。例えば、立脚期後半に股関節が伸展される際の筋紡錘からの求心性入力は、遊脚期への位相転換を担う股関節屈筋群の活動を喚起するゴルジ腱器官は筋収縮や荷重に応答する力学的受容器で関節運動に伴う荷重の入力はEHCに選択的な神経連絡を持ち、立脚-遊脚サイクルに応じた荷重情報を検知して立脚期に屈筋群を抑制するなどして歩行のリズム形成に大きく貢献している[38]。
神経振動子の数理モデルを用いた直立二足歩行のシミュレーションによれば、神経振動子のフィードバック式を通常歩行から変更することによってナンバ (歩行法)も再現できるという結果が出ている[39]。
嚥下
咽頭期嚥下(嚥下第2期の運動)が極めて再現性が高いのは、一連の嚥下運動が単なる反射の連続ではなく延髄に存在する嚥下のCPGによって形成されたパターンであるからだと考えられている。このCPGは上喉頭神経あるいは舌咽神経刺激の刺激によって一定の"閾値"を以て活性化され、またこれらの延髄内投射が孤束核間質亜核に集中していることから、咽頭期嚥下のCPGを構成するニューロン群の一部は孤束核あるいはその近傍に存在することが想定できる[41]。
認知や記憶
ニューラルネットワークの上ではCPGは連想記憶の連続的な想起と考えることができ[42]、CPG様回路は運動だけでなく、認知や記憶を司る回路にそのメカニズムが用いられている。例えば海馬のエピソード記憶の記銘は同期引込みの原理で実現されている[25]。
大脳基底核経路の仕組み : 抑制後のリバウンド
鳴鳥の大脳基底核の一部である淡蒼球細胞は急激な発火頻度の低下によって視床の細胞に抑制後のリバウンド発火を生じさせることで視床を通して大脳新皮質に情報を伝えていることが示唆されている。哺乳類の淡蒼球の場合は視床を単純に脱抑制させると考えられているが[43]、パーキンソン病の研究からは視床下核の細胞が抑制後リバウンド発火の特性を示し視床下核–淡蒼球外節のフィードバックループが一種の反響回路を形成して同期振動を示すことが指摘され[44]、鳴禽類と哺乳類との間で大脳基底核経路の機能に類似性が認められる[45]。
無脊椎動物における機能
定型的行動における周期的運動によるCPGのはたらきは軟体動物のほか、エビやカニ、ヒルなどの動物でよく研究されている。昆虫ではバッタの飛翔や歩行などの研究から、その存在は古くから知られていた。CPG の中に運動ニューロンが含まれる場合があることも知られ、行動として観察できる[20] 。タバコスズメガおよびバッタでは、食道下神経節(subesophageal ganglion: SG)から脳や他の神経節からの下降性神経や感覚細胞からの求心性神経をすべて除いた状態でも、神経伝達に関わる薬剤投与等によって周期的活動が記録できることから、咀嚼運動を形成するCPGはSG内にあることが分かっている[46]。 例えばロブスターを用いた研究では胃から腸に食べ物を送る際に活動する幽門の運動について、リズム生成に関わる神経細胞群やそのネットワークについて同定されてきた[12]。通常時はロブスターの食道・幽門・噴門の神経振動子はそれぞれ非干渉に独自の発振を行っているが、食べ物を飲み込む時は神経修飾によって即座に再構成し連携運動を始める[21]。
参照
- 長谷和徳 et al. 2006, p. 3594.
- 張明 et al. 2003, p. 77.
- 小松明 1985, p. 12.
- 植松一眞 2004, p. 277.
- 谷口佳那子, 小池千恵子 & 北野勝則 2018, p. 685.
- 多賀厳太郎 2002, p. 10.
- 多賀厳太郎 2002, p. 12.
- 水谷賢史 & 岡浩太郎 2004, p. 18.
- 河島則天 2009, p. 9.
- 木村浩 & 張祖光 2005, p. 603.
- 木村浩 2001, p. 70.
- 小松明 1985, p. 14.
- 田崎健郎 1995, p. 224.
- 小松明 1985, p. 13.
- 多賀厳太郎, 山口陽子 & 清水博 1992, p. 134.
- 木村浩 2001, p. 71.
- 福岡泰宏 & 木村浩 2007, p. 141.
- 梅崎俊郎 2007, p. 216.
- 多賀厳太郎, 山口陽子 & 清水博 1992, p. 129.
- 朝岡潔 & 佐々木謙 2011, p. 152.
- 藤井亮暢, 石黒章夫 & Peter Eggenberger Hotz 2004, p. 479.
- 櫻井全 2018, p. 87.
- 櫻井全 2018, p. 86.
- 藤井亮暢, 石黒章夫 & Peter Eggenberger Hotz 2002, p. 983.
- 我妻広明 2015, p. 657.
- 梅崎俊郎 2007, p. 219.
- 中田一紀, 浅井哲也 & 雨宮好仁 2002, p. 2.
- 藤井亮暢, 石黒章夫 & Peter Eggenberger Hotz 2002, p. 981-982.
- 牧野悌也 2013, p. 29.
- 河島則天 2009, p. 10.
- 冨田望 & 矢野雅文 2009, p. 683.
- 大脇大 2019, p. 127.
- 福士宏紀 2002, p. 22-23.
- 青井伸也 2015, p. 280.
- 大脇大 2019, p. 15.
- 木村浩 & 張祖光 2005, p. 602.
- 冨田望 & 矢野雅文 2009, p. 682.
- 河島則天 2009, p. 11.
- 林祐一郎 et al. 2015, p. 9.
- 杉山庸一郎 2020, p. 88.
- 進武幹 1994, p. 296.
- 永嶋史朗 2006, p. 739.
- 小島哲 2012, p. 66.
- 久保田繁 & Jonathan E. Rubin 2013, p. 101.
- 小島哲 2012, p. 67.
- 朝岡潔 & 佐々木謙 2011, p. 156-157.
- 本宮潤一 2016, p. 129.
外部リンク
- 小松明「無脊椎動物における周期性運動の神経機構」『動物生理』第2巻第1号、日本比較生理生化学会、1985年、12-18頁、doi:10.3330/hikakuseiriseika1984.2.12、ISSN 02896583、NAID 130004339234、OCLC 9647605842、CRID 1390282679646823424、2023年7月15日閲覧。
- 多賀厳太郎、山口陽子、清水博「生物をデザインする : 二足歩行運動の神経筋骨格系モデル」『物性研究』第59巻第2号、物性研究刊行会、1992年、125-153頁、CRID 1050282676915163392、hdl:2433/94989、ISSN 05252997、NAID 110006455027、OCLC 957844805、NDLJP:10937031、2023年7月22日閲覧。
- 進武幹「Ⅲ.延髄における嚥下のパターン形成機構」『耳鼻と臨床』第40巻2Supplement1、耳鼻と臨床会、1994年、296-312頁、doi:10.11334/jibi1954.40.2Supplement1_296、ISSN 0447-7227、NAID 10008577046、OCLC 9660183444、CRID 1571135649653759360、2023年7月15日閲覧。
- 田崎健郎「甲殻類の口胃神経系 II その細胞レベルの機構」『比較生理生化学』第12巻第3号、日本比較生理生化学会、1995年、223-238頁、doi:10.3330/hikakuseiriseika.12.223、ISSN 09163786、NAID 10029594085、OCLC 9657123010、CRID 1390282679644946304、2023年7月22日閲覧。
- 木村浩「神経モデルを用いた生物型移動ロボット研究の紹介」『日本神経回路学会誌』第8巻第2号、日本神経回路学会、2001年、70-76頁、doi:10.3902/jnns.8.70、ISSN 1340766X、NAID 10010424520、OCLC 9660678205、CRID 1390001204463330560、2023年7月15日閲覧。
- 多賀厳太郎「解説 視覚誘導歩行における脳神経系・身体・環境の動的カップリング」『システム・制御・情報』第46巻第1号、システム制御情報学会、2002年、9-14頁、doi:10.11509/isciesci.46.1_9、ISSN 09161600、NAID 110003891988、OCLC 9647534369、国立国会図書館書誌ID:6040808、2023年7月15日閲覧。
- 中田一紀、浅井哲也、雨宮好仁「生物規範型の移動運動を制御するアナログCMOS回路--リズム協調運動を制御するCPGの集積回路化」『電子情報通信学会技術研究報告』第102巻第430号、電子情報通信学会、2002年、103-110頁、CRID 1520290883633959936、ISSN 09135685、NAID 110003232231、OCLC 5174375321、国立国会図書館書誌ID:6402699、2023年7月16日閲覧。
- 福士宏紀「モーターコントロールからみた歩行」『理学療法科学』第17巻第1号、理学療法科学学会、2002年、19-24頁、doi:10.1589/rika.17.19、ISSN 13411667、NAID 10026626683、OCLC 9658808374、国立国会図書館書誌ID:6241709、2023年7月16日閲覧。
- 藤井亮暢、石黒章夫、Peter Eggenberger Hotz「神経修飾機構を有するCPG回路モデルを用いた歩行生成」『計測自動制御学会論文集』第38巻第11号、計測自動制御学会、2002年、981-989頁、doi:10.9746/sicetr1965.38.981、ISSN 04534654、NAID 10026358846、OCLC 5171192681、国立国会図書館書誌ID:6361614、2023年7月16日閲覧。
- 張明、光井輝彰、浅井博次、杉山正晴「「ながら」の歩行制御アルゴリズムの開発」『岐阜県生産情報技術研究所研究報告』第5号、岐阜県生産情報技術研究所、2003年、77-79頁、ISSN 13455923、NAID 40006423350、OCLC 5180836144、国立国会図書館書誌ID:7097554、2023年7月16日閲覧。
- 植松一眞「受賞者総説(進歩賞) 魚類中枢神経系の発達と機能に関する生理学的研究」『日本水産学会誌』第70巻第3号、日本水産学会、2004年、276-279頁、doi:10.2331/suisan.70.276、ISSN 00215392、NAID 110003145719、OCLC 5181308733、国立国会図書館書誌ID:6969609、2023年7月15日閲覧。
- 水谷賢史、岡浩太郎「ミミズにおける周期的活動(這行行動)を形成するメカニズムの解明」『バイオメカニズム学会誌』第28巻第1号、バイオメカニズム学会、2004年、18-21頁、doi:10.3951/sobim.28.18、ISSN 02850885、NAID 10013608682、OCLC 5171658292、国立国会図書館書誌ID:6874528、2023年7月15日閲覧。
- 藤井亮暢、石黒章夫、Peter Eggenberger Hotz「多型的なCPG回路モデルによる2脚ロボットの実時間行動遷移」『日本ロボット学会誌』第22巻第4号、日本ロボット学会、2004年、478-484頁、doi:10.7210/jrsj.22.478、ISSN 02891824、NAID 10012928357、OCLC 5176162108、国立国会図書館書誌ID:6950362、2023年7月16日閲覧。
- 木村浩、張祖光「脚式移動におけるCPG(Central Pattern Generator)の役割--適応的な歩行・走行の統一的生成に向けて」『計測と制御』第44巻第9号、計測自動制御学会、2005年、602-608頁、doi:10.11499/sicejl1962.44.602、ISSN 04534662、NAID 40006914651、OCLC 9655860676、国立国会図書館書誌ID:7483782、2023年7月15日閲覧。
- 長谷和徳、中山淳、神谷陽介、大日方五郎「ヒトの静止立位姿勢から定常歩行運動に至る遷移過程の運動シミュレーション」『日本機械学会論文集. C編』第72巻第723号、日本機械学会、2006年、3593-3600頁、doi:10.1299/kikaic.72.3593、ISSN 03875024、NAID 130004236257、OCLC 9655845065、国立国会図書館書誌ID:8590601、2023年7月15日閲覧。
- 永嶋史朗「双線形時間遅れニューラルネットワークによるロボットソフトウェアシステム」『日本ロボット学会誌』第24巻第6号、日本ロボット学会、2006年、735-746頁、doi:10.7210/jrsj.24.735、ISSN 02891824、NAID 10018207591、OCLC 5176171758、国立国会図書館書誌ID:8067846、2023年7月16日閲覧。
- 福岡泰宏、木村浩「4足ロボットの生物規範型不整地適応動歩行--自立型「鉄犬2」による屋外歩行の実現」『日本ロボット学会誌』第25巻第1号、日本ロボット学会、2007年、138-154頁、doi:10.7210/jrsj.25.138、ISSN 02891824、NAID 10018695665、OCLC 5176173526、国立国会図書館書誌ID:8635938、2023年7月15日閲覧。
- 梅崎俊郎「嚥下の神経機構」『高次脳機能研究』第27巻第3号、日本高次脳機能障害学会、2007年、215-221頁、doi:10.2496/hbfr.27.215、ISSN 13484818、NAID 130004467590、OCLC 9658459331、CRID 1390282680181532928、2023年7月16日閲覧。
- 河島則天「歩行運動における脊髄神経回路の役割」『国立障害者リハビリテーションセンター研究紀要』第30号、国立障害者リハビリテーションセンター管理部、2009年、9-14頁、CRID 1520009408420097920、ISSN 21869782、NAID 40019200777、OCLC 5180700273、NDLJP:9980402、2023年7月15日閲覧。
- 冨田望、矢野雅文「二足歩行運動のリアルタイム環境適応機構」『計測と制御』第48巻第9号、計測自動制御学会、2009年、681-686頁、doi:10.11499/sicejl.48.681、ISSN 04534662、NAID 10025524308、OCLC 5171357359、国立国会図書館書誌ID:10437019、2023年7月17日閲覧。
- 朝岡潔、佐々木謙「昆虫の味覚と摂食行動の神経基盤」『蚕糸・昆虫バイオテック』第80巻第3号、日本蚕糸学会、2011年、151-162頁、doi:10.11416/konchubiotec.80.3_151、ISSN 18810551、NAID 130004491436、OCLC 9658185216、国立国会図書館書誌ID:023600520、2023年7月16日閲覧。
- 小島哲「小鳥のさえずり学習の神経機構 : 大脳基底核経路と強化学習モデル」『比較生理生化学』第29巻第2号、日本比較生理生化学会、2012年、58-69頁、CRID 1390001204668619648、doi:10.3330/hikakuseiriseika.29.58、ISSN 09163786、NAID 10030727684、OCLC 5182304930、国立国会図書館書誌ID:023678978、2023年7月22日閲覧。
- 牧野悌也「時空間パターン生成による情報処理」『日本神経回路学会誌』第20巻第1号、日本神経回路学会、2013年、28-31頁、doi:10.3902/jnns.20.28、ISSN 1340766X、NAID 10031163978、OCLC 9660919033、CRID 1390001204467233408、2023年7月17日閲覧。
- 久保田繁、Jonathan E. Rubin「パーキンソン病における大脳基底核のバースト振動」『日本神経回路学会誌』第20巻第3号、日本神経回路学会、2013年、100-107頁、doi:10.3902/jnns.20.100、ISSN 1340766X、NAID 10031195266、OCLC 9660546952、CRID 1390001204465971712、2023年7月22日閲覧。
- 青井伸也「ヒトの適応的な歩行を生み出す低次元構造と感覚-運動協調 : 運動学・筋シナジーと位相リセットの機能と応用」『計測と制御』第54巻第4号、計測自動制御学会、2015年、278-283頁、doi:10.11499/sicejl.54.278、ISSN 04534662、NAID 130005071703、OCLC 5824366593、国立国会図書館書誌ID:026333809、2023年7月15日閲覧。
- 我妻広明「海馬が担う高次機能とシミュレーション手法の展望」『人工知能』第30巻第5号、人工知能学会、2015年、652-664頁、doi:10.11517/jjsai.30.5_652、ISSN 21882266、NAID 110009985470、OCLC 9648202510、国立国会図書館書誌ID:026712618、2023年7月16日閲覧。
- 林祐一郎、長谷和徳、内藤尚、西澤教之「神経振動子のフィードバック式変化によるナンバ歩行様式の生成と評価」『日本機械学会論文集』第81巻第824号、日本機械学会、2015年、1-11頁、doi:10.1299/transjsme.14-00644、ISSN 2187-9761、NAID 130005066591、OCLC 9655339535、CRID 1390001205515666176、2023年7月22日閲覧。
- 本宮潤一『神経振動子を用いたアクティブ動吸振器の設計と特性解析』 甲第、788号、京都工芸繊維大学、2016年、1-302頁。hdl:10212/2314。 NAID 500001037236。OCLC 9660294510。NDLJP:10958824。2023年7月22日閲覧。
- 谷口佳那子、小池千恵子、北野勝則「Symposium Review 病変網膜における自発振動活動発生メカニズム」『薬学雑誌』第138巻第5号、日本薬学会、2018年、685-692頁、doi:10.1248/yakushi.17-00200-3、ISSN 00316903、NAID 130006729440、OCLC 9647546640、PMID 29710014、国立国会図書館書誌ID:029035541、2023年7月15日閲覧。
- 櫻井全「ウミウシ遊泳行動の神経回路機構における相同性と多様性」『比較生理生化学』第35巻第2号、日本比較生理生化学会、2018年、85-92頁、doi:10.3330/hikakuseiriseika.35.85、ISSN 09163786、NAID 130007434400、OCLC 9657510862、国立国会図書館書誌ID:029192965、2023年7月16日閲覧。
- 大脇大「動物の歩容遷移を再現する4脚ロボット」『日本ロボット学会誌』第37巻第2号、日本ロボット学会、2019年、126-131頁、doi:10.7210/jrsj.37.126、ISSN 02891824、NAID 130007616918、OCLC 9660678205、国立国会図書館書誌ID:029578865、2023年7月15日閲覧。
- 杉山庸一郎「動物実験モデルによる嚥下基礎研究の現状と展望」『喉頭』第32巻第2号、日本喉頭科学会、2020年、87-92頁、doi:10.5426/larynx.32.87、ISSN 09156127、NAID 130008036997、OCLC 9648133023、CRID 1390287982964984576、2023年7月15日閲覧。
神経動物行動学 | |
|---|---|
| コンセプト | |
| 人物 | |
| メソッド | |
| |
