ヒパクロサウルス
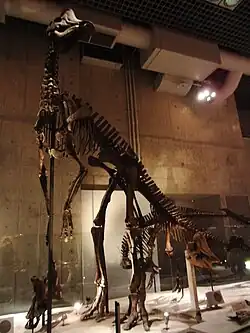
ヒパクロサウルス(Hypacrosaurus "最高に近いトカゲ" [ギリシャ語 υπο-、hypo- = 〜より少ない + ακρος、akros 高い]ティラノサウルスとほぼ同じ大きさであるため[1][2])はコリトサウルスに似たカモノハシ恐竜の属である。コリトサウルスの様に、高く中空で丸い鶏冠を持っていたが、コリトサウルスほど大きくまっすぐではなかった。カナダ、アルバータ州とアメリカ、モンタナ州の後期白亜紀 (約7,500万~6,700万年前)の期間に2種が知られ[3]、少なくとも北米の化石の多い中空の鶏冠を持つカモノハシ恐竜としては最新の属であった。1990年代に H. stebingeri の巣と卵と孵化したての子供が記載されるまでは目立たない属であった。
| ヒパクロサウルス | |||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
 | |||||||||||||||||||||||||||||||||||||||
| 地質時代 | |||||||||||||||||||||||||||||||||||||||
| 中生代後期白亜紀 (約7,500万~6,700万年前) | |||||||||||||||||||||||||||||||||||||||
| 分類 | |||||||||||||||||||||||||||||||||||||||
| |||||||||||||||||||||||||||||||||||||||
| 学名 | |||||||||||||||||||||||||||||||||||||||
| Hypacrosaurus Brown, 1913 | |||||||||||||||||||||||||||||||||||||||
| シノニム | |||||||||||||||||||||||||||||||||||||||
| 種 | |||||||||||||||||||||||||||||||||||||||
特徴
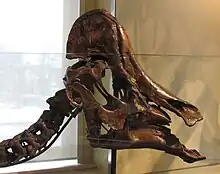
ヒパクロサウルスは高い棘突起と鶏冠によって他の中空の鶏冠を持つカモノハシ恐竜(ランベオサウルス亜科)と最も容易に識別できる。神経棘は椎骨の頂点から突出し、背中では各々の椎骨の椎体の5-7倍の高さがあり[4] 、背中の高い側面像を与えている。頭骨の鶏冠はコリトサウルスのものに似ているが、頂点に向かってより尖っており、高くなく横方向に広く、後部に骨質の小さな尖りがある。ランベオサウルス科では珍しく鶏冠の空気の通り道がS字カーブをなしていない(少なくともH. altispinusではなしていない)[5]。体長9.1m [4]、体重4 t程度と見積もられている[6]。骨盤の詳細にいくつか特徴があるものの[7]、たいていのカモノハシ恐竜のように骨格には他に特に顕著な点はない。他のカモノハシ恐竜のように、二足歩行/四足歩行で植物食であった。H. altispinus と H. stebingeri の2種が知られるが、H. stebingeri が先立つランベオサウルスから後のヒパクロサウルスへの間の移行種 であると記述されるように、特異な特徴であり典型的な方法では区別されない[8]。H. stebingeri の成体の頭骨の写真は H. altispinus と非常に良く似た動物に見える。
分類
ヒパクロサウルスはハドロサウルス科ランベオサウルス亜科であり、頭骨の特徴からそのように認識されている[9]。 ジャック・ホーナーおよびフィル・カリ-(1994)で H. stebingeri はランベオサウルスから H. altispinus への移行であると示唆されたり[8]、Michael K. Brett-Surman (1989)でヒパクロサウルスとコリトサウルスが同属であると示唆されるように[10]、ランベオサウルス科の中でもランベオサウルスとコリトサウルスに近縁である[6]。これらの属、特にコリトサウルスとヒパクロサウルスは"ヘルメットをかぶった"もしくは"頭巾をかぶった"ランベオサウルス亜科の分枝とみなされ、非公式に作られたランベオサウルス族(Lambeosaurini)というクレードを形成するとされる。2004にSuzuki et al.によるニッポノサウルスの再記載でニッポノサウルスと H. stebingeri の緊密な関係が発見され、ヒパクロサウルスは側系統かも知れないと示されたが[11] 、後にこの案はランベオサウルス亜科のより包括的な再解析により却下され、ヒパクロサウルスの2種はニッポノサウルス抜きでクレードを形成し、コリトサウルス、オロロティタンとより近縁であることが示された[12]。
発見と歴史
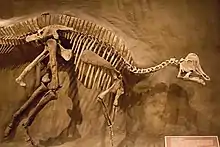
ヒパクロサウルスのタイプ標本は1910年バーナム・ブラウンによりアメリカ自然史博物館のために収集された[7]。この化石はいくつかの椎骨と部分的な骨盤を含む頭部を含まない部分骨格(AMNH 5204)であり、カナダ、アルバータ州、Tolman Ferry近郊のレッドディア川沿いの今日ではホースシューキャニオン累層(上部白亜系マーストリヒチアン初期))として知られる岩盤に由来する。ブラウンはこれらの化石を他の体骨格の骨と組み合わせ、1913年にサウロロフスに似たものだと考慮して新属を記載した[1] 。この時点では頭骨は知られていなかったが、すぐに2つの頭骨が発見され記載された[9]。
この期間に、小さな中空の鶏冠を持つカモノハシ恐竜の化石がいくつか各々の属と種として記載された。ヒパクロサウルスの歴史の説明においてこれらの最初のものはケネオサウルス・トルマネンシス(Cheneosaurus tolmanensis)であり、これはホースシュー・キャニオン累層由来の頭骨、各種肢の骨、椎骨、骨盤の骨に基づく[13] 。まもなくして、リチャード・スワン・ルルとNelda Wrightはモンタナ州のツー・メディシン累層由来のアメリカ自然史博物館の骨格(AMNH 5461)をプロケネオサウルス(en)の標本として同定した[14]。これらや他のタクサはピーター・ドッドソンが”ケネオサウルス”は他の確立したランベオサウルス亜科の属の幼体かもしれないと示唆する1970年代までは正当な属であると受け入れられていた。ドッドソンはダイナソーパーク累層の属であるコリトサウルスとランベオサウルス以前の属に主に関心を持っていたが、ケネオサウルスは同時代のHypacrosaurus altispinusの幼若個体により構成されることが判明すると示唆した[15]。この案は公式に検討されたわけではないが、受け入れられるようになった[6] 。ツー・メディシンのプロケネオサウルスはその間、ドッドソンが研究した他のプロケネオサウルスとは良い理由で、全く違うものになった。これは1994年まで名づけられなかった種 H. stebingeri にはるかに良く似ていた[8]。
種
タイプ種である H. altispinus は幼年から成体の個体に由来する5-10の間接した頭骨と付随した骨格により知られる。H. stebingeri は胚から成体にいたるまでの不確定だがかなり多数の個体により知られる[6]。Suzuki et al.2004は H. altispinus と H. stebingeri は他の既知のハドロサウルス類 を除外して自然群を形成するというのは誤りかもしれないという仮説を述べた。系統解析によりニッポノサウルスは H. stebingeri と H. altispinus よりも H. altispinus に近縁であると発見した[11] 。しかしながらこれはEvans and Reisz (2007)により却下された[12]。 新しい種 Hypacrosaurus stebingeri はモンタナ州とアルバータ州を横切るGlacier Creekのツーメディシン累層(上部白亜系)上部カンパニアンの最上部から見つかった孵化したばかりの子供、卵や巣などを含む様々な化石に基づいて命名された。これはハドロサウルス類の既知の単一種の赤ん坊の骨格標本の集合としては最大である[8]。
古生態
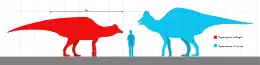 人間との大きさ比較。
青色は H. altispinus, 赤色は H. stebingeri。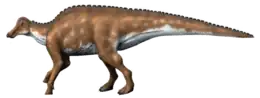 復元図
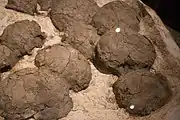 ヒパクロサウルスの巣の化石
H. altispinus は以下のようなホースシュー・キャニオン累層恐竜とともに生息していた、ハドロサウルス科のエドモントサウルス、サウロロフス、ヒプシロフォドン科(en)のパルクソサウルス、アンキロサウルス科のエウオプロケファルス、ノドサウルス科のエドモントニア、角竜類のモンタノケラトプス、アンキケラトプス、アリノケラトプスおよびパキリノサウルス、パキケファロサウルス科のステゴケラス、ダチョウ恐竜のオルニトミムス、ストルティオミムス、トロオドン科やドロマエオサウルス科を含む良くわかっていない様々な小型獣脚類、そしてティラノサウルス類のアルバートサウルス、ダスプレトサウルス[16] 。この層由来の恐竜はしばしばエドモントニアンとして知られ、上下の地層のものとは異なっている[17] 。白亜紀の大部分において北アメリカの中央部を覆った西部内陸海路の海進により、ホースシュー・キャニオン累層は著しく海洋の影響を受けていたと解釈される。[17] H. altispinus はより内陸部にいることを好んだのかもしれない。 わずかに古い時代であり、H. stebingeri の生息地であったツーメディシン累層では有名な巣を作るハドロサウルス類のマイアサウラや、トロオドン科のトロオドンなどの恐竜の巣や卵、幼体の化石で大変有名である。ティラノサウルス科のダスプレトサウルス、カエナグナトゥス科(en)のキロステノテス、ドロマエオサウルス科のバンビラプトルやサウロルニトレステス、曲竜類のエドモントニアやエウオプロケファルス、ヒプシロフォドン科のオロドロメウス、ハドロサウルス類のプロサウロロフス、そして角竜のアケロウサウルス、ブラキケラトプス、エイニオサウルス、スティラコサウルスも生息していた[16] この層は恐竜公園層よりも西部内陸海路から離れ、高く乾燥していた[18]。
純古生物学
ヒパクロサウルスは、ハドロサウルス類であり、二足歩行/四足歩行の草食動物であり、さまざまな植物を食べたであろう。咀嚼に類似の磨り潰し運動を可能にする洗練された頭骨を持ち、歯は継続的に抜け替わり、何百もの歯がつまったデンタルバッテリーに詰め込まれていて、使用される歯は常にそのうちの一部のみだった。植物は広いくちばしで刈り込まれ、頬に似た構造の顎の中に広げられたのだろう。摂食は地上から4 m程度の高さで行われたようである[6]。」
巣と成長
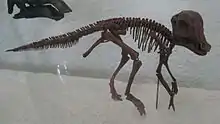
H. stebingeri は短径18.5 cm 長径20 cmのほぼ球形の卵を生み、中には体長60 cmほどの胚が入っていた。孵化したばかりの子供は体長1.7 mほどであった。胚や幼若な固体はのちに鶏冠を形成するわずかな骨の膨らみがある深い頭骨を持っていた[8]。骨の成長線(木の年輪に似たもの)の量に基づいた年毎の成長はアリゲーターより早く、走鳥類に匹敵するほどであった[19]。Lisa Cooperらの研究によると H. stebingeri は2,3年で性的成熟し、10-12年で最大サイズに達したようである。仮定上の性的成熟時の大腿骨の円周は最大サイズ時の40%である。H. stebingeri の成長率の仮定は、アルバートサウルスやティラノサウルスなどのティラノサウルス類(ヒパクロサウルスの捕食者)のものをしのいだ。急速に成長するヒパクロサウルスは防御に十分な大きさに到達するための機会が十分にあり、早期に生殖が始まることも捕食動物に対して有利であったであろう[20]。H. stebingeri の孵化したばかりの子供の頭骨から二次軟骨が発見されている[21]。
鶏冠の機能
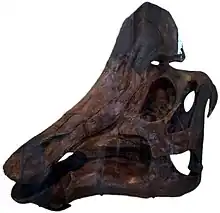
ヒパクロサウルスの中空の鶏冠は個体が性別や種を認識するための視覚信号や音の共鳴室になるなど、社会的な機能をもっていた可能性が高い[6]。鶏冠は鼻腔と関連して恐竜の内温性(en)に関する討論の、特に鼻甲介に関する議論で取り上げられる。
鼻甲介は薄い骨と軟骨の由来による2タイプがあり、二つの機能がある。嗅覚鼻甲介は現生の全ての四足動物に見つかり、嗅ぐ機能である。呼吸鼻甲介は蒸発による水分の損失を防ぐ機能であり、鳥類と哺乳類のみに見つかる、これは現代の内温動物(温血動物)では同じ大きさの外温動物(冷血動物)に比べて高い代謝を維持するためにより多く呼吸をし、多くの水分が失われるのを防ぐためである[22] 。Ruben他は1996年にCTスキャンの結果に基づきナノティラヌス、オルニトミムス、およびヒパクロサウルスには呼吸鼻甲介はおそらく存在しないという結論に達し、これらの動物が温血性であった証拠は無いとした[23]。
出典
- Brown, Barnum (1913). “A new trachodont dinosaur, Hypacrosaurus, from the Edmonton Cretaceous of Alberta”. Bulletin of the American Museum of Natural History 32 (20): 395–406 2022年5月18日閲覧。.
- Creisler, Benjamin S. (2007). “Deciphering duckbills”. In Carpenter, Kenneth (ed.). Horns and Beaks: Ceratopsian and Ornithopod Dinosaurs. Bloomington and Indianapolis: Indiana University Press. pp. 185–210. ISBN 0-253-34817-X
- Arbour, V. M.; Burns, M. E.; and Sissons, R. L. (2009). “A redescription of the ankylosaurid dinosaur Dyoplosaurus acutosquameus Parks, 1924 (Ornithischia: Ankylosauria) and a revision of the genus”. Journal of Vertebrate Paleontology 29 (4): 1117–1135. doi:10.1671/039.029.0405.
- Lull, Richard Swann; and Wright, Nelda E. (1942). Hadrosaurian Dinosaurs of North America. Geological Society of America Special Paper 40. Geological Society of America. pp. 206–208
- Weishampel, David B. (1981). “The nasal cavity of lambeosaurine hadrosaurids (Reptilia:Ornithischia): comparative anatomy and homologies”. Journal of Paleontology 55 (5): 1046–1057.
- Horner, John R.; Weishampel, David B.; and Forster, Catherine A (2004). “Hadrosauridae”. In Weishampel, David B.; Dodson, Peter; and Osmólska, Halszka (eds.). The Dinosauria (2nd ed.). Berkeley: University of California Press. pp. 438–463. ISBN 0-520-24209-2
- Glut, Donald F. (1997). “Hypacrosaurus”. Dinosaurs: The Encyclopedia. Jefferson, North Carolina: McFarland & Co. pp. 478–482. ISBN 0-89950-917-7
- Horner, John R.; and Currie, Phillip J. (1994). “Embryonic and neonatal morphology and ontogeny of a new species of Hypacrosaurus (Ornithischia, Lambeosauridae) from Montana and Alberta”. In Carpenter, Kenneth; Hirsch, Karl F.; and Horner, John R. (eds.). Dinosaur Eggs and Babies. Cambridge: Cambridge University Press. pp. 312–336. ISBN 0-521-56723-8
- Gilmore, Charles Whitney (1924). “On the genus Stephanosaurus, with a description of the type specimen of Lambeosaurus lambei, Parks”. Canada Department of Mines Geological Survey Bulletin (Geological Series) 38 (43): 29–48.
- Brett-Surman, Michael K. (1989). A revision of the Hadrosauridae (Reptilia:Ornithischia) and their evolution during the Campanian and Maastrichtian. Ph.D. dissertation. Washington, D.C.: Graduate School of Arts and Sciences of The George Washington University. pp. 1–272
- Suzuki, Daisuke; Weishampel, David B.; and Minoura, Nachio (2004). “Nipponosaurus sachaliensis (Dinosauria; Ornithopoda): anatomy and systematic position within Hadrosauridae”. Journal of Vertebrate Paleontology 24 (1): 145–164. doi:10.1671/A1034-11.
- Evans, David C.; and Reisz, Robert R. (2007). “Anatomy and relationships of Lambeosaurus magnicristatus, a crested hadrosaurid dinosaur (Ornithischia) from the Dinosaur Park Formation, Alberta”. Journal of Vertebrate Paleontology 27 (2): 373–393. doi:10.1671/0272-4634(2007)27[373:AAROLM]2.0.CO;2.
- Lambe, Lawrence M. (1917). “On Cheneosaurus tolmanensis, a new genus and species of trachodont dinosaur from the Edmonton Cretaceous of Alberta”. The Ottawa Naturalist 30 (10): 117–123.
- Matthew, William Diller (1920). “Canadian dinosaurs”. Natural History 20 (5): 1–162.
- Dodson, Peter (1975). “Taxonomic implications of relative growth in lambeosaurine dinosaurs”. Systematic Zoology 24 (1): 37–54. doi:10.2307/2412696. JSTOR 2412696.
- Weishampel, David B.; Barrett, Paul M.; Coria, Rodolfo A.; Le Loueff, Jean; Xu Xing; Zhao Xijin; Sahni, Ashok; Gomani, Elizabeth M.P.; and Noto, Christopher N. (2004). “Dinosaur distribution”. In Weishampel, David B.; Dodson, Peter; and Osmólska, Halszka (eds.). The Dinosauria (2nd ed.). Berkeley: University of California Press. pp. 517–606. ISBN 0-520-24209-2
- Dodson, Peter (1996). The Horned Dinosaurs: A Natural History. Princeton: Princeton University Press. pp. 14–15. ISBN 0-691-05900-4
- Rogers, Raymond R. (1990). “Taphonomy of three dinosaur bone beds in the Upper Cretaceous Two Medicine Formation of northwestern Montana: evidence for drought-related mortality”. PALAIOS 5 (5): 394–413. doi:10.2307/3514834. JSTOR 3514834.
- Cooper, Lisa N.; and Horner, John R. (1999). “Growth rate of Hypacrosaurus stebingeri as hypothesized from lines of arrested growth and whole femur circumference”. Journal of Vertebrate Paleontology 19 (3, Suppl.): 35A.
- Cooper, Lisa N.; Lee, Andrew H.; Taper, Mark L.; and Horner, John R. (2008). “Relative growth rates of predator and prey dinosaurs reflect effects of predation”. Proceedings of the Royal Society B 275 (1651): 2609–2615. doi:10.1098/rspb.2008.0912. PMC 2605812. PMID 18682367.
- Bailleul, A. M.; Hall, B. K.; Horner, J. R. (2012). Dodson, Peter. ed. “First Evidence of Dinosaurian Secondary Cartilage in the Post-Hatching Skull of Hypacrosaurus stebingeri (Dinosauria, Ornithischia)”. PLoS ONE 7 (4): e36112. doi:10.1371/journal.pone.0036112. PMC 3340333. PMID 22558351.
- Chinsamy, Anusuya; and Hillenius, Willem J. (2004). "Physiology of nonavian dinosaurs". The Dinosauria, 2nd. 643-659.
- Ruben, J. A.; Hillenius, W.J.; Geist, N.R.; Leitch, A.; Jones, T.D.; Currie, P.J.; Horner, J.R.; and Espe, G., III (August 1996). “The metabolic status of some Late Cretaceous dinosaurs”. Science 273 (5279): 1204–1207. doi:10.1126/science.273.5279.1204.