ヘスペロサウルス
ヘスペロサウルス (Hesperosaurus) は、ジュラ紀後期のキンメリッジ階(およそ1億5600万年前)に生存した草食性の剣竜類。
| ヘスペロサウルス Hesperosaurus | |||||||||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
 ヘスペロサウルス Hesperosaurus | |||||||||||||||||||||||||||||||||||||||||||||
| 分類 | |||||||||||||||||||||||||||||||||||||||||||||
| |||||||||||||||||||||||||||||||||||||||||||||
| 学名 | |||||||||||||||||||||||||||||||||||||||||||||
| Hesperosaurus Carpenter, Miles & Cloward, 2001 | |||||||||||||||||||||||||||||||||||||||||||||
| シノニム | |||||||||||||||||||||||||||||||||||||||||||||
| |||||||||||||||||||||||||||||||||||||||||||||
| 和名 | |||||||||||||||||||||||||||||||||||||||||||||
| ヘスペロサウルス | |||||||||||||||||||||||||||||||||||||||||||||
| 種 | |||||||||||||||||||||||||||||||||||||||||||||
|
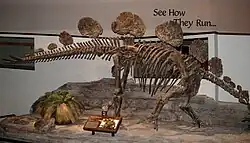
ヘスペロサウルスの化石は1985年以来アメリカ合衆国のワイオミング州やモンタナ州で発見されている。模式種のHesperosaurus mjosi は2001年に命名された。これはモリソン累層の下部から産出しており、他のモリソン累層産剣竜類よりも少しだけ古い。いくつかの比較的保存の良い骨格が知られている。その一つには、剣竜類の背部骨板の角質鞘の印象が初めて保存されていた。
ヘスペロサウルスは体長がおよそ6-7m、体重が2-3t であった。彼らは垂直に立った骨板や棘で身を守っていた四足歩行の草食動物であるステゴサウルス科の一員だった。彼らはステゴサウルスと近縁だと考えられており、背部に2列の骨板が(おそらくは互い違いに)並ぶこと、尾端に4本の棘を持つことなどの類似点がある。背部の骨板はたぶんそれほど高くはない代わりに前後に長い。おそらくステゴサウルスに比べて短く高い頭骨を持っていた。
発見と種
1985年、化石ハンターパトリック・マクシェリーはワイオミング州ジョンソン郡の放牧場で剣竜類の化石を見つけた。彼は標本についていた固い石をうまく除去できなかったので、ウェスタンパレオントロジカルラボラトリー株式会社のロナルド・ミオス Ronald Mjos とジェフ・パーカー Jeff Parker に助力を乞うた。彼らはブリガムヤング大学の古生物学者ディー・ホール Dee Hall にも協力を求めた。当初、それはステゴサウルス・ステノプス Stegosaurus stenops であると考えられた。しかしクリフォード・マイルズ Clifford Miles は化石を補修した際、新種である可能性に気づいた。
模式種ヘスペロサウルス・ムジョシ Hesperosaurus mjosi は2001年にケネス・カーペンター、クリフォード・マイルズ、そしてカレン・クラウォードによって記載された。 属名はアメリカ西部で化石が見つかったことに因み西を意味する古代ギリシャ語での ἕσπερος, hesperos という単語がつけられ、「西のトカゲ」の意をなす。種小名はロナルド・ミオスへの献名である。ミオスは発掘に貢献し、デンバー自然史博物館に展示されている標本DMNH 29431 の組立骨格の作成も手がけた功績がある[1]。
ホロタイプ、 HMNH 001 (後の HMNS 14)は、モリソン累層下部のウィンディーヒル部層で見つかった[2]。年代は後期ジュラ紀キンメリッジ期、約1億5600万年前である。2001年にアメリカ最古の剣竜として報告された。それはほぼ完全な頭骨、多くの骨格で構成されている。頭骨の他は、下顎骨の後部、舌骨、13個の頸椎、15個の胴椎、3つの仙骨、44個の尾椎、頸肋骨、尾肋骨、血道弓、左肩甲骨、完全な骨盤、骨化した腱、そして首と背中のプレート(骨板)で成る。この骨格は部分的につながっており、骨折部位の治療痕から老成個体と見なされた[1]。その標本は岡山県の林原自然科学博物館に展示されていたが[3]、2016年に福井県立恐竜博物館のトゥオジャンゴサウルスの配置されていた場所に移った。
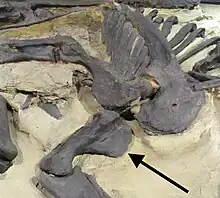
1995年より、ワイオミング州ビッグホーン郡のハウ・スティーヴンス採石場(かつてバーナム・ブラウンによって調査されたハウ放牧場と新しい所有者のスティーブンス誌に因んだ名前)にて、スイスの古生物学者 Hans Jacob Siber は剣竜の標本を発掘している。最初のものは SMA 3074-FV01(SMA M04)という標本番号でマックスとモーリッツに因み「モーリッツ」と呼ばれる部分的な骨格である。なぜマックスとモーリッツに因んだのかというと、先にその地層で発見されていた竜脚類ガレアモプスの標本がマックスと呼ばれていたからである。1995年9月、標本番号SMA0018(これも間違ってSMA M03と言及されることがある)が発見され、元の「ビッグアル」が政府に押収された後に「ビッグアル2号」を発見した際の調査隊の勝利感から「ビクトリア」と名付けられた。ビクトリアには皮膚と角質の鞘の印象が保存されており、頭骨を含んだかなり完全な骨格である。第3の標本は2002年に発見され、標本番号は SMA L02で、ボランティアとして発掘を支援したニコラ・リリックとラベア・リリックの姉妹に因み「リリー」と名づけられた。リリーは、スイスのアータール恐竜博物館 (Aathal Dinosaur Museum) のコレクションの一部となっている。当初、それらは全てステゴサウルスの標本とみなされた。2001年には「モーリッツ」と「リリー」のみがcf(参考標本)ヘスペロサウルス・ムジョシとして再分類された[4]。2010年、「ビクトリア」は Nicolai Christiansen によってヘスペロサウルス・ムジョシに帰属させられた[5]。
カーペンターはもともと、ヘスペロサウルスはどちらかというと基盤的なステゴサウルス類であると結論づけていた。しかし、2008年のスザンナ・メイドメント Susannah Maidmentらは、ステゴサウルスおよびウエルホサウルスと非常に近縁な、より進化した形態のステゴサウルス類として、より広範な系統発生学研究を発表した。彼らはヘスペロサウルスはステゴサウルスの一種と考えるべきで、Hesperosaurus mjosi はStegosaurus mjosi となり、同時にウエルホサウルスもStegosaurus homheni と再命名すべきであると主張した[6]。これは現在も議論の最中である。生物学において「属」という概念は定義されていない。つまり一般的には操作上の明確な定義は与えられていないので、特定の種が特定の属に属しているかどうかを経験的に判断することが許されている。そこでカーペンターは、この問題の本質は科学的なものではなく哲学的なものあると考え、2010年にヘスペロサウルスは別の属名を与えられるほど充分にステゴサウルスとは異なるという意見を表明してヘスペロサウルスがステゴサウルスのシノニムであることを否定した [7]。2010年、クリステンセンも同じように属の有効性を判定した [5]。
2015年、追加の標本が報告された。モンタナ州グラスレンジ近郊のJRDI 5ES採石場で少なくとも5個体分が集中して発見された。そしてコモブラフのメイリーン採石場では2個体分の標本も見つかっており、ヘスペロサウルスと同定されている[8]。
説明
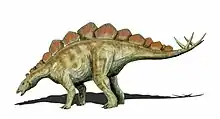
ヘスペロサウルスは大型剣竜類である。2010年グレゴリー・ポールは全長6.5m、体重3.5tと見積もった[9]。
2001年、カーペンターは既知の基盤的剣竜類ファヤンゴサウルスとの類似性からヘスペロサウルスは基礎的な剣竜類であるという結論を出していたが、系統的な位置づけが明確になり、剣竜類の中ではファヤンゴサウルスとはむしろ遠縁であることがわかった。 2008年のメイドメントの研究では、3つの固有派生形質が示された。すなわち、胴椎が11個、第4仙椎は仙骨に融合していない、背中のプレートは上下の高さよりも前後の長さのほうが大きい。メイドメントは更にステゴサウルス・アルマトゥス Stegosaurus armatus よりも原始的ないくつかの特徴を指摘した。成体標本でさえ第一頸椎の神経弓が中間核に癒合しない。頚椎と胸部の後部の関節の上方の突出が顕著でない。椎骨後部では神経管よりも上の神経弓がそれ以上に伸長しない。腰部に骨化した腱が存在する。肋骨が下端で拡張する。尾椎の神経棘が二股に分かれていない。恥骨の下端が広い(側面図ではスプーン形)[6]。カーペンターはこの分析には問題があるとした。その理由の一つは、カーペンターはメイドメントが比較に用いた種である模式種ステゴサウルス・アルマトゥス Stegosaurus armatus は、最初に命名された為に模式種とされているに過ぎず、標本の保存状態が悪すぎるため疑問名であると考えているためで、また別の理由として、北アメリカ大陸の全てのステゴサウルス標本を単一種として一緒くたにしているメイドメントのやり方では大きな変異もその一種に内包されてしまうのでヘスペロサウルスとの差異を明確にすることが困難となるため、容認できるものではないとしたためである。カーペンターはステゴサウルスの内、よく保存された標本が複数見つかっているS. ステノプス を別種と見なし、ヘスペロサウルスをS. ステノプスと比較した新たな別の分析を行った。前眼窩窓はステノプスが非常に小さいのに対し大きくなっている。上顎骨はステノプスでは高さが長さの1/3なのに対し、高さが長さの半分ほどの短いものとなっている。脳函下部の基蝶形骨は、ステノプスでは長いのに対し、短い。ステノプスでは10個である頸椎が13個存在する。胴椎が17個ではなく13個存在する。中間部の胴椎では高い神経弓の代わりに低い原始的な形状の神経弓がある。頸肋骨は、下端が拡張されている。前部の尾椎において、神経棘の頂部は二股ではなく丸みを帯びている。肩甲骨の前縁は、後縁に平行に走るのではなく、窪んでいる。腸骨の前葉は狭く、むしろ横方向に大きく広がる。腸骨の後葉は、後端部に瘤状の拡張部を有する。前恥骨突起の前端が上方に拡張する。腰と尾の付け根のプレートは、高い三角形ではなく、楕円形で低くなっている[7]。
ヘスペロサウルスについて書かれた様々な論文は、解釈の変化および相違のため相互に矛盾している。もともと、カーペンターはバラバラだった頭骨の構成骨を、ファヤンゴサウルスのような形状にモデリングし、非常に凸型の頭のように復元した。椎骨数の矛盾は、それが頚椎の一部か胴椎の一部とみなされるべきかどうかの解釈について別の基準を適用していることに起因する。プレートの正確な形状は、風化やその他の浸食のために判定が難しい。グレゴリー・ポールは首のプレートは低いものと考えていたが、胴体のプレートは高いものと考えていた[9] 。 また、アータールに収蔵されている標本はまだ記載されていない。標本全体の完全な記載は、ポルトガルのオクタヴィオ・マテウスによって進められている[5]。
上顎骨歯の数は片側20本であり、ステゴサウルスのそれよりも少ない。カーペンターは、ステゴサウルスの歯に似ているが、やや大きいと説明した[1]。 2007年のガルトン Peter Malcolm Galton の研究は、いくつかの違いを確立した。歯冠1本につき上部には粗い垂直の畝があり、歯の表面の細かな溝が弱く発達する[10]。
皮骨と皮膚の印象
カーペンターは2001年にホロタイプの一部として10枚のプレートを記載した。それらは前後に長く上下に低いとされた。基部が左右非対称なのでそれらは2列に並んでいたことが示される。尾部の端部は、サゴマイザーthagomizer(2対のスパイク)があり、前の1対はより太く、後ろの1対はより細く水平で後ろ向きである[1]。
2012年に、組織学的な研究が実施され、ヘスペロサウルスの皮骨(骨化した皮膚)は、その構造がステゴサウルスのそれと本質的に同一であると結論付けられた。CTスキャンでは以下の状態が確認された。薄いが高密度の外壁を有し、厚いスポンジ状の骨で満たされている。骨には骨化の過程で変形した形跡が認められる。広範囲にわたる長くて広い動脈の通った溝が確認できる。サゴマイザーのスパイクは壁が厚く、内部のスポンジ状の構造の空洞は小さい。一本の太いな血管がスパイクの縦軸に沿って走る[11]。
2010年には、ビクトリアで見られる軟組織についての研究が発表された。周囲の堆積物に遺された皮膚の印象と、内臓などの柔らかい部分が腐敗する前にその空間が沈殿物で満たされたことで形状を保存している物が調べられた。さらにいくつかの部分では、黒い層が存在しており、おそらくは有機残留物または菌床(菌の培地)からなる。胴体側面の下部の一部は、直径が2〜7ミリメートルの小さな六角形で重なり合わない凸形の鱗の列が観察できる。側面の上部では大きな中央鱗と共に2つのロゼット状構造が確認でき、一方は20×10ミリメートル、他方は10×8ミリメートルである。鱗とは別に、約200平方センチメートルを覆う背中のプレートの下側の印象が見出されている。この表面には鱗はなく滑らかで、何本かの垂直で低い畝がある。これは本物の表皮の印象であるので、生体では溝が存在していたと思われる。これらの溝は、深さが約0.5ミリメートルであり、それぞれが約2ミリメートル離れていた。印象はおそらく、プレートが角質の鞘に覆われていたことを示しており、それは垂直に伸びる血管の跡から確認された。このような鞘の存在の証拠が記載されるのは、剣竜では最初のことである。角質層がプレート全体を強化し鋭いブレードを備えていたと考えられる。その事から、プレートはよく説明される体温調節ではなく(角質で断熱されるため)主に防御機能を有することを強く示すものとして分析された。骨板はプレートの芯であり、鞘は実際のプレートの面積をさらに拡大していたはずである。この構造はしばしば明るい色に復元されるが、この鞘によってディスプレイ機能も強化されていただろう。体温調節に関しては、現生のウシやアヒルが、角質で覆われているにもかかわらず角やくちばしを使って余分な熱を放射することは完全には妨げられていないので、いくらかは利用された可能性はある[5]。
系統発生
2001年、カーペンターは分岐分析を行い、ヘスペロサウルスはダケントルルスと近縁でどちらかというと基盤的な剣竜であるとした[1]。
| 剣竜下目 |
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
カーペンターはこの分析の精密性には限界があると承知していた[1]。
メイドメントによるより広範な系統発生学的研究は、非常に進化したステゴサウルス類としてのヘスペロサウルス、およびウエルホサウルスのクレードを提唱した。ステゴサウルス類のクラドグラムにおけるヘスペロサウルスの位置は、2009年の研究によれば、以下のようになる[12]。
| ステゴサウルス科 |
| ||||||||||||||||||||||||||||||||||||
古生物学
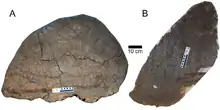
2015年、エヴァン・トーマス・セイタ Evan Thomas Saitta はJRDI 5ES採石場で見つかった標本を分析し、ヘスペロサウルスに性的二形を見出した。採石場で見つかったプレートには2つのタイプがあった。高いタイプと低いタイプである。これら様々な個体のプレートは関節していなかったが、セイタはどれが頸椎、胴椎、尾椎のどの列に位置していたものか、その形状によって判断した。分析の結果、プレートの配置部位に関係なく、一部の個体は上下に高いプレートのみをもっていたのに対し、他の個体は前後に広いプレートしか持たなかったことが示唆され、過去に見つかった標本においても一つの個体は1種類のプレートのみを有することが確認された。セイタは、高いプレートはメスであることを表し、オスは低いプレートを備えていたと主張している。低いプレートの方が面積が広く、ディスプレイにおいて有利であることが根拠とされる[8]。論文化された正式な反論はまだないものの、古生物学者ケヴィン・パディアン Kevin Padian とケネス・カーペンターはこの結論に疑問を呈している[13]。
脚注
- Carpenter K.; Miles C.A.; Cloward K. (2001). “New Primitive Stegosaur from the Morrison Formation, Wyoming”. In Carpenter, Kenneth. The Armored Dinosaurs. Indiana University Press. pp. 55–75. ISBN 0-253-33964-2
- Foster, J. (2007). "Appendix." Jurassic West: The Dinosaurs of the Morrison Formation and Their World. Indiana University Press. pp. 327–329.
- 加瀬友喜 (2011年2月9日). “林原グループにおける古生物学研究事業の今後について”. 日本古生物学会. 2020年11月30日閲覧。
- Siber, H.J., & Möckli, U., 2009, The Stegosaurs of the Sauriermuseum Aathal, Aathal: Sauriermuseum Aathal, pp 56
- N.A. Christiansen and E. Tschopp, 2010, "Exceptional stegosaur integument impressions from the Upper Jurassic Morrison Formation of Wyoming", Swiss Journal of Geosciences 103: 163-171
- Maidment, Susannah C. R.; Norman, David B.; Barrett, Paul M.; Upchurch, Paul (2008). “Systematics and phylogeny of Stegosauria (Dinosauria: Ornithischia)”. Journal of Systematic Palaeontology 6 (4): 367–407. doi:10.1017/S1477201908002459.
- Carpenter, K., 2010, "Species concept in North American stegosaurs", Swiss Journal of Geosciences, 103(2): 155-162
- Saitta E.T., 2015, "Evidence for Sexual Dimorphism in the Plated Dinosaur Stegosaurus mjosi (Ornithischia, Stegosauria) from the Morrison Formation (Upper Jurassic) of Western USA", PLoS ONE 10(4): e0123503
- Paul, G.S., 2010, The Princeton Field Guide to Dinosaurs, Princeton University Press p. 224
- Galton, P.M., 2007, "Teeth of ornithischian dinosaurs (mostly Ornithopoda) from the Morrison Formation (Upper Jurassic) of the western United States", In: Carpenter, Kenneth (ed.), Horns and Beaks: Ceratopsian and Ornithopod Dinosaurs, Bloomington and Indianapolis: Indiana University Press. pp. 17–47
- Hayashi, S., Carpenter K., Watabe M., and McWhinney L., 2012, "Ontogenetic histology of Stegosaurus plates and spikes", Palaeontology 55: 145-161
- Mateus, Octávio; Maidment, Susannah C. R.; Christiansen, Nicolai A. (2009). “A new long-necked 'sauropod-mimic' stegosaur and the evolution of the plated dinosaurs” (pdf). Proceedings of the Royal Society B: Biological Sciences 276 (1663): 1815–1821. doi:10.1098/rspb.2008.1909. PMC 2674496. PMID 19324778.
- http://news.sciencemag.org/paleontology/2015/04/dino-sexing-study-slammed-critics
| ||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||