東ヨーロッパ狩猟採集民
考古遺伝学において、東ヨーロッパ狩猟採集民(東ヨーロッパしゅりょうさいしゅうみん、英語:Eastern Hunter-Gatherer (EHG)))という用語は、東ヨーロッパの中石器時代狩猟採集民を表す明確な祖先の構成要素の呼び名である[3]。
|
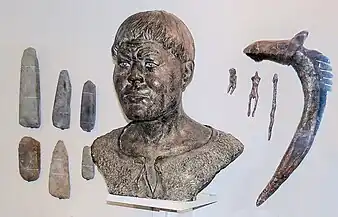
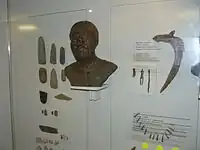
ミハイル・ミハイロヴィチ・ゲラシモフによる、ユジニー・オレニー(英語: Yuzhny Oleny)島遺跡(約8,100 BP)から出土した東方狩猟採集民の遺物と法医学的復元。カレリア国立博物館[1]。 1万4千年前から9千年前の間のヨーロッパの狩猟採集民、主な地域は東ヨーロッパ狩猟採集民(EHG, )。個々の番号は校正されたサンプルの日付に対応する[2]。 |

東ヨーロッパ狩猟採集民(EHG)の遺伝的プロファイルは主にシベリアから伝わった祖先である古代北ユーラシア人(ANE)に由来し[4] 、二次的でより小規模な西ヨーロッパ狩猟採集民(WHG)との混血があった[5][6]。それでもなお、北ユーラシア人(ANE)と東ヨーロッパ狩猟採集民(EHG)の祖先構成要素の関係は、時空間ギャップを埋めることができるサンプルが不足しているため、いまだよく解明されていない[5]。
中石器時代、東ヨーロッパ狩猟採集民(EHG)はバルト海からウラル山脈、そして下方のポントス・カスピ海草原まで広がる地域に居住していた[7]。スカンジナビア狩猟採集民(英語: Scandinavian Hunter-Gatherer)(SHG) および西ヨーロッパ狩猟採集民(WHG) とともに、東ヨーロッパ狩猟採集民(EHG) は 完新世 ヨーロッパ初期の後氷期における 3 つの主要な遺伝集団の 1 つを構成した[8]。西ヨーロッパ狩猟採集民(WHG)と東ヨーロッパ狩猟採集民(EHG)の境界はドナウ川の下流からドニエプル川の西の森に沿って北上し、西のバルト海に向かっていた[9]。
新石器時代から銅器時代初期にかけて、おそらく紀元前4千年紀のことであるが、ポントス・カスピ海草原にいた東ヨーロッパ狩猟採集民(EHG)がコーカサス狩猟採集民(英語: Caucasus hunter-gatherer)(CHG)と混血し、その結果生まれた集団は東ヨーロッパ狩猟採集民(EHG)とコーカサス狩猟最終民(CHG)のほぼ半々で、西部ステップ牧畜民(WSH)として知られる遺伝的クラスターを形成した[10][11]。ヤムナヤ文化の人々と密接な関係にある西部ステップ牧畜民(WSH)の集団は、ユーラシア大陸の大部分にインド・ヨーロッパ語を広めることにつながるインド・ヨーロッパ語族の移動(英語: Indo-European migrations)に乗り出したと考えられている。
研究
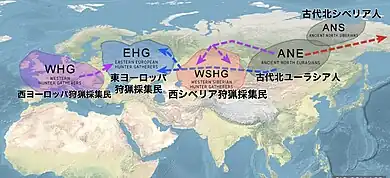

ハークら (2015)によると、 東ヨーロッパ狩猟採集民 (EHG) は 2人の男性のみが異なる遺伝的クラスターであると特定された。 サマラ の 東ヨーロッパ狩猟採集民(EHG)の男性 (紀元前 5650 ~ 5550 年頃と推定)は、Y染色体ハプログループ R1b1a1a* および mt-ハプログループU5a1d。 カレリアに埋葬されたもう1人の東ヨーロッパ狩猟採集民(EHG)男性(紀元前5500年から5000年頃と推定)は、Y-ハプログループR1a1およびmt-ハプログループC1gを保有していた。この研究の著者らは、西ヨーロッパ狩猟採集民(WHG)と東ヨーロッパ狩猟採集民(EHG)の中間のスカンジナビア狩猟採集民(SHG)クラスターと西ヨーロッパ狩猟採集民(WHG)クラスターも特定した[注釈 1]。彼らは、東ヨーロッパ狩猟採集民(EHG)は古代北ユーラシア人(ANE)と西ヨーロッパ狩猟採集民(WHG)の混合祖先を保有していることを示唆した[13]。
研究者たちは、西ヨーロッパ狩猟採集民(WHG)や北ユーラシア人(ANE)からの東ヨーロッパ狩猟採集民(EHG)について様々な混血割合モデルを提案している[14][15]。ポスツら(2023)は、ほとんどの東ヨーロッパ狩猟採集民(EHG)個体が70%の北ユーラシア人(ANE)祖先と30%の西ヨーロッパ狩猟採集民(WHG)祖先を持っていることを発見した[2]。古代北ユーラシア人(ANE)からの寄与が高いことは、4万年前の中国北部の田園洞人とEHGの微妙な親和性にも表れている。これは、(マリタ遺跡人骨とアフォントヴァ・ゴラ3人骨に代表される)北ユーラシア人(ANE)の系統に、田園洞人に関連した源流から遺伝子が流入し、後に東ヨーロッパ狩猟採集民(EHG)の形成に大きく寄与したことで説明できる[16]。
東ヨーロッパ狩猟採集民(EHG) は「アルメニアに似た近東に起源を持つ集団」と混合した可能性があり、それが銅器時代 (紀元前 5200 ~ 4000 年) の頃にはヤムナヤ文化を形成した[17]。ヤムナヤ文化の人々は東ヨーロッパ狩猟採集民(EHG)と「近東に関連する集団」の混合であることが判明した。紀元前3千年紀の間に、ヤムナヤ人はヨーロッパ全域への大規模な拡大に乗り出し、大陸の遺伝的景観を大きく変えた。この拡張は縄目文土器文化のような文化を生み出し、おそらくヨーロッパにおけるインド・ヨーロッパ語族の分布の源となった[13]。
中石器時代の東部バルト海のクンダ文化とナルヴァ文化(英語: Narva culture)の人々は、西ヨーロッパ狩猟採集民(WHG)と東ヨーロッパ狩猟採集民(EHG)の混合であり、西ヨーロッパ狩猟採集民(WHG)と最も近い親和性を示した。ウクライナの中石器時代と新石器時代のサンプルは、西ヨーロッパ狩猟採集民(WHG)と東ヨーロッパ狩猟採集民(EHG)の間で密集したクラスターを形成することが判明し、ドニエプル急流(英語: Dnieper Rapids)地域での4,000年間にわたる遺伝的連続性が示唆された。ウクライナ人のサンプルはもっぱら母親のミトコンドリアハプログループ U に属しており、これはヨーロッパの狩猟採集民のサンプル全体の約 80% に含まれている[18]。
バルト海東部の 櫛目文土器文化の人々は65%が東ヨーロッパ狩猟採集民(EHG)を祖先に持つ。これは、この地域の以前の狩猟採集民が西ヨーロッパ狩猟採集民(WHG)に近かったのとは対照的である。このことは、櫛目文土器文化の個体から抽出したY-DNAサンプルを用いて実証された。これはR1a15-YP172に属していた。抽出された4つのmtDNAサンプルは、U5b1d1の2サンプル、U5a2dの1サンプル、U4aの1サンプルであった[19]。
Güntherら(2018)は13人のスカンジナビア狩猟採集民(SHG)を分析し、全員が東ヨーロッパ狩猟採集民(EHG)の祖先を持っていることを発見した。一般的に、スカンジナビア西部と北部のスカンジナビア狩猟採集民(SHG)は、スカンジナビア東部の個体(約38%)よりも東ヨーロッパ狩猟採集民(EHG)の祖先が多かった(約49%)。著者らは、スカンジナビア狩猟採集民(SHG)は南からスカンディナヴィアに移住してきた西ヨーロッパ狩猟採集民(WHG)と、その後、北東からノルウェー沿岸に沿ってスカンディナヴィアに移住してきた東ヨーロッパ狩猟採集民(EHG)の混血であることを示唆した。スカンジナビア狩猟採集民(SHG)は西ヨーロッパ狩猟採集民(WHG)や東ヨーロッパ狩猟採集民(EHG)に比べて、明るい肌を引き起こす遺伝子変異(SLC45A2遺伝子とSLC24A5遺伝子)と明るい目(OCA/Herc2遺伝子)の頻度が高かった。

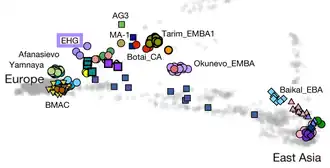
また、クンダ文化とナルヴァ文化は西ヨーロッパ狩猟採集民(WHG)と、櫛目文土器文化は東ヨーロッパ狩猟採集民(EHG)と、より密接な関係があることがわかった。バルト海東部の北部と東部は、南部よりも東ヨーロッパ狩猟採集民(EHG)と密接な関係があることがわかった。この研究では、東ヨーロッパ狩猟採集民(EHG)はスカンジナビア狩猟採集民(SHG)やバルト海の狩猟採集民と同様に、明るい肌をコードするSLC24A5遺伝子とSLC45A2遺伝子に関する対立遺伝子を高い頻度で持っていると指摘している[21]。
Mathiesonら(2018年)は、先史時代の東ヨーロッパの多数の骨格の遺伝学を分析した。37のサンプルは中石器時代と新石器時代のウクライナ(紀元前9500~6000年)のものであった。これらは東ヨーロッパ狩猟採集民(EHG)とスカンジナビア狩猟採集民(SHG)の中間に分類された。男性はもっぱらRハプロタイプ(特にR1b1とR1aのサブクレード)とIハプロタイプ(特にI2のサブクレード)に属していた。ミトコンドリアDNAはほとんどU(特にU5とU4のサブクレード)に属していた。
主にバルト海東部のクンダ文化とナルヴァ文化に属していたズヴェイニェキ埋葬地(英語: Zvejnieki burial ground)の多数の個体が分析された。これらの個体は初期の段階ではほとんどが西ヨーロッパ狩猟採集民(WHG)系であったが、時間の経過とともに東ヨーロッパ狩猟採集民(EHG)系の祖先が優勢になった。この部位のY-DNAは、ほとんどハプログループR1b1a1aとI2a1のハプロタイプに属していた。mtDNAはもっぱらハプログループU (mtDNA)(特にU2、U4、U5のサブクレード)に属していた。
バルカン半島のルーマニアからセルビアにかけての鉄の門にある中石器時代の3つの遺跡から出土した40人の個体は、85%が西ヨーロッパ狩猟採集民(WHG)、15%が東ヨーロッパ狩猟採集民(EHG)と推定された。これらの遺跡から出土した男性人骨は、もっぱらR1b1aとI(主にハプログループI2aのサブクレード)のハプロタイプを持っていた。mtDNAはほとんどがハプログループU (mtDNA)(特にU5とU4のサブクレード)に属していた[17]。
バルカン半島の新石器時代のククテニ=トリピリア文化の人々は約20%の狩猟採集民の祖先を持ち、それは東ヨーロッパ狩猟採集民(EHG)と西ヨーロッパ狩猟採集民(WHG)の中間であることがわかった[17]。
Narasimshanら(2019)は新しい祖先構成要素、西シベリア狩猟採集民(WSHG)を造語した。西シベリア狩猟採集民(WSHG)は約20%の東ヨーロッパ狩猟採集民(EHG)の祖先、73%の古代北ユーラシア人(ANE)の祖先、6%の東アジア祖先を含んでいた[22]。
ヤムナヤ文化とは異なり、ドニエプル=ドネツ文化ではコーカサス狩猟採集民(CHG)や初期ヨーロッパ農耕民(EEF)の祖先は検出されていない[23]。ドニエプル・ドネツの男性とヤムナヤの男性は同じ父系ハプログループ(R1bとI2a)を持っており、ヤムナヤのコーカサス狩猟採集民(CHG)と初期ヨーロッパ農耕民(EEF)の混血は、東ヨーロッパ狩猟採集民(EHG)の男性が初期ヨーロッパ農耕民(EEF)やコーカサス狩猟採集民(CHG)の女性と混血することによってもたらされたことを示唆している。デイヴィッド・W・アンソニーによれば、これはインド・ヨーロッパ語族が当初は東ヨーロッパに住んでいた東ヨーロッパ狩猟採集民(EHG)によって話されていたことを示唆している[24]。他の研究では、インド・ヨーロッパ語族の起源は東ヨーロッパではなく、西アジアの人々の間にある可能性が示唆されてきた[25]。
形質的外観

東ヨーロッパ狩猟採集民(EHG)は大部分が茶色の目で明るい肌をしていて[27][28]、「青い目の変異体の中間的な頻度」と「白い肌の変異体の高い頻度」を持っていたと示唆されている[29]。カレリアで出土した東ヨーロッパ狩猟採集民(EHG)は、ギュンター(2018)によって、褐色の目と黒髪である確率が高く、中間の肌色であると予測された[30]。サマラ出身の別の東ヨーロッパ狩猟採集民(EHG)は、明るい肌であることが予測され、青い目で明るい髪の色合いである確率が高く、金髪である確率は75%と計算された[31][29]。rs12821256対立遺伝子は、金髪に関連しており、17,000BP頃とされるシベリアのアフォントヴァ・ゴラ(Afontova Gora)の個体で初めて発見されたが、サマラ、モタラ、ウクライナの3人の東方狩猟採集民(約1万BP)に見られることから、この対立遺伝子は古代北ユーラシアの集団に起源を持ち、その後ユーラシア西部に広がったことが示唆されている[32]。
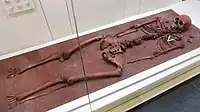
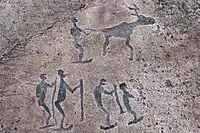
ロシア北西部のカレリアにあるオネガ湖のユジニー・オレニー島でも紀元前8,100年頃の東方狩猟採集民の遺跡が多数発掘されている[33]。古代北ユーラシア人(ANE)の祖先系統はユジニー・オレニーで見つかった遺跡からのグループの主要な構成要素であり、他の東ヨーロッパ狩猟採集民(EHG)の中でも最も高いレベルにある[4]。
物質文化

狩猟採集民であった東ヨーロッパ狩猟採集民(EHG)は、当初は石器や象牙、角、鹿の角を使った工芸品に頼っていた。紀元前5,900年頃から、彼らはカスピ海北部、あるいはおそらくウラルの向こうの地域からの影響で土器を使い始めた。わずか3、4世紀で、陶器は約3,000キロメートルにわたって広がり、バルト海まで到達した。この技術的伝播は農耕の伝播よりもはるかに速く、農耕民の人口的拡散よりもむしろ狩猟採集民のグループ間の技術移転によって起こった[36]。
脚注
注釈
- Lazaridis et al. (2016) found SHGs to be a mix of EHGs and WHGs: "東ヨーロッパ狩猟採集民 (EHG) は、祖先の4分の3を古代北ユーラシア人(ANE)に由来している。スカンジナビア狩猟採集民 (SHG) は、東ヨーロッパ狩猟採集民(EHG)と西ヨーロッパ狩猟採集民(WHG)の混血である… および西ヨーロッパ狩猟採集民(WHG)は、東ヨーロッパ狩猟採集民(EHG)とスイスの後期旧石器時代の遺跡ビション洞窟で発掘された人骨との混血である"[12]
出典
- National Museum of Karelia exhibit
- Posth, Cosimo; Yu, He; Ghalichi, Ayshin (March 2023). “Palaeogenomics of Upper Palaeolithic to Neolithic European hunter-gatherers” (英語). Nature 615 (7950): 117–126. Bibcode: 2023Natur.615..117P. doi:10.1038/s41586-023-05726-0. ISSN 1476-4687. PMC 9977688. PMID 36859578.
- Haak, Wolfgang; Lazaridis, Iosif; Patterson, Nick; Rohland, Nadin; Mallick, Swapan; Llamas, Bastien; Brandt, Guido; Nordenfelt, Susanne; Harney, Eadaoin; Stewardson, Kristin; Fu, Qiaomei (2015-06-01). "Massive migration from the steppe was a source for Indo-European languages in Europe". Nature. 522 (7555): 207–211. doi:10.1038/nature14317. ISSN 1476-4687. PMC 5048219. PMID 25731166.
- Kozintsev, A. G. (4 January 2022). “Patterns in the Population History of Northern Eurasia from the Mesolithic to the Early Bronze Age, Based on Craniometry and Genetics”. Archaeology, Ethnology & Anthropology of Eurasia 49 (4): 141. doi:10.17746/1563-0110.2021.49.4.140-151. ""古代北ユーラシア人(ANE)は東ヨーロッパ狩猟採集民(EHG)常染色体成分の主要なシェアを占めており、その含有量は、ユジニー・オレニー・オストロフ、ポポヴォ、シデルキノ、レビャジンカIVなどに埋葬されたヨーロッパ北東部の中石器時代および初期新石器時代の住民のゲノムで特に高い(Haakら.、2015;Damgaardら.、2018)。彼らは東ヨーロッパ狩猟採集民(EHG)をヤムナヤ文化人に伝え、そこからアファナシェヴォ文化人を含むいくつかの親族集団に受け継がれた。早くも中石器時代には、東ヨーロッパ狩猟採集民(EHG)がロシア北部からスカンジナビアに持ち込まれたことが、スウェーデン南部のモタラ人のゲノムから証明されている。彼らの祖先はノルウェーの海岸沿いに東から移住してきたのだが、バルト海東部のクンダ人など、より南方の集団では東ヨーロッパ狩猟採集民(EHG)の割合が低いからである(Haakら., 2015; Mittnikら.,2018) ""
- Feldman, Michal; Gnecchi-Ruscone, Guido A.; Lamnidis, Thiseas C.; Posth, Cosimo (2021). “Where Asia meets Europe – recent insights from ancient human genomics”. Annals of Human Biology 48 (3): 191–202. doi:10.1080/03014460.2021.1949039. PMID 34459345.
- Nägele, Kathrin; Rivollat, Maite; Yu, He; Wang, Ke (2022). “Ancient genomic research - From broad strokes to nuanced reconstructions of the past”. Journal of Anthropological Sciences 100 (100): 193–230. doi:10.4436/jass.10017. PMID 36576953.
- Anthony 2019b, p. 27.
- Kashuba 2019: "これまでの 核DNA 研究では、氷期後初期のヨーロッパには、西ヨーロッパ狩猟採集民 (WHG)、東ヨーロッパ狩猟採集民 (EHG)、およびスカンジナビア狩猟採集民 (SHG) の 3 つの遺伝的グループが存在することが示唆されている。 スカンジナビア狩猟採集民(SHG) は、西ヨーロッパ狩猟採集民(WHG) と 東ヨーロッパ狩猟採集民(EHG) の混合としてモデル化されている。"
- Anthony 2019b, p. 28.
- Haak, Wolfgang; Lazaridis, Iosif; Patterson, Nick; Rohland, Nadin; Mallick, Swapan; Llamas, Bastien; Brandt, Guido; Nordenfelt, Susanne et al. (2015-06-01). “Massive migration from the steppe was a source for Indo-European languages in Europe”. Nature 522 (7555): 207–211. arXiv:1502.02783. Bibcode: 2015Natur.522..207H. doi:10.1038/nature14317. ISSN 1476-4687. PMC 5048219. PMID 25731166.
- Lazaridis, Iosif; Alpaslan-Roodenberg, Songül; Acar, Ayşe; Açıkkol, Ayşen; Agelarakis, Anagnostis; Aghikyan, Levon; Akyüz, Uğur; Andreeva, Desislava et al. (2022-08-26). “The genetic history of the Southern Arc: A bridge between West Asia and Europe”. Science 377 (6609): eabm4247. doi:10.1126/science.abm4247. ISSN 0036-8075. PMC 10064553. PMID 36007055.
- Lazaridis 2016.
- Haak 2015.
- Lazaridis, Iosif (2018-12-01). “The evolutionary history of human populations in Europe” (英語). Current Opinion in Genetics & Development. Genetics of Human Origins 53: 21–27. arXiv:1805.01579. doi:10.1016/j.gde.2018.06.007. ISSN 0959-437X. PMID 29960127.
- Haak, Wolfgang; Lazaridis, Iosif; Patterson, Nick; Rohland, Nadin; Mallick, Swapan; Llamas, Bastien; Brandt, Guido; Nordenfelt, Susanne et al. (June 2015). “Massive migration from the steppe was a source for Indo-European languages in Europe” (英語). Nature 522 (7555): 207–211. arXiv:1502.02783. Bibcode: 2015Natur.522..207H. doi:10.1038/nature14317. ISSN 1476-4687. PMC 5048219. PMID 25731166. "Haakら(2015):38-40%の古代北ユーラシア人(ANE;MA-1)、60-62%の西ヨーロッパ狩猟採集民(WHG)(図S8.6)。(東ヨーロッパ狩猟採集民(EHG)と北ユーラシア人(ANE)は混血していない姉妹系統であり、西ヨーロッパ狩猟採集民(WHG)は混血しているという代替形態は否定されない)。"
- Villalba-Mouco, Vanessa; van de Loosdrecht, Marieke S.; Rohrlach, Adam B.; Fewlass, Helen; Talamo, Sahra; Yu, He; Aron, Franziska; Lalueza-Fox, Carles et al. (April 2023). “A 23,000-year-old southern Iberian individual links human groups that lived in Western Europe before and after the Last Glacial Maximum” (英語). Nature Ecology & Evolution 7 (4): 597–609. doi:10.1038/s41559-023-01987-0. ISSN 2397-334X. PMC 10089921. PMID 36859553. "現在、完新世ヨーロッパのHGで田園洞人との親和性が最も強いのは、東ヨーロッパHG(EHG)であると報告されている。これは、マリタ遺跡とアフォントヴァ・ゴラ遺跡の個体に見られる祖先(古代北ユーラシア人(ANE)の祖先)が、東アジア/東南アジアの集団54から祖先を受け継ぎ、それがEHG55に大きく寄与したためである"
- Mathieson et al. 2018.
- Jones 2017.
- Saag 2017.
- Zhang, Fan; Ning, Chao; Scott, Ashley (November 2021). “The genomic origins of the Bronze Age Tarim Basin mummies” (英語). Nature 599 (7884): 256–261. Bibcode: 2021Natur.599..256Z. doi:10.1038/s41586-021-04052-7. ISSN 1476-4687. PMC 8580821. PMID 34707286.
- Mittnik 2018.
- Narasimhan 2019.
- Anthony 2019a, p. 14.
- Anthony 2019a, pp. 7, 14.
- Lazaridis, Iosif; Alpaslan-Roodenberg, Songül; Acar, Ayşe; Açıkkol, Ayşen; Agelarakis, Anagnostis; Aghikyan, Levon; Akyüz, Uğur; Andreeva, Desislava et al. (2022-08-26). “The genetic history of the Southern Arc: A bridge between West Asia and Europe” (英語). Science 377 (6609): eabm4247. doi:10.1126/science.abm4247. ISSN 0036-8075. PMC 10064553. PMID 36007055.
- Hanel, Andrea; Carlberg, Carsten (3 July 2020). “Skin colour and vitamin D: An update”. Experimental Dermatology 29 (9): 864–875. doi:10.1111/exd.14142. PMID 32621306.
- Günther 2018.
- Hanel, Andrea; Carlberg, Carsten (2020). “Skin Colour and Vitamin D: An update”. Experimental Dermatology 29 (9): 864–875. doi:10.1111/exd.14142. PMID 32621306. 「興味深いことに、東部とスカンジナビアの狩猟採集民は明るい肌をしていた[48]が、バルト海の狩猟採集民は3800年前まで暗い肌を保っていた。」
- Population genomics of Mesolithic Scandinavia: Investigating early postglacial migration routes and high-latitude adaptation S8 Text. Functional variation in ancient samples., doi:10.1371/journal.pbio.2003703.s013
- Günther 2018, p. 4/28: From Supplementary document S8: 「カレリアの個体は、茶色の目(0.99)、黒髪(0.96)の高い確率を示した。皮膚の色素沈着の遺伝的構造について推測するまでもなく、カレリアの個体は祖先対立遺伝子をrs16891982に、派生対立遺伝子をrs1426654に持っているので、中間の皮膚色素沈着表現型であることが示唆される(S1表)。ハプロタイプを定義するSNP(S1表)における5つのC11関連対立遺伝子に加え、rs1426654の明色肌対立遺伝子の存在は、カレリアの個体がC11明色肌ハプロタイプを持っていることを示唆している。」
- Günther 2018, p. 4/28: From Supplementary document S8:サマラ出土の個体は 青い目(0.88)、明るい髪の色(0.99)、金髪(0.75)の確率が高い。 (0.75)
- Mathieson et al. 2018 "Supplementary Information page 52:ヨーロッパ人の金髪に関連し、その原因と考えられるKITLGのSNPであるrs12821256の派生対立遺伝子は、サマラ、モタラ、ウクライナの狩猟採集民(I0124、I0014、I1763)にそれぞれ1個体ずつ存在し、さらにステップの祖先を持つ後代の数個体にも存在する。この対立遺伝子は東ヨーロッパ狩猟採集民(EHG)の祖先を持つ集団には見られるが、西ヨーロッパ狩猟採集民(WHG)の祖先には見られないことから、その起源は古代北ユーラシア人(ANE)集団にあることが示唆される。これと一致するのは、この対立遺伝子を持つ最古の個体(2つのリードで支持される)が古代北ユーラシア人(ANE)個体アフォントヴァ・ゴラ3であり、この個体の直接年代は16130-15749 cal BCE(14710±60BP、MAMS-27186:未発表の年代であり、今回新たに報告した)であることである。アフォントヴァ・ゴラ2とMA-1のrs12821256については、このSNPの塩基配列のカバレッジが不十分であったため、その状態を決定することはできなかった。
- Mittnik, Alissa; Wang, Chuan-Chao; Pfrengle, Saskia (30 January 2018). “The genetic prehistory of the Baltic Sea region” (英語). Nature Communications 9 (1): Fig. 1. Bibcode: 2018NatCo...9..442M. doi:10.1038/s41467-018-02825-9. ISSN 2041-1723. PMC 5789860. PMID 29382937.
- Kozintsev, Alexander (1 January 2021). “Patterns in the population history of Northern Eurasia from the Mesolithic to the Early Bronze Age”. Archaeology, Ethnology and Anthropology of Eurasia 49 (4): 140–151. doi:10.17746/1563-0110.2021.49.4.140-151. "古代北ユーラシア人(ANE)は、東ヨーロッパ狩猟採集民(EHG)常染色体成分の主要なシェアを占めており、その含有量は、ユージニー・オレニー・オストロフ、ポポヴォ、シデルキノ、レビャジンカIVなどに埋葬されている北東ヨーロッパの中石器時代および初期新石器時代の住民のゲノムに特に多く含まれている。 (Haakら(2015); Damgaardら(2018))."、"中石器時代、ロシア平原北部、ユージニー・オレニー・オストロフ (Alekseyev、Gokhman、(1984))"
- Dolbunova, Ekaterina; Lucquin, Alexandre (February 2023). “The transmission of pottery technology among prehistoric European hunter-gatherers” (英語). Nature Human Behaviour 7 (2): 171–183. doi:10.1038/s41562-022-01491-8. ISSN 2397-3374. PMC 9957732. PMID 36550220.
- Dolbunova, Ekaterina; Lucquin, Alexandre (February 2023). “The transmission of pottery technology among prehistoric European hunter-gatherers” (英語). Nature Human Behaviour 7 (2): 171–183. doi:10.1038/s41562-022-01491-8. ISSN 2397-3374. PMC 9957732. PMID 36550220. "人口拡散の役割もあるかもしれないが、そのスピードから、陶器の生産は、分散した狩猟採集民のコミュニティ間の確立されたネットワークを介した知識の伝達によって、急速に広まったと主張する。"
参考文献
- Anthony, David (Spring–Summer 2019a). “Archaeology, Genetics, and Language in the Steppes: A Comment on Bomhard”. Journal of Indo-European Studies 47 (1–2) 2020年1月9日閲覧。.
- Anthony, David W. (2019b). “Ancient DNA, Mating Networks, and the Anatolian Split”. In Serangeli, Matilde; Olander, Thomas. Dispersals and Diversification: Linguistic and Archaeological Perspectives on the Early Stages of Indo-European. BRILL. pp. 21–54. ISBN 978-9004416192
- Günther, Thorsten (January 1, 2018). “Population genomics of Mesolithic Scandinavia: Investigating early postglacial migration routes and high-latitude adaptation”. PLOS Biology (PLOS) 16 (1): e2003703. doi:10.1371/journal.pbio.2003703. PMC 5760011. PMID 29315301.
- Haak, Wolfgang (June 11, 2015). “Massive migration from the steppe was a source for Indo-European languages in Europe”. Nature 522 (7555): 207–211. arXiv:1502.02783. Bibcode: 2015Natur.522..207H. doi:10.1038/nature14317. PMC 5048219. PMID 25731166.
- Jones, Eppie R. (February 20, 2017). “The Neolithic Transition in the Baltic Was Not Driven by Admixture with Early European Farmers”. Current Biology (Cell Press) 27 (4): 576–582. doi:10.1016/j.cub.2016.12.060. PMC 5321670. PMID 28162894.
- Kashuba, Natalija (May 15, 2019). “Ancient DNA from mastics solidifies connection between material culture and genetics of mesolithic hunter–gatherers in Scandinavia”. Communications Biology (Nature Research) 2 (105): 185. doi:10.1038/s42003-019-0399-1. PMC 6520363. PMID 31123709.
- Lazaridis, Iosif (July 25, 2016). “Genomic insights into the origin of farming in the ancient Near East”. Nature 536 (7617): 419–424. Bibcode: 2016Natur.536..419L. doi:10.1038/nature19310. PMC 5003663. PMID 27459054.
- Mathieson, Iain (November 23, 2015). “Genome-wide patterns of selection in 230 ancient Eurasians”. Nature 528 (7583): 499–503. Bibcode: 2015Natur.528..499M. doi:10.1038/nature16152. PMC 4918750. PMID 26595274.
- Mathieson, Iain; Alpaslan-Roodenberg, Songül; Posth, Cosimo; Szécsényi-Nagy, Anna et al. (March 2018). “The genomic history of southeastern Europe”. Nature 555 (7695): 197–203. Bibcode: 2018Natur.555..197M. doi:10.1038/nature25778. PMC 6091220. PMID 29466330.
- Mittnik, Alisa (January 30, 2018). “The genetic prehistory of the Baltic Sea region”. Nature Communications 16 (1): 442. Bibcode: 2018NatCo...9..442M. doi:10.1038/s41467-018-02825-9. PMC 5789860. PMID 29382937.
- Narasimhan, Vagheesh M. (September 6, 2019). “The formation of human populations in South and Central Asia”. Science (American Association for the Advancement of Science) 365 (6457): eaat7487. doi:10.1126/science.aat7487. PMC 6822619. PMID 31488661.
- Saag, Lehti (July 24, 2017). “Extensive Farming in Estonia Started through a Sex-Biased Migration from the Steppe.”. Current Biology (Cell Press) 27 (14): 2185–2193. doi:10.1016/j.cub.2017.06.022. PMID 28712569.
- Wang, Chuan-Chao (February 4, 2019). “Ancient human genome-wide data from a 3000-year interval in the Caucasus corresponds with eco-geographic regions Eurasia”. Nature Communications 10 (1): 590. Bibcode: 2019NatCo..10..590W. doi:10.1038/s41467-018-08220-8. PMC 6360191. PMID 30713341.