西ヨーロッパ狩猟採集民
西ヨーロッパ狩猟採集民(Western Hunter Gatherer:WHG)(c. 15,000~5,000 BP)は、中石器時代に、イギリス諸島から西ヨーロッパ、南ヨーロッパ、中央ヨーロッパに広がっていた狩猟採集民集団および子孫を指す[2]。考古遺伝学の用語。現代ヨーロッパ人の祖先構成要素の一つであり[3]、東バルト海の住民にその遺伝子が多く残っている[4]。
|
1万4千aから9千aのヨーロッパにおける狩猟採集民の遺伝的祖先、
西ヨーロッパ狩猟採集民(WHG)の主要地域を青で示す。個々の番号は校正されたサンプルの日付に対応する[1]。 |
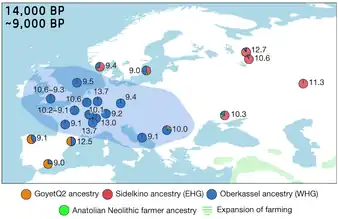
西ヨーロッパ狩猟採集民(WHG)はスカンジナビア狩猟採集民(英語: Scandinavian Hunter-Gatherer)(SHG)と東ヨーロッパ狩猟採集民(EHG)とともに、初期完新世ヨーロッパの後氷期における3つの主要な遺伝的集団の1つを構成していた。[5]。西ヨーロッパ狩猟採集民(WHG)と東ヨーロッパ狩猟採集民(EHG)の境界はドナウ川の下流から、ドニエプル川の西の森に沿って北上し、西のバルト海に向かっていた[3]。スカンジナビア狩猟採集民(SHG)は西ヨーロッパ狩猟採集民(WHG)と東ヨーロッパ狩猟採集民(EHG)が等しく混在していた。
新石器時代初期にアナトリアから移住した初期ヨーロッパ農耕民(EEF)の拡大によって西ヨーロッパ狩猟採集民(WHG)は少数派となったが、中期新石器時代には再び増加した。
新石器時代後期から青銅器時代初期にかけて、ポントス・カスピ海草原からやってきた西部ステップ牧畜民(WSH)が大規模に拡大し、西ヨーロッパ狩猟採集民(WHG)をさらに追いやった。
研究
西ヨーロッパ狩猟採集民(Western Hunter-Gatherers:WHG)は、ほとんどの現代ヨーロッパ人の祖先に寄与する明確な祖先構成要素として認識されている。 [6] ほとんどのヨーロッパ人は西ヨーロッパ狩猟採集民(WHG)、初期ヨーロッパ農耕民EEF、ポントス・カスピ海草原出身の西部ステップ牧畜民(WSH)の混合体としてモデル化することができる[7]。WHGは初期ヨーロッパ農耕民(EEF)のような他の古代グループにも祖先をもたらしたが、そのほとんどはアナトリア系であった[6]。 ヨーロッパにおける新石器時代の拡大とともに、ヨーロッパのほとんどの地域で初期ヨーロッパ農耕民(EEF)が遺伝子プールを支配するようになったが、西ヨーロッパ狩猟採集民(WHG)の祖先は初期新石器時代から中期新石器時代にかけて西ヨーロッパで復活した[8]。
ヨーロッパ大陸への拡大(14,000BP)
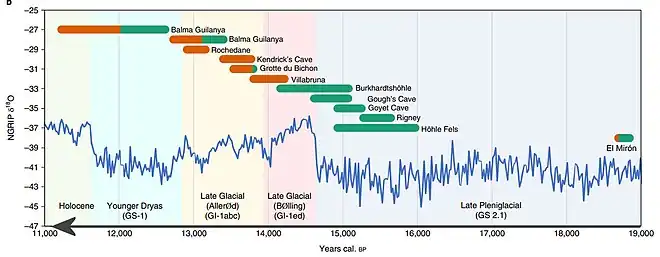
西ヨーロッパ狩猟採集民(WHG)そのものは、最終氷期極大期後の最初の大規模な温暖期であるボーリング・アレロド亜間氷期のおよそ1万4千年前に形成されたと考えられている。氷河期末期にヨーロッパで大きな人口移動があり、おそらく南東ヨーロッパや西アジアの最終氷期極大期の避難地からヨーロッパ大陸に人口が拡大したのであろう[9]。彼らの祖先は40,000BP頃に東ユーラシア人から分離し、古代北ユーラシア人(ANE)からは24,000BP(マリタ遺跡出土の少年の人骨の推定年代)以前に分離したと考えられている。この年代は、ヤナRHS遺跡の発見によって、西ユーラシア系と東ユーラシア系が分岐した直後の3万8千ya頃まで遡ることになった[6][10]。ヴァリーニら(2022)は、西ユーラシアの系統の分散と分裂のパターンは38,000年前よりも早くないとしており、ズラティ・クンやバチョ・キロ洞窟のような古い後期旧石器時代のヨーロッパの標本は、西ヨーロッパ狩猟採集民とは無関係であるとしている[11]。西ヨーロッパ狩猟採集民(WHG)は父系のハプログループC(特にクレードC-V20/C1a2)とIを保有していた。父方のハプログループC-V20は現代のスペインに住んでいる男性にも見出すことができ、この系統が西ヨーロッパに長く存在していたことを証明している。西ヨーロッパ狩猟採集民(WHG)は母方のハプログループU5も持っていた[12][13]。

2023年3月にネイチャー に掲載された遺伝子研究において、著者らは西ヨーロッパ狩猟採集民(WHG)の祖先がエピグラヴェット文化に関連する集団であることを発見した、西ヨーロッパ狩猟採集民(WHG)の祖先は、約14,000年前にマグダレニアン文化に関連した個体群に大きく取って代わったエピグラヴェット文化に関連した個体群であった(マグダレニアン文化に関連した個体群の祖先は、西部のグラヴェット文化(英語: Gravettian)文化、ソリュートレ文化(英語: Solutrean)、オーリニャック文化に関連した個体群であった)[12][14]。この研究では、WHGの祖先はオーバーカッセル1の同名の遺跡で14,000年前の2人の個体からアルプス以北で初めて発見された「オーバーカッセルの祖先」と改名されている、ヴィラブルーナの祖先系統とドルニー・ヴェストニツェクラスターに関連する系統と、コステンキ遺跡(英語: Kostyonki–Borshchyovo)-14やゴイエ洞窟遺跡(英語: Goyet Caves)(ゴイエQ116-1)の祖先の系統との混血としてモデル化することができる、とゴイエQ116-1の個体と、最終氷期最盛期以前のヨーロッパで発見された個体に関連するゴイエQ2の祖先。この研究では、オーバーカッセルのクラスターの個体はすべて、約75%のVillabrunaと25%のゴイエ-Q2の祖先、あるいは、約90%のヴィラブルーナと10%のFournolの祖先としてモデル化できるとしている[12]。この研究は、オーバーカッセル(Oberkassel)の祖先は、おそらくアルプスの西側あたりから、サンプリングされた西ヨーロッパ狩猟採集民(WHG)個体が遺伝的に均質である西ヨーロッパ、中央ヨーロッパ、イギリスへと拡大する前に、ほとんどがすでに形成されていたことを示唆している。これはヴィラブルーナとオーバーカッセルの祖先がイベリアに到着したのとは対照的で、ゴイエQ2の祖先を多く持つ地域集団との混血が繰り返されたようである。このことと、以前ヨーロッパの初期の狩猟採集民の間で観察された特定のハプログループC1a2 (Y染色体)クレードの存続は、この時期の南西ヨーロッパにおける遺伝的連続性が比較的高いことを示唆している[12]。
他の集団との交流
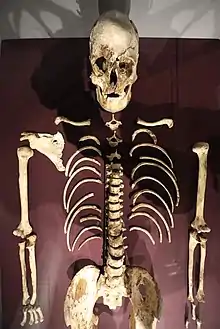
西ヨーロッパ狩猟採集民(WHG)はまた、初期のアナトリア農耕民や古代北西アフリカ人などのヨーロッパの境界の集団や[16]、東ヨーロッパ狩猟採集民などの他のヨーロッパの集団にも祖先を提供していることが判明した[17]。ただ、西ヨーロッパ狩猟採集民(WHG)と東ヨーロッパ狩猟採集民(EHG)の関係については、まだ結論が出ていない[17]。東ヨーロッパ狩猟採集民(EHG)の祖先は西ヨーロッパ狩猟採集民(WHG)に関連する系統から様々な度合いで派生しており、その範囲はわずか25%から最大91%で、残りは旧石器時代の古代北ユーラシア人(ANE)やおそらくコーカサス狩猟採集民からの遺伝子流入に関連しているとモデル化されている。[注釈 1][19][20]。
中石器時代のクンダ文化と東部バルト海のナルヴァ文化(英語: Narva culture)の人々は西ヨーロッパ狩猟採集民(WHG)と東ヨーロッパ狩猟採集民(EHG)の混血であり[21]、西ヨーロッパ狩猟採集民(WHG)に最も近い親和性を示した。ウクライナの中石器時代と新石器時代のサンプルは、西ヨーロッパ狩猟採集民(WHG)と東ヨーロッパ狩猟採集民(EHG)の間に緊密に集まっていることがわかったが、これはドニエプル急流(英語: Dnieper Rapids)における4,000年間の遺伝的連続性を示唆している。ウクライナのサンプルは母方のハプログループUにのみ属しており、これはヨーロッパの狩猟採集民サンプルの約80%に見られる[22]。
バルト海東部の櫛目文土器文化(CCC)の人々は東ヨーロッパ狩猟採集民(EHG)に近縁であった[23]。ほとんどの西ヨーロッパ狩猟採集民(WHG)とは異なり、東バルトの西ヨーロッパ狩猟採集民(WHG)は新石器時代にヨーロッパ農民の混血を受けなかった。そのため、バルト海東部の現代の集団は、ヨーロッパのどの集団よりも多くの西ヨーロッパ狩猟採集民(WHG)の祖先を持っている[21]。
スカンジナビア狩猟採集民(SHG)には、南からスカンジナビアに移住してきたと思われる西ヨーロッパ狩猟採集民(WHG)の構成要素と、後にノルウェー沿岸に沿って北東からスカンジナビアに移住してきた東ヨーロッパ狩猟採集民(EHG)の構成要素が混在していることが判明した。この仮説は、スカンディナヴィア西部と北部出身のSHGは、スカンディナヴィア東部出身者(約62%)よりも西ヨーロッパ狩猟採集民(WHG)の祖先が少ない(約51%)という証拠によって支持されている。スカンジナビアに入った西ヨーロッパ狩猟採集民(WHG)はアーレンスブルク文化(英語: Ahrensburg culture)に属していたと考えられている。東ヨーロッパ狩猟採集民(EHG)と西ヨーロッパ狩猟採集民(WHG)は、色素脱失の原因となる膜関連輸送体タンパク質(英語: Membrane-associated transporter protein)(SLC45A2)とナトリウム/カリウム/カルシウム交換体5(英語: Sodium/potassium/calcium exchanger 5)(SLC24A5)、および明るいヒトの虹彩の色の原因となるOCA2(OCA遺伝子/Herc2遺伝子)の対立遺伝子頻度がスカンジナビア狩猟採集民(SHG)よりも低かった[24]。
西ヨーロッパ、中央ヨーロッパ、バルカン半島の後期旧石器時代と中石器時代の11人の西ヨーロッパ狩猟採集民(WHG)のDNAを、Y-DNAハプログループとmtDNAハプログループに関して分析した。解析の結果、西ヨーロッパ狩猟採集民(WHG)はかつて西は大西洋岸から南はシチリア島、南東はバルカン半島まで、6000年以上にわたって広く分布していたことが示唆された[25]。この研究では、先史時代の東ヨーロッパの多数の個体の分析も行われた。37のサンプルが中石器時代と新石器時代のウクライナ(紀元前9500~6000年)から収集された。これらの集団は東ヨーロッパ狩猟採集民(EHG)とスカンジナビア狩猟採集民(SHG)の中間であると判断されたが、新石器時代には西ヨーロッパ狩猟採集民(WHG)の祖先が増加した。これらの個体から抽出されたY-DNAのサンプルは、もっぱらハプログループR (Y染色体)(特にR1b1のサブクレード)とIハプロタイプ(特にI2のサブクレード)に属していた。mtDNAはほぼ独占的にハプログループU (mtDNA)(特にU5のサブクレードとU4のサブクレード)に属していた[25]。主にバルト海東部のクンダ文化とナルヴァ文化(英語: Narva culture)に属していたズヴェイニェキ埋葬地(英語: Zvejnieki burial ground)の多数の個体が分析された。これらの個体は初期の段階ではほとんどが西ヨーロッパ狩猟採集民(WHG)系であったが、時間の経過とともに東ヨーロッパ狩猟採集民(EHG)系の祖先が優勢になった。この遺跡のY-DNAは、haplogroup R1b1a1aとI2a1のハプロタイプにほぼ独占的に属していた。mtDNAはもっぱらハプログループU(特にU2、U4、U5のサブクレード)に属していた[25]。バルカン新石器時代の人々は98%のアナトリア人の祖先と2%の西ヨーロッパ狩猟採集民(WHG)の祖先を持つことが判明した。銅器時代になると、ククテニ文化の人々は約20%の狩猟採集民の祖先を持つことが判明し、これは東ヨーロッパ狩猟採集民(EHG)と西ヨーロッパ狩猟採集民(WHG)の中間であった。球状アンフォラ文化の人々は約25%の西ヨーロッパ狩猟採集民(WHG)の祖先を持っていた。これは中央ヨーロッパの中期新石器時代のグループよりもかなり高い[25]。
新石器時代の農民による置換


2014年に行われた重要な研究によって、現代のヨーロッパ人の系統には3つの主要な構成要素が寄与していることが初めて明らかにされた:すなわち、西ヨーロッパ狩猟採集民(WHG、北ヨーロッパ人に最大50%の割合で存在)、古代北ユーラシア人(ANE、後のインド・ヨーロッパ語族拡大に関連する後期旧石器時代のシベリア人で、最大20%の割合で存在)、そして最後に初期ヨーロッパ農耕民(EEF、紀元前8,000年頃からヨーロッパに移住した主に近東起源の農耕民で、現在ではバルト地域の約30%から地中海地域の約90%の割合で存在)である。初期ヨーロッパ農耕民(EEF)の構成要素は、ドイツのシュトゥットガルトにある線帯文土器文化の墓に7000年ほど前に埋葬された女性のゲノムに基づいて特定された[27]。
この2014年の研究では、ヨーロッパ全土で西ヨーロッパ狩猟採集民(WHG)と初期ヨーロッパ農耕民(EEF)の遺伝的混合の証拠が見つかり、地中海ヨーロッパ(特にサルデーニャ、シチリア、マルタ、アシュケナージ・ユダヤ人)で初期ヨーロッパ農耕民(EEF)の寄与が最も大きく、北ヨーロッパとバスク人で西ヨーロッパ狩猟採集民(WHG)の寄与が最も大きかった[28]。
2014年以来、さらなる研究によりEEFとWHGの交雑の図式が精密なものになってきた。2017年、ハンガリー、ドイツ、スペインの銅器時代と新石器時代の180個体の古代DNAデータセットの分析で、長期にわたる交雑の証拠が見つかった。混血は地域の狩猟採集民集団と局所的に行われたため、3地域(ドイツ、イベリア、ハンガリー)の集団は新石器時代のすべての段階で遺伝的に区別可能であり、農耕民集団の中の西ヨーロッパ狩猟採集民(WHG)の祖先系統の比率は時間の経過とともに徐々に増加した。このことは、初期の農耕民が拡大した後、農耕民を均質化するほどの長く続いた移住はなく、農耕民と狩猟採集民は何世紀にもわたって共存し、紀元前5~4千年の間、(最初の接触時に1回だけ混血が起こったのではなく)徐々に混血が進行していたことを示唆している[29]。混血率は地理的に異なっていた;新石器時代後期、ハンガリーの農民における西ヨーロッパ狩猟採集民(WHG)の祖先は約10%、ドイツでは約25%、イベリアでは50%にも上った[30]。
イタリアのグロッタ・コンティネンツァ(Grotta Continenza)で発掘された遺骨を分析したところ、6つの父系ハプログループのうちc. 10,000 BC から 7000 BC の間に埋葬された3つはハプログループI2a-P214であった;西ヨーロッパ狩猟採集民(WHG)と推定される母方のハプログループのうち、2つはU5b1で1つはU5b3であった[31][32]。紀元前6000年頃、イタリアの西ヨーロッパ狩猟採集民(WHG)は遺伝的にほぼ完全に初期ヨーロッパ農耕民(EEF)(2つのミトコンドリアハプログループG2a2と1つのハプログループR1b)に取って代わられたが、その後の数千年の間に西ヨーロッパ狩猟採集民(WHG)の祖先はわずかに増加した[33]。
ブリテン島の新石器時代の人々はイベリアや中央ヨーロッパの初期・中期新石器時代の集団に近く、祖先の約75%がEEF、残りがヨーロッパ大陸の西ヨーロッパ狩猟採集民(WHG)に由来するとモデル化されている。彼らはその後、イギリス諸島の西ヨーロッパ狩猟採集民(WHG)集団とあまり混血することなく、西ヨーロッパ狩猟採集民(WHG)集団のほとんどに取って代わった[34]。
西ヨーロッパ狩猟採集民(WHG)は、ヨーロッパ全土の新石器時代の初期ヨーロッパ農耕民(EEF)集団に20~30%の祖先をもたらしたと推定されている。中石器時代の西ヨーロッパ狩猟採集民(WHG)の混血を経て、新石器時代の初期ヨーロッパ農耕民(EEF)集団に地元の病原体に対する特異的な適応が持ち込まれた可能性がある[35]。
形質的外見
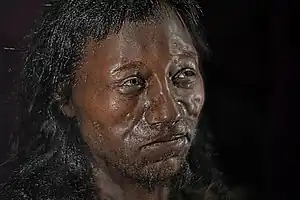
デイヴィッド・ライヒ(遺伝学者、David Reich)によれば、DNA解析の結果、西洋の狩猟採集民は一般的に暗い肌の色、暗い色の髪、青い目をしていた[39]。暗い色の皮膚は比較的最近に出アフリカを果たしたばかりであることによるものであり(すべてのホモ・サピエンス集団は当初黒い皮膚を持っていた)、青い目は虹彩の色素脱失を引き起こすOCA2遺伝子の変異の結果であった。
考古学者のグレーム・ウォレンは、彼らの肌の色はオリーブ色から黒色まであり、地域によって目の色や髪の色が異なっていたのではないかと推測している[40]。」。これは、遠縁の東ヨーロッパ狩猟採集民(EHG)が明るい肌、褐色の目または青い目、黒髪または明るい髪であることが示唆されていたのとは著しく異なる[41]。
SNPジェノタイピング(英語: SNP genotyping)が不完全だった2体の西ヨーロッパ狩猟採集民(WHG)骨格、ラ・ブラーニャ(La Braña)とチェダーマンは、暗い色または暗い色から黒であったと予測され、一方、完全なSNPsを持つ他の2体の西ヨーロッパ狩猟採集民(WHG)骨格、"スヴェン "とロシュブール・マン(英語: Loschbour man)は、それぞれ暗い色/中間色の肌と中間色の肌を持っていたと予測されている[42][24][注釈 2]。スペインの生物学者カルレス・ラルエサ=フォックスは、ラ・ブラニャ1号の個体は「正確な色合いはわからないが」暗い肌をしていたと述べた[44]。
2020年の研究によると、8500年から5000年前にアナトリア西部から初期ヨーロッパ農耕民(EEF)が、引き続き青銅器時代に西部ステップ牧畜民が到着したことで、ヨーロッパの集団は肌や髪が明るくなる方向に急速に進化した[45]。狩猟採集民と農耕民の混血は時折見られたが、広範ではなかったようだ[46]。

一部の著者は皮膚の色素沈着の復元に関して注意を表明している:Quillenら(2019)は、チェダーマンの 「暗い、または暗い〜黒い」肌の予測に関する研究を含め、一般的に「中石器時代にはヨーロッパの大部分で明るい肌の色が珍しかった」ことを示す研究を認めているが、「現代の集団で一般的な遺伝子座を用いた中石器時代と新石器時代の色素表現の復元は、まだ調査されていない他の遺伝子座も表現型に影響を与えた可能性があるため、ある程度注意して解釈すべきである」と警告している[47]。
チェダーマン・プロジェクトに携わったインディアナ大学-パデュー大学インディアナポリス校の遺伝学者スーザン・ウォルシュは、「単に彼の肌の色がわからないだけだ」と語った[38]。ドイツの生化学者ヨハネス・クラウゼは、西ヨーロッパの狩猟採集民の肌の色が、現在の中央アフリカの人々とアラブ地域の人々の肌の色のどちらに近いかはわからないと述べた。ただ、その後のヨーロッパ人の集団に見られる明るい肌の原因となる既知の突然変異を持っていなかったことだけは確かである[48]。
脚注
注釈
- 東ヨーロッパ狩猟採集民(EHG)は祖先の3/4が古代北ユーラシア人(ANE)から派生している。スカンジナビア狩猟採集民(SHG)は東ヨーロッパ狩猟採集民(EHG)と西ヨーロッパ狩猟採集民(WHG)のミックスであり、西ヨーロッパ狩猟採集民(WHG)は東ヨーロッパ狩猟採集民(EHG)とスイスの後期旧石器時代のビション洞窟(英語: Grotte du Bichon)のミックスである[18]
- これらの予測は、注意深く選択された36の一塩基多型(SNP)のパネルに基づいた多項ロジスティック回帰モデルを用いて得られたものであり、中間の肌を分類する感度は0.26と低かった(白人と黒人の肌ではそれぞれ0.99と0.90)。使用したモデルの精度は、「将来ゲノムワイド関連解析(GWAS)によって同定されれば、追加的な(しかし現在は未知の)SNP予測因子」によってさらに改善される可能性がある。[43]
出典
- Posth, Cosimo; Yu, He; Ghalichi, Ayshin (March 2023). “Palaeogenomics of Upper Palaeolithic to Neolithic European hunter-gatherers” (英語). Nature 615 (7950): 117–126. Bibcode: 2023Natur.615..117P. doi:10.1038/s41586-023-05726-0. ISSN 1476-4687. PMC 9977688. PMID 36859578.
- 最終氷期極大期の氷床の後退に伴い広がった。
- Anthony 2019b, p. 28.
- Davy, Tom; Ju, Dan; Mathieson, Iain; Skoglund, Pontus (April 2023). “Hunter-gatherer admixture facilitated natural selection in Neolithic European farmers”. Current Biology 33 (7): 1365–1371.e3. doi:10.1016/j.cub.2023.02.049. ISSN 0960-9822. PMC 10153476. PMID 36963383.
- Kashuba 2019:「それ以前の常染色体DNA研究によって、初期後氷期のヨーロッパには3つの遺伝的グループが存在することが示唆されている:西ヨーロッパ狩猟採集民(WHG)、東ヨーロッパ狩猟採集民(EHG)、スカンジナビア狩猟採集民(SHG)である4。 スカンジナビア狩猟採集民(SHG)は西ヨーロッパ狩猟採集民(WHG)と東ヨーロッパ狩猟採集民(EHG)の混合種としてモデル化されている。
- Lazaridis 2014.
- Mathieson 2015.
- Haak 2015.
- Fu, Qiaomei (2016). “The genetic history of Ice Age Europe”. Nature 534 (7606): 200–205. Bibcode: 2016Natur.534..200F. doi:10.1038/nature17993. PMC 4943878. PMID 27135931. "「少なくとも〜14,000年前のVillabruna群に始まり、分析されたすべてのヨーロッパの個体は、近東との親近性を示している。これは、氷河期後の最初の顕著な温暖化期であるBølling-Allerød 亜間氷期に相関している。考古学的には、南ヨーロッパではEpigravettianの文化的変遷、西ヨーロッパではMagdalenianからAzilianへの変遷と相関している。したがって、Villabruna群像の出現は、氷河期末期のヨーロッパ内の移動または人口移動を反映している可能性があり、この観察結果は、この時期にミトコンドリアDNA配列が入れ替わった証拠とも一致する。これらのパターンを説明する一つのシナリオは、氷河期後にヨーロッパ南東部または西アジアの避難所から集団が拡大し、ヨーロッパと近東の遺伝的祖先が一緒になったというものである。第6に、ヴィラブルーナ(Villabruna)群内では、全員ではないが、東アジア人と親和性のある個体もいる。今後の研究の重要な方向性は、ユーラシア西部の後期旧石器時代の人口史のより完全な全体像に到達するために、ヨーロッパ南東部と近東から同様の古代DNAデータを作成することである。"
- Sikora, Martin; Pitulko, Vladimir V.; Sousa, Vitor C.; Allentoft, Morten E.; Vinner, Lasse; Rasmussen, Simon; Margaryan, Ashot; de Barros Damgaard, Peter et al. (June 2019). “The population history of northeastern Siberia since the Pleistocene” (英語). Nature 570 (7760): 182–188. Bibcode: 2019Natur.570..182S. doi:10.1038/s41586-019-1279-z. ISSN 1476-4687. PMID 31168093.
- Vallini et al. 2022 (2022年7月4日). “Genetics and Material Culture Support Repeated Expansions into Paleolithic Eurasia from a Population Hub Out of Africa”. 2023年4月16日閲覧。
- Posth, C., Yu, H., Ghalichi, A. (2023). “Palaeogenomics of Upper Palaeolithic to Neolithic European hunter-gatherers”. Nature 615 (2 March 2023): 117–126. Bibcode: 2023Natur.615..117P. doi:10.1038/s41586-023-05726-0. PMC 9977688. PMID 36859578.
- Scozzari, Rosaria; Massaia, Andrea; D’Atanasio, Eugenia; Myres, Natalie M.; Perego, Ugo A.; Trombetta, Beniamino; Cruciani, Fulvio (2012-11-07). “Molecular Dissection of the Basal Clades in the Human Y Chromosome Phylogenetic Tree”. PLoS ONE 7 (11): e49170. doi:10.1371/journal.pone.0049170. ISSN 1932-6203. PMC 3492319. PMID 23145109. "この分析により、我々は南ヨーロッパで発見された染色体をハプログループC(C-V20またはC7、図S1)の中の新しい深い枝として同定した。これまでは、南ヨーロッパではC染色体(マーカーRPS4Y711によってのみ定義される)は数例しか見つかっていなかった[32]、[33]。ヨーロッパにおけるハプログループCの分布に関する我々の知識を向上させるために、1965人のヨーロッパ人を対象にRPS4Y711変異について調査したところ、南ヨーロッパからさらに1本のハプログループC染色体が同定され、この染色体もC7に分類された(データは示されていない)。"
- “Scientists Sequence Genomes of Prehistoric Hunter-Gatherers from Different Eurasian Cultures”. Sci.News. (2023年3月2日)
- Charlton, Sophy; Brace, Selina (November 2022). “Dual ancestries and ecologies of the Late Glacial Palaeolithic in Britain” (英語). Nature Ecology & Evolution 6 (11): 1658–1668. doi:10.1038/s41559-022-01883-z. ISSN 2397-334X. PMC 9630104. PMID 36280785.
- Simões, Luciana G.; Günther, Torsten; Martínez-Sánchez, Rafael M.; Vera-Rodríguez, Juan Carlos; Iriarte, Eneko; Rodríguez-Varela, Ricardo; Bokbot, Youssef; Valdiosera, Cristina et al. (2023-06-07). “Northwest African Neolithic initiated by migrants from Iberia and Levant” (英語). Nature 618 (7965): 550–556. Bibcode: 2023Natur.618..550S. doi:10.1038/s41586-023-06166-6. ISSN 1476-4687. PMC 10266975. PMID 37286608.
- Lazaridis, Iosif (2018-12-01). “The evolutionary history of human populations in Europe” (英語). Current Opinion in Genetics & Development. Genetics of Human Origins 53: 21–27. arXiv:1805.01579. doi:10.1016/j.gde.2018.06.007. ISSN 0959-437X. PMID 29960127.
- Lazaridis 2016.
- Haak, Wolfgang; Lazaridis, Iosif; Patterson, Nick; Rohland, Nadin; Mallick, Swapan; Llamas, Bastien; Brandt, Guido; Nordenfelt, Susanne et al. (June 2015). “Massive migration from the steppe was a source for Indo-European languages in Europe” (英語). Nature 522 (7555): 207–211. arXiv:1502.02783. Bibcode: 2015Natur.522..207H. doi:10.1038/nature14317. ISSN 1476-4687. PMC 5048219. PMID 25731166.
- Sikora, Martin; Pitulko, Vladimir V.; Sousa, Vitor C.; Allentoft, Morten E.; Vinner, Lasse; Rasmussen, Simon; Margaryan, Ashot; de Barros Damgaard, Peter et al. (June 2019). “The population history of northeastern Siberia since the Pleistocene” (英語). Nature 570 (7760): 182–188. Bibcode: 2019Natur.570..182S. doi:10.1038/s41586-019-1279-z. ISSN 1476-4687. PMID 31168093.
- Mittnik 2018.
- Jones 2017.
- Saag 2017.
- Günther 2018.
- Mathieson 2018.
- “Population genomic analysis of ancient and modern genomes yields new insights into the genetic ancestry of the Tyrolean Iceman and the genetic structure of Europe”. PLOS Genetics 10 (5): e1004353. (May 2014). doi:10.1371/journal.pgen.1004353. PMC 4014435. PMID 24809476.
- Lazaridis, Iosif; Patterson, Nick; Mittnik, Alissa (September 2014). “Ancient human genomes suggest three ancestral populations for present-day Europeans” (英語). Nature 513 (7518): 409–413. arXiv:1312.6639. Bibcode: 2014Natur.513..409L. doi:10.1038/nature13673. ISSN 1476-4687. PMC 4170574. PMID 25230663. "現在のヨーロッパ人のほとんどは、少なくとも3つの高度に分化した集団に由来する:西ヨーロッパの狩猟採集民は、すべてのヨーロッパ人の祖先になったが、近東人の祖先にはならなかった;ヨーロッパ人と近東人の両方に関連する、後期旧石器時代の古シベリア人に関連する古代北ユーラシア人;そして初期ヨーロッパの農耕民は、主に近東に起源を持つが、西ヨーロッパの狩猟採集民に関連する祖先も持っていた。"
- Lazaridis et al. (2014), Supplementary Information, p. 113.
- Lipson et al., "Parallel palaeogenomic transects reveal complex genetic history of early European farmers", Nature 551, 368–372 (16 November 2017) doi:10.1038/nature24476.
- Lipson et al. (2017), Fig 2.
- Antonio et al. 2019, Table 2 Sample Information, Rows 4-6.
- Antonio et al. 2019, p. 1.
- Antonio et al. 2019, p. 2, Fig. 1.
- Brace, Selina; Diekmann, Yoan; Booth, Thomas J.; van Dorp, Lucy; Faltyskova, Zuzana; Rohland, Nadin; Mallick, Swapan; Olalde, Iñigo et al. (2019). “Ancient genomes indicate population replacement in Early Neolithic Britain”. Nature Ecology & Evolution 3 (5): 765–771. doi:10.1038/s41559-019-0871-9. ISSN 2397-334X. PMC 6520225. PMID 30988490.
- Davy, Tom; Ju, Dan; Mathieson, Iain; Skoglund, Pontus (April 2023). “Hunter-gatherer admixture facilitated natural selection in Neolithic European farmers”. Current Biology 33 (7): 1365–1371.e3. doi:10.1016/j.cub.2023.02.049. ISSN 0960-9822. PMC 10153476. PMID 36963383.
- Conneller, Chantal (29 November 2021) (英語). The Mesolithic in Britain: Landscape and Society in Times of Change. Routledge. p. 126. ISBN 978-1-000-47515-9
- Details on the reconstruction from the Natural History Museum: “Cheddar Man: Mesolithic Britain's blue-eyed boy” (英語). www.nhm.ac.uk. Natural History Museum. Template:Cite webの呼び出しエラー:引数 accessdate は必須です。
- “Ancient 'dark skinned' Cheddar man find may not be true”. New Scientist (2018年2月21日). Template:Cite webの呼び出しエラー:引数 accessdate は必須です。
- Reich, David (2018). Who We Are and How We Hot Here : Ancient DNA and the New Science of the Human Past (First ed.). New York: Knopf Doubleday Publishing Group. ISBN 978-1101870334"古代のDNAデータの分析から、約8000年前の西ヨーロッパの狩猟採集民は、青い目をしていたが、暗い色の肌と暗い色の髪をしていたことがわかった。現代では珍しい組み合わせである。
- Warren, Graeme (2021). Hunter-Gatherer Ireland: making connections in an island world. Oxbow Books. ISBN 978-1789256840「例えば、西ヨーロッパ狩猟採集民(WHG)の皮膚の色素はオリーブ色から褐色、黒色まであり、目は青色か青緑色であった。ヨーロッパのいくつかの地域では、これはまた、ブロンドの髪と関連していた可能性があります
- Population genomics of Mesolithic Scandinavia: Investigating early postglacial migration routes and high-latitude adaptation S8 Text. Functional variation in ancient samples., doi:10.1371/journal.pbio.2003703.s013
- Brace, Selina; Diekmann, Yoan; Booth, Thomas J.; Faltyskova, Zuzana; Rohland, Nadin; Mallick, Swapan; Ferry, Matthew; Michel, Megan et al. (2019), “Population Replacement in Early Neolithic Britain”, Nature Ecology & Evolution 3 (5): 765–771, doi:10.1038/s41559-019-0871-9, PMC 6520225, PMID 30988490 [https://www.ncbi.nlm.nih.gov/pmc/articles/PMC6520225/bin/EMS82120-supplement-1.pdf Supplementary Material. Page 22: 2人の西ヨーロッパ狩猟採集民(WHG)(スペイン北部のラ・ブラーニャとチェダーマンと)は暗色または暗色から黒色の肌であったと予測され、1人(ルクセンブルクのロシュブール44)は中間の肌であったと予測されたが、色素沈着の特徴に時間的および/または地理的なばらつきがあることがわかり、少なくとも約8千BPの差で西ヨーロッパ狩猟採集民(WHG)に多様な肌の色素沈着レベルが共存していたことが示唆された。スヴェンは、ヨーロッパ人の明るい肌と一般的に関連する対立遺伝子がANFによって北西ヨーロッパに持ち込まれたという現在の仮説に沿って、暗い肌から中間の肌、そして暗い肌を持っていたと予測された。
- Walsh, Susan (2017). “Global skin colour prediction from DNA.”. Human Genetics 136 (7): 847–863. doi:10.1007/s00439-017-1808-5. PMC 5487854. PMID 28500464.
- “Dark Skin, Blue Eyes: Genes Paint 7,000-Year-Old European's Picture”. NBC News. (2014年1月26日)
- Hanel, Andrea; Carlberg, Carsten (September 2020). “Skin colour and vitamin D: An update” (英語). Experimental Dermatology 29 (9): 867. doi:10.1111/exd.14142. ISSN 0906-6705. PMID 32621306. "ホモ・サピエンスは約42,000年前に近東からヨーロッパに到着した。アフリカ起源と同様、これらの人類は黒い肌を持っていたが、OCA2遺伝子の変異(虹彩の色素脱失を引き起こす)により、彼らの多くは青い目を持っていた」(...)「南ヨーロッパと中央ヨーロッパでは、8500年から5000年前に西アナトリアからの農民によって、それら(明るい肌の対立遺伝子)が持ち込まれた。これはこれらの地域における新石器革命の始まりであり、より定住的な生活様式と特定の動植物の家畜化が特徴であった。(中略) "新石器革命による人口規模の急激な増加、例えば乳製品を成人の食料源として使用するようになったことや農業の勃興、またヤムナヤ牧畜民の大規模な広がりは、おそらくヨーロッパ人の集団が肌や髪の薄い人へと急速に淘汰されていった原因であろう""
- Callaway, Ewen (12 May 2022). “Ancient DNA maps 'dawn of farming'”. Nature. doi:10.1038/d41586-022-01322-w. PMID 35552521. "アナトリアに定着した初期の農耕民族は、約8000年前から飛び石のように西のヨーロッパへと移動していった。彼らは、時折(といっても広範囲ではないが)現地の狩猟採集民と混血した。"
- Quillen, Ellen (2019). “Shades of complexity: New perspectives on the evolution and genetic architecture of human skin”. American Journal of Biological Anthropology 168 (S67): 4–26. doi:10.1002/ajpa.23737. PMID 30408154. "彼らの分析によると、中石器時代のチェダーマンの肌の色は "暗いか、暗い〜黒に近い "と予測され、両者の肌の色は暗かった可能性が高い。これらの調査結果は、中石器時代にはヨーロッパの多くの地域で肌の色が明るかったことが珍しいことを示唆している。しかし、このことは、上記の2万ya以内という日付の推定と矛盾するものではない。これは、淘汰の開始を扱っているのであって、有利な対立遺伝子が固定された時期を扱っているわけではないのである(Beleza et al., 2013; Beleza, Johnson, et al., 2013)。古代ゲノムの研究では、中石器時代のヨーロッパ人の肌の色は一般的に暗いと予測されているが、rs1426654とrs16891982の派生対立遺伝子は、中石器時代にヨーロッパの集団で分離しており(González-Fortes et al., 2017; Günther et al., 2018; Mittnik et al.)、しかし、現代の集団で一般的な遺伝子座を用いた中石器時代と新石器時代の色素表現の復元は、まだ調査されていない他の遺伝子座も表現型に影響を与えた可能性があるため、ある程度慎重に解釈すべきである。"
- Krause, Johannes (2021). A Short History of Humanity A New History of Old Europe. l: Random House Publishing Group. ISBN 9780593229446
関連項目
参照
- Anthony, David W. (2019b). “Ancient DNA, Mating Networks, and the Anatolian Split”. In Serangeli, Matilde; Olander, Thomas. Dispersals and Diversification: Linguistic and Archaeological Perspectives on the Early Stages of Indo-European. BRILL. pp. 21–54. ISBN 978-9004416192
- Antonio, Margaret L. et al. (November 8, 2019). “Ancient Rome: A genetic crossroads of Europe and the Mediterranean”. Science (American Association for the Advancement of Science) 366 (6466): 708–714. Bibcode: 2019Sci...366..708A. doi:10.1126/science.aay6826. PMC 7093155. PMID 31699931.
- Günther, Thorsten (January 1, 2018). “Population genomics of Mesolithic Scandinavia: Investigating early postglacial migration routes and high-latitude adaptation”. PLOS Biology (PLOS) 16 (1): e2003703. doi:10.1371/journal.pbio.2003703. PMC 5760011. PMID 29315301.
- Haak, Wolfgang (June 11, 2015). “Massive migration from the steppe was a source for Indo-European languages in Europe”. Nature (Nature Research) 522 (7555): 207–211. arXiv:1502.02783. Bibcode: 2015Natur.522..207H. doi:10.1038/nature14317. PMC 5048219. PMID 25731166.
- Jones, Eppie R. (February 20, 2017). “The Neolithic Transition in the Baltic Was Not Driven by Admixture with Early European Farmers”. Current Biology (Cell Press) 27 (4): 576–582. doi:10.1016/j.cub.2016.12.060. PMC 5321670. PMID 28162894.
- Kashuba, Natalija (May 15, 2019). “Ancient DNA from mastics solidifies connection between material culture and genetics of mesolithic hunter–gatherers in Scandinavia”. Communications Biology (Nature Research) 2 (105): 185. doi:10.1038/s42003-019-0399-1. PMC 6520363. PMID 31123709.
- Lazaridis, Iosif (September 17, 2014). “Ancient human genomes suggest three ancestral populations for present-day Europeans”. Nature (Nature Research) 513 (7518): 409–413. arXiv:1312.6639. Bibcode: 2014Natur.513..409L. doi:10.1038/nature13673. hdl:11336/30563. PMC 4170574. PMID 25230663.
- Lazaridis, Iosif (July 25, 2016). “Genomic insights into the origin of farming in the ancient Near East”. Nature (Nature Research) 536 (7617): 419–424. Bibcode: 2016Natur.536..419L. doi:10.1038/nature19310. PMC 5003663. PMID 27459054.
- Mathieson, Iain (November 23, 2015). “Genome-wide patterns of selection in 230 ancient Eurasians”. Nature (Nature Research) 528 (7583): 499–503. Bibcode: 2015Natur.528..499M. doi:10.1038/nature16152. PMC 4918750. PMID 26595274.
- Mathieson, Iain (February 21, 2018). “The Genomic History of Southeastern Europe”. Nature (Nature Research) 555 (7695): 197–203. Bibcode: 2018Natur.555..197M. doi:10.1038/nature25778. PMC 6091220. PMID 29466330.
- Mittnik, Alisa (January 30, 2018). “The genetic prehistory of the Baltic Sea region”. Nature Communications (Nature Research) 16 (1): 442. Bibcode: 2018NatCo...9..442M. doi:10.1038/s41467-018-02825-9. PMC 5789860. PMID 29382937.
- Saag, Lehti (July 24, 2017). “Extensive Farming in Estonia Started through a Sex-Biased Migration from the Steppe.”. Current Biology (Cell Press) 27 (14): 2185–2193. doi:10.1016/j.cub.2017.06.022. PMID 28712569.
参考
- Anthony, David (Spring–Summer 2019). “Archaeology, Genetics, and Language in the Steppes: A Comment on Bomhard”. Journal of Indo-European Studies 47 (1–2) 2020年1月9日閲覧。.
- Lazaridis, Iosif (December 2018). “The evolutionary history of human populations in Europe”. Current Opinion in Genetics & Development (Elsevier) 53: 21–27. arXiv:1805.01579. doi:10.1016/j.gde.2018.06.007. PMID 29960127 2020年7月15日閲覧。.