アンゴラの植物相
Brummitt による地理区分
アンゴラは Brummitt (2001) による植物分布の地理区分では基本的に国土の東側に隣接するザンビアと共に「アフリカ > 熱帯アフリカ > 熱帯アフリカ南部 (英: South Tropical Africa)」とされているが、北側をコンゴ共和国、東側から南側にかけてをコンゴ民主共和国に囲まれたアンゴラ領の飛び地であるカビンダ州に関しては例外的に「アフリカ > 熱帯アフリカ > 熱帯アフリカ西中央部 (英: West-Central Tropical Africa) > カビンダ」とされている。本文で述べるアンゴラの植物相とは、顕在的あるいは潜在的にカビンダに関する要素も含んだものであるということに留意されたい。
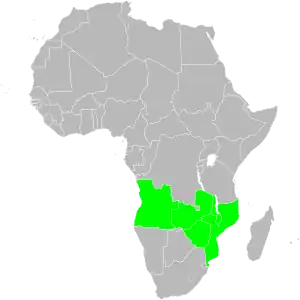 Brummitt (2001) による South Tropical America の区分。カビンダ州を除くアンゴラ全土がここに属す。
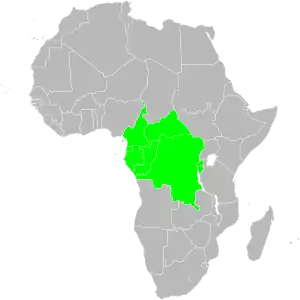 Brummitt (2001) による West-Central Tropical America の区分。コンゴ共和国とコンゴ民主共和国がこの区分であり、この2国によりアンゴラ本土と隔てられているカビンダ州もこちらの区分となる。
生物地理学的観点と植生
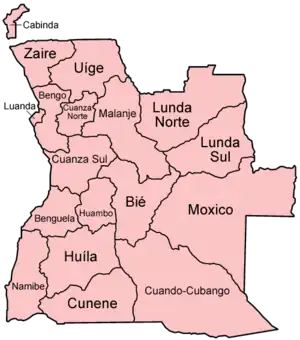
極端に対照的な地形、気候、降雨量の存在により、アンゴラは White (1983) により提唱された6つの植物区系[注 1]あるいは地域的な固有性の中心が一堂に会する地となっている[1]。
カビンダ州、ウイジェ州、クアンザ・ノルテ州のギニア・コンゴ林の外れの面積は南へ行くに従い小さくなっていき、クアンザ・スル州のガベラ(Gabela)やクンビラ(Cumbira)の孤立したコーヒー林へと落ち着く[1]。クアンゴ川やカサイ川の北方へと流れるウイジェ州やルンダ・ノルテ州内の支流の沿岸には、純正なコンゴ林が指状に突き出している[1]。しかし、アンゴラ北部ではギニア・コンゴ的な植生とザンベジ的な植生との遷移地帯が多く形成され、うちザンベジ的植生は残りの国土を覆い尽くし、例外となるのは高地において断片的に見られるアフリカ山地性の固有性の中心や、より乾燥した南西部のカルー・ナミブ地帯やカラハリ・ハイフェルト地帯である[1]。
地理的に見て、アンゴラの東半分はカラハリ砂漠の砂が深く堆積していることが特筆に値し、その一方で西へ行けば結晶岩が優勢となっている[1]。海洋性の沈殿物や最近の砂が海岸沿岸の平野を覆う[2][3][1]。海岸沿岸の平野は南部が乾燥しているが、これは湧き出る冷たいベンゲラ海流によるもので、さらに北へ行くと半乾燥性となる[1]。降雨の大半は断崖や高原で発生し、北上すると勢いが強くなる[1]。アンゴラ中央部の大きな河川系の源流はオカヴァンゴ川(クイト川およびクバンゴ川)、インド洋(クアンド川、ルンゲ・ブンゴ川、ザンベジ川)、大西洋(カサイ川、クアンゴ川、クアンザ川、クネネ川)へと流れ込む[1]。
アンゴラの植生を扱った著作としてスタンダードであるものは Barbosa (1970) で、これは砂漠から湿潤常緑林や沼沢林に至るまで32の植生の類型を認めている[1]。Huntley & Matos (1994) は簡潔な要約を提供している[1]。そしてバルボサの植生地図の原型となったのが Gossweiler & Mendonça (1939) という開拓的な労作であり、これは Airy Shaw (1947) により追加された英語版の要約を通じて広く耳目を集めることとなったものである[1]。
アンゴラは海藻に関しても多様であり、169種が記録されている[4][5][1]。生物地理学的に見て、アンゴラの海藻類は熱帯西アフリカの藻類と群を成すが、南緯13度付近からはナミビアのベンゲラ海洋州や南アフリカ西部由来の主に冷涼水の種を含むよく発達した南部要素と群を成す[1]。
アンゴラの南東端と隣接するボツワナの湿地生態系の筆頭であるオカヴァンゴ・デルタは、アンゴラの主要な支流2つ(クイト川およびクバンゴ川 = オカヴァンゴ川)に全面的に依存しており、この2ヶ国にナミビアも併せたオカヴァンゴ水系の集水域に着目した調査も行われ始めている(参照: #近年の植物学調査)[6]。
バイオームとエコリージョン
バイオーム(生物群系)とは「生育地として共にグループ分けされた類似する特色を有する植生の類型、および最も広い地球規模の生育地のカテゴリ」と定義される概念で[7]、またエコリージョンという概念は「
- 熱帯および亜熱帯湿潤林
- 高山性草原および低木林
- 熱帯および亜熱帯草原、サバンナ、低木林、ウッドランド
- 熱帯および亜熱帯乾燥広葉樹林
- 砂漠および乾性低木林
- マングローブ
- 冠水草原およびサバンナ
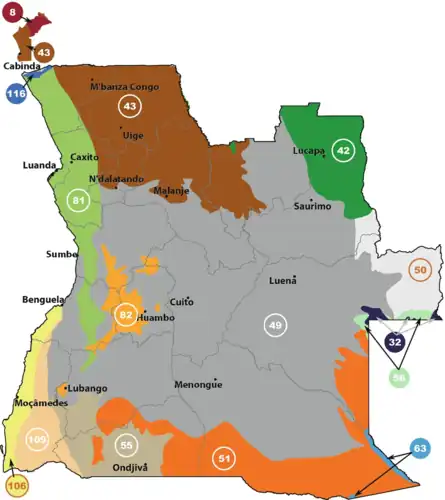
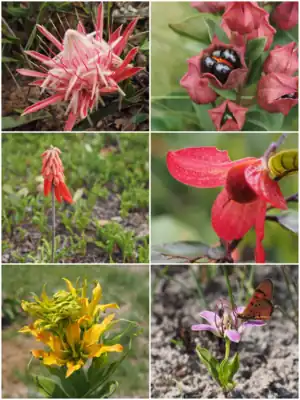
Burgess et al. (2004) はアフリカやその島嶼部全体のバイオーム内に総計119の地上性エコリージョンを認めたが、バージェスらの評価に基づけばアンゴラはアフリカにおいて単にバイオームの多様性が最大であるというだけにとどまらず、エコリージョンの多様性も15種類と、2番目に最大のものということになる[11][注 2]。Burgess et al. (2004) の定義に基づいたアフリカのバイオームやエコリージョンと、Barbosa (1970) のアンゴラの植生の類型とを比較し、指標となる属を付け加えた表は以下の通りとなる[12]。各エコリージョン番号の背景の色は後に示す地図の色分けに対応している。
| エコリージョン番号 | バイオーム | エコリージョン名 | 画像 | バルボサの番号、呼称、主要属 | 説明 |
|---|---|---|---|---|---|
| 8 | 熱帯および亜熱帯林 | 大西洋赤道海岸林 | 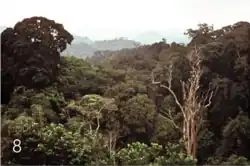 |
1, 2. Closed Forest | アンゴラではカビンダ州のみのエコリージョンであるが、ほかにカメルーン、赤道ギニア、ガボン、コンゴ共和国、コンゴ民主共和国にも跨っており、平均年間最高気温は24–27℃、平均年間最低気温は18–21℃で季節の違いはほぼ存在せず、年間降雨量はエコリージョン南部では1200ミリメートルである[13]。 |
| ジルベルテオデンドロン属(マメ科)、Librevillea属(マメ科)、Tetraberlinia属(マメ科) | |||||
| 32 | 熱帯および亜熱帯乾燥広葉樹林 | ザンベジクリプトセパルム乾燥林 | 4. Closed Forest | ザンビアにも跨るエコリージョンで最高気温30℃、最低気温7℃の熱帯気候[14]、平均年間降水量は800–1200ミリメートルであり、高温の乾期(8月–10月)、高温の湿期(11月–4月)、冷涼な乾期(5月–7月)という3つの季節が認められる[15]。 | |
| Cryptosepalum属(マメ科)、ブラキステギア属(Brachystegia; マメ科)、Erythrophleum属(マメ科) | |||||
| 42 | 熱帯および亜熱帯草原、サバンナ、低木林、ウッドランド | 南部コンゴ林・サバンナモザイク | 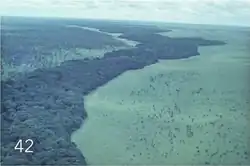 |
8. Forest-Savanna Mosaic | アンゴラでは北東端のみがこのエコリージョンであるが、コンゴ民主共和国にも跨っており、平均年間最高気温は27–30℃、平均年間最低気温は18–21℃、年間降雨量は1400ミリメートルである[16]。 |
| Marquesia属(フタバガキ科)、Berlinia属(マメ科)、Daniellia属(マメ科)、Hymenocardia属(コミカンソウ科) | |||||
| 43 | 西部コンゴ林・サバンナモザイク | 3. Closed Forest | ガボン、コンゴ共和国、コンゴ民主共和国にも跨っており、季節の変化に乏しい熱帯気候で平均最高気温は低地の30℃から高原の21℃と幅があり、平均最低気温も低地で21℃、高原では15℃と開きがある[17]。 | ||
| エノキ属(Celtis; アサ科)、ネムノキ属(Albizia; マメ科) | |||||
| 13. Thicket-Forest Mosaic | |||||
| バンレイシ属(Annona; バンレイシ科)、Piliostigma属(マメ科)、メリケンカルカヤ属(Andropogon; イネ科)、Hyparrhenia(イネ科) | |||||
| 49 | アンゴラミオンボウッドランド | 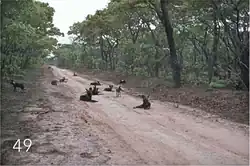 |
16, 17, 18. Woodland | 「アンゴラ」の名を冠し、アンゴラ中央部の全域がこのエコリージョンに属すものの、コンゴ民主共和国やザンビアにも跨っており、夏に降雨が集中する熱帯気候で、年間平均降雨量はエコリージョンの南部では800ミリメートル未満だが、北部と西部ではおよそ1400ミリメートルである[18][19]。平均最高気温は南部で30℃前後だが高度が上がると24℃に下がり、最低気温は低地で15℃-18℃、高地で9℃となり、氷点下となる場合もあり得る[19]。 | |
| ブラキステギア属、Julbernardia属(マメ科)、アフリカコパールノキ属[注 3](Guibourtia; マメ科)、ブルケア属(マメ科)、インドカリン属[注 4](Pterocarpus; マメ科) | |||||
| 50 | 中央ザンベジミオンボウッドランド | 17, 19. Woodland | アンゴラでは北東部のみに限られているものの、ザンビア、コンゴ民主共和国、ブルンジ、タンザニア、マラウイにまで跨るエコリージョンであり、降雨は単一モードで最も暑い11月–4月に集中し[20]、冷涼期は旱魃が最長で7ヶ月間続く[21]。年間降雨量は1000-1200ミリメートルで、エコリージョン南西部の高度の高い地帯では最高1400ミリメートルまで降る[21]。 | ||
| ブラキステギア属、Julbernardia属、Cryptosepalum属 | |||||
| 51 | ザンベジバイキアエアウッドランド | 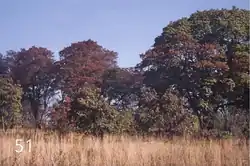 |
25. Tree and Shrub Savanna | ナミビア、ボツワナ、ザンビア、ジンバブエにも跨る高温半乾燥気候のエコリージョンであり、降雨は11月–4月に特に集中し、平均年間降雨量はエコリージョン北限のアンゴラやザンビアではおよそ800ミリメートルである[22]。降った雨はカラハリ砂漠の砂に吸い取られて深部に蓄えられ、深く根を張る高木のある森林やウッドランドの植生は長い乾期を耐えることもあり得る[22]。平均最高気温は27–30℃、平均最低気温は9–12℃である[22]。 | |
| バイキアエア属(マメ科)、アフリカコパールノキ属、インドカリン属、シクンシ属[注 5](Combretum; シクンシ科) | |||||
| 55 | アンゴラモパーネウッドランド | 20. Woodland | 「アンゴラ」の名を冠してはいるがナミビアにも跨り、年間平均降雨量は350–500ミリメートルだが海岸砂漠地帯の内陸では増加し[23]、ふつう夏期(8月-4月)に降り、晩夏である2月に平均降雨量が最大(約110ミリメートル)となるが、年間降雨量は予測不可能である[24]。 | ||
| Colophospermum属[注 6](マメ科)、ハズ属(Croton; トウダイグサ科)、シクンシ属、Sclerocarya属(ウルシ科)、アカシア属(マメ科) | |||||
| 56 | 西部ザンベジ草原 | 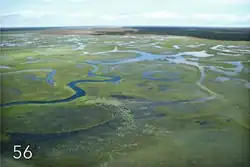 |
31. Grasslands | ザンビアにも跨り、熱帯サバンナ気候で、高温の乾期(8月-10月)、高温の湿期(11月-4月)、冷涼な乾期(5月-7月)の3つの季節があり、年間平均降雨量は800-1000ミリメートル、年間最高気温は27℃前後、年間最低気温は12–15℃である[25]。 | |
| Loudetia属(イネ科)、Monocymbium属(イネ科)、Tristachya属(イネ科)、パリナリ属[注 7](Parinari; クリソバラヌス科)、フトモモ属(Syzygium; フトモモ科) | |||||
| 63 | 冠水草原およびサバンナ | ザンベジ冠水草原 | 31. Grasslands | ほかにボツワナ、ザンビア、コンゴ民主共和国、タンザニア、マラウイ、モザンビークにまで跨り、季節の違いのある熱帯性気候で、降雨は夏に見られる[26]。エコリージョン南部では降雨のほとんどが11月から3月にかけてである[20]が、降雨量はエコリージョン内でも地域差が激しい[26]。平均最高気温は18–27℃、平均最低気温は9–18℃で、高度の違いに依存する[26]。 | |
| Loudetia属、ヒエ属(Echinochloa; イネ科)、イネ属(Oryza; イネ科) | |||||
| 81 | 高山性草原および低木林 | アンゴラ断崖サバンナおよびウッドランド | 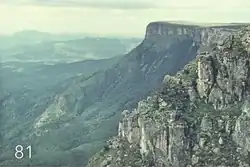 |
10, 11, 22, 23. Forest-Savanna-Woodland-Thicket Mosaic | アンゴラのみに設定されたエコリージョンで、熱帯気候であり、少なくとも海岸沿いでは年間降雨量は400–800ミリメートルと少ないが、1600ミリメートルを超えると考えられる地帯も存在する[27][28]。気温は高度と緯度により変動し、クエヴェ川(Cueve)北の沿岸地帯内陸縁の平均年間気温が25℃超えと最高となり[27]、平均年間気温の最低値は次の82番のエコリージョンの高地との境界沿いに見られる約20℃である[28]。 |
| バオバブ属(Adansonia; アオイ科)、アカシア属、ネムノキ属、エノキ属、Piliostigma属 | |||||
| 82 | アンゴラ高山林・草原モザイク | 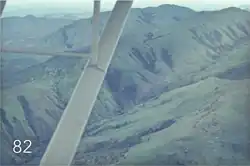 |
6, 32. Relict Forest, Grasslands | アンゴラのみに設定されたエコリージョンであり、年間平均降雨量は1200–1600ミリメートルの間で、高度が上がるにつれて増加する[29]。降雨は夏期に集中し、7月から8月にかけてが最も冷涼であり、この期間には産地において氷点下の気温が多々記録される[27][30]。平均年間気温は17–20℃である[31][32]。 | |
| インドカリン属、アポディテス属(Apodytes; メッテニウサ科)、トベラ属(Pittosporum; トベラ科)、プロテア属(ヤマモガシ科)、エリカ属(ツツジ科) | |||||
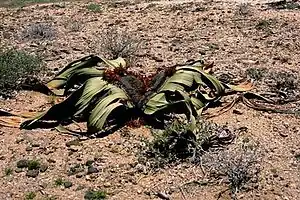
| 106 | 砂漠および乾性低木林 | カオコフェルト砂漠 | 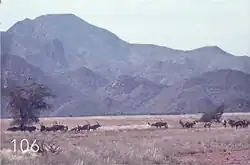 |
28, 29. Desert, Steppes | ナミビアにも跨っており、降雨はほとんどが10月から3月にかけて起こる散発的な雷雨である[33]が、最大の特色は年間降雨量が100ミリメートルに満たず、それがいつであるのかが非常に予測困難であるということである[34]。気温差は内陸部で激しくなり、下は氷点下、上は50℃超えとなる[34]。 |
| ウェルウィッチア属、ジゴフィルム属(Zygophyllum; ハマビシ科)、Stipagrostis属(イネ科)、Odyssea属(イネ科) | |||||
| 109 | ナミブ断崖ウッドランド | 27. Steppes | アンゴラからナミビアを通って南アフリカ共和国にまで跨るエコリージョンで、降雨量は西部が60ミリメートル、東部でも200ミリメートルと低く、降雨は多くが夏期(10月–3月)の雷雨の形を取り、乾期は降雨の予測が困難となる[23][35]。湿度も低いがこれが気温差の激しさの原因となり、冬期に氷点下となることもざらにあり、ところによってはマイナス9℃まで落ち込む[35]。平均月間最高気温は時に40℃を超え得る[36][35]。 | ||
| アカシア属、モツヤクジュ属[注 8](Commiphora; カンラン科)、Colophospermum属、Sesamothamnus属(ゴマ科)、Rhigozum属(ノウゼンカズラ科) | |||||
| 116 | マングローブ | 中央アフリカマングローブ | 14 A. Mangroves | ほかにガーナ、ナイジェリア、カメルーン、赤道ギニア、ガボン、コンゴ民主共和国にも見られるエコリージョンであり、基本的には湿潤熱帯気候であるがアンゴラへ向かうにつれて温帯性となり、アンゴラにおける平均年間降雨量は750ミリメートルである[37]。 | |
| オオバヒルギ属[注 9](Rhizophora; ヒルギ科)、ヒルギダマシ属(Avicennia; キツネノマゴ科)、ラフィア属[注 10](ヤシ科)、アブラヤシ属(Elaeis; ヤシ科) |
これらのエコリージョンのアンゴラ国内における分布を地図で表すと以下のようになる[39]。
多様性と固有性
2019年2月21日までの時点でアンゴラにはおよそ6850種の在来植物種が生育し、そのうちアンゴラ固有であるのは14.8パーセント前後とされている[40]。エストレラ・フィゲイレドとギデオン・スミスによる主導の下で世界中から集まった32名によりアンゴラの維管束植物のチェックリストが初めて編纂された(Figueiredo & Smith (2008))[41][42]。総計6735種の在来種と226種の非在来種が記録された[42]。アンゴラにとっての外来種の情報はゴスヴァイラーにより文書化されている(Gossweiler (1948)、Gossweiler (1949)、Gossweiler (1950))[43]。その中でも特に4種は深刻な侵略的外来種である[44][45]。Figueiredo & Smith (2008) の発表以来アンゴラ産の種はさらに44種が新種記載されるか International Plant Names Index 上に登録されるかしており、ルンダ・ノルテ州やその他の場所に関する目録の作成で70程度の種数がアンゴラのリストに追加されたため、アンゴラの在来植物の総種数は6850前後であると見られている[45]。
そして Figueiredo, Smith & César (2009) は Figueiredo & Smith (2008) を根拠として、全体の14.8パーセントにあたる997種がアンゴラ固有であるとしている[注 11]。たとえばセリ科の Pseudoselinum C.Norman[46]、アカネ科の Ganguelia Robbr. のように属単位で固有のものも存在する[45]。
科別で見るとマメ科(934種)、イネ科(526種)、キク科(463種)、アカネ科(444種)がアンゴラの植物相中で最も多様な部類に入り、タヌキマメ属(Crotalaria L.; マメ科)とトウダイグサ属(Euphorbia L.; トウダイグサ科)はそれぞれ40種以上アンゴラに固有のものが存在する属である[45]。
Linder (2001) は熱帯アフリカには固有性の中心が6つ存在すると認定したが、そのうちの2つがアンゴラの一部あるいは全土に含まれる[45]。 近年の RAINBIO のデータ分析(Droissart et al. (2018))ではアンゴラ西部の高地が独立の植物相のバイオリージョンであると認定されているが、データは限定的なものであり、アンゴラの残りの地域に関しては論じかねる[45]。ウイラ高原は一貫して固有種の豊富な地域として際立っており[47][46][48][45]、Soares et al. (2009) はウイラ州内だけで83種のマメ科の固有種を記録している。アカネ科に関しても、ウイラ州に固有のものが最も多く、アカネ科植物の採取活動も同州におけるものが最も盛んに行われてきたとしている[49]。ただ Linder (2001) が種の多様性や固有性が高い地域の一つとして挙げているザンベジ・コンゴ流域はアンゴラ東部、ザンビア北部、コンゴ民主共和国のカタンガ地方に跨っているが、この流域のうちアンゴラ領の部分に関しては十分な文書化が進んでいない[42]。
ただ Goyder & Gonçalves (2019) の執筆が行われた時点ではIUCNレッドリストによる絶滅危機の評価が行われたアンゴラの維管束植物は399種のみであり、その中で脅威に曝されているというカテゴリーに入れられているのはたったの36種にとどまっている[50]。そして既に上述したアンゴラ固有と認められる属は全く評価が行われていない[50]。
採取活動の歴史
現存する最古のアンゴラ産植物コレクションは1669年[51][52]か、より可能性の高い1696年[53][54][55][56]とされ、それらはメイソン(Mason)という人物によるルアンダ地方産のものである[57][注 12]。これらはイギリスの薬剤師ジェイムズ・ペティヴァー経由で北アイルランド出身の医師ハンス・スローンの手に渡り、大英博物館(現在はロンドン自然史博物館)の中核となる収蔵品に加わっている[57]。他にスローン植物標本室の収蔵品でリンネ以前かつアンゴラ産のものには、グラッドマン(Gladman)やウィリアム・ブラウン(William Browne)の手によるものがある[57]。ポルトガル人最古の採取者は博物学者ジョアキン・ジョゼ・ダ・シルヴァ(Joaquim José da Silva)であり、彼はアンゴラの沿岸部や西部の断崖において1783年から1804年(あるいは1808年)にかけて採取活動を行い、その時の標本はナポレオンによる半島戦争の最中である1808年にリスボンから現在の収蔵先であるパリへと渡った[55][59][57]。
18世紀や19世紀初頭の探検家たちの大半はアンゴラ沿岸部しか訪れていないが、1850年代までには植物学者たちや探検家たちは内陸部のより高度のある地帯の植物を文書の形で記録し始めていた[60]。その中の一人がフリードリヒ・ヴェルヴィッチュである(採取活動を含めた詳細は個別記事を参照)。1880年代までに、ほかにジョゼ・マリア・アントゥネス(José Maria Antunes; 宣教師)や Eugène Dekindt(宣教師)、フランシスコ・ニュートン(Francisco Newton)やヘンリー・ジョンストン(Henry Johnston)もウイラ高原で重要な採取活動を行っている[60]。
ドイツ人による調査旅行も19世紀中に3回[注 13]行われ、4回目のクネネ・ザンベジ遠征は1899年8月11日にナミベ(現モサメデス)を発ち、東方を目指し、1900年3月にクアンド川に達するというもので、これに参加した植物学者フーゴ・バウムは1000組の標本を採取した[61][62][60]。
20世紀前半にはキュー王立植物園で訓練を積んだスイス出身のジョン・ゴスヴァイラーが50年の歳月をかけてアンゴラの全州で採取活動を行い、標本の組は1万4000を超えた[60]。最後の2年(1946年および1948年)分は北東の遠隔地で得られたものであり、カヴァコによるルンダの植物誌の基盤となった[63][60]。他に植民地時代の採取者で重要であるのは植物学使節団(ポルトガル語: Missões Botânicas)に参加したポルトガル人やイギリス人の Luiz Carriso、フランシスコ・メンドンサ、アーサー・エクセル、フランシスコ・デ・ソウザ(Francisco de Sousa)といった面々で、その成果は Conspectus Florae Angolensis の初期の部の基盤や、最初のアンゴラ植生地図(Gossweiler & Mendonça (1939))となった[64]。1950年から1975年にかけても数多くの人物により採取活動が行われた[注 14]が、1975年にアンゴラが独立し、長きにわたって続くことになる内戦が開始すると、採取活動には20世紀末までブレーキがかかることとなった[42]。ゴスヴァイラーやその後継者であるブリト・テイシェイラ(Brito Teixeira)の努力にもかかわらず、アンゴラにおける採取活動はもっぱら国土の西半部に偏っており、モシコ州、クアンド・クバンゴ州、南北ルンダ州やウイジェ州の大部分における採取活動は依然として不十分である[65][66][42]。
近年の植物学調査
1968年にはアンゴラの国立公園はキサマ国立公園、カメイア国立公園、イオナ国立公園の3つだけであり、自然保護区もムパとルアンド(Luando)の2つ、後は数々の森林や動物保護区という状況であった[67]。1971年から1975年にかけては生物多様性保全のために重要度の高い地域を認定するべく、フィールド調査のプログラムが組まれた[68][18][2][1]。これらの調査はウイラ州、ナミベ州、クアンザ・スル州、ウアンボ州でのフィールドワークによって補完され[69][70][1]、「アンゴラ保護域拡張戦略」 (英: Angolan Proctedted Area Expansion Strategy – APAES) へとまとめられた[71][1]。APAES の報告書は2010年にアンゴラの環境省に提出され、2011年4月28日の閣僚会議 ポルトガル語: Conselho do Ministros で採択された提案の基礎となった[72][73]。
アンゴラにおける近年の植物学的活動は、かなりの程度この保全計画文書で強調された以下の11地域に焦点を当てたものとなっている[73]。
- マイオンベ (Maiombe; カビンダ州)
- セラ・ド・ピンガノ (Serra do Pingano; ウイジェ州)
- ラゴア・カルンボ (Lagoa Carumbo; ルンダ・ノルテ州)
- セラ・ンバンゴ (Serra Mbango; マランジェ州)
- ガベラ・フォレスト (英: Gabela Forest; クアンザ・スル州)
- クンビラ・フォレスト (英: Cumbira Forest; クアンザ・スル州)
- モロ・ナンバ (Morro Namba; クアンザ・スル州)
- モロ・モコ (ウアンボ州)
- セラ・ダ・ネヴェ (ナミベ州)
- セラ・ダ・シェラ (ウイラ州)
- ルイアナ (クアンド・クバンゴ州)
2009年には迅速生物多様性評価(英: Rapid Biodiversity Assessment)ならびにウイラ高原やイオナ国立公園への訓練遠征が催され、10ヶ国から集まった30人の科学者たちと15人のアンゴラ人学生たちが参加した[73]。2700組を超す植物標本が採取されて南アフリカ共和国プレトリアの国立植物標本室へと収められ、その重複標本はアンゴラ国内のルバンゴにある教育学高等研究所(ISCED)ウイラ植物標本室に収蔵された[69][73]。
アンゴラ北部ではセラ・ド・ピンガノの湿潤コーヒー林やウイジェ州のより広域における植物学調査が、ドレスデン出身のチームによりキンパ・ヴィタ大学との協力で始められている[74][75][73]。こうした調査は、アンゴラ産コケ植物のリストの改訂[76][77]、維管束植物の新種記載[78]、民族植物学的な査定[79][80][81][82]といった成果を齎した[73]。総計でおよそ820種が同定され、その内のいくつかはアンゴラでの記録が新たに確認されたものである[73]。
ラゴア・カルンボ、ルシコ(Luxico)の谷、ルエレ(Luele)の谷、ロヴア(Lovua)の谷は2011年と2013年にキュー王立植物園、アンゴラ環境省、ルアンダのアゴスティーニョ・ネト大学のチームにより調査され、ルンダ・ノルテ州の植物相として知られている分を Cavaco (1959) と比較して3倍にまで増加させた[73]。報告を突き合わせると752の分類群(うち72がアンゴラの植物相に初めて追加されたもの)に22種の新種が存在する可能性が文書の形で表されたということになる[83][84][73]。ルンダ・ノルテ州のこの部分には溪谷のコンゴ沼沢林、斜面上の湿潤ミオンボウッドランド、高原のザンベジサバンナ草原がある[73]。
クンビラにあるギニア・コンゴ林の孤立した区画は迅速な植物学的査定の主題とされ、100枚を超す標本が採取されているが、その中にはアンゴラとしては初のギニア・コンゴ林の記録や、学界にとって新種の可能性があるものも含まれていた[85][73]。
モロ・ナンバ(ナンバ山)で採取された植物に関しては、Goyder & Gonçalves (2019) の執筆時点ではキュー/ルバンゴのチームによる研究が進められている最中であるとされている。モロ・ナンバとルバンゴ断崖地帯からさらに南にかけてはいずれもアフリカ山地林、草原、ミオンボのモザイクであるという共通点はあるものの、ルバンゴの木本の植生の大半は現在退行が深刻な状況である[73]。
セラ・ダ・ネヴェやセラ・ダ・シェラは2013年に短期間のみ、アンゴラ断崖地帯の広域の植物相調査の一環として南アフリカ共和国ローズ大学、ISCED、キュー王立植物園のあるチームが訪れており、この時採取された標本の組を基に1-2種の新種の記載が行われている[86][6]。
上記のような保護域拡張戦略の調査に加え、アンゴラ・ナミビア・ボツワナの3国国境地帯におけるオカヴァンゴ水系の集水域に焦点を当てた研究調査も始められている[6]。南部アフリカ地域環境プログラム(英: Southern Africa Regional Environmental Program; SAREP)と OKACOM は2013年にキュー王立植物園やボツワナ大学と共にクアンド・クバンゴ州におけるフィールドワークを組織した[6]。アンゴラの南東端やクアンド川といった極東地域で350組の標本が採取され、保護地域とすることが提案されているルイアナに関しての文書化に貢献するものとなった[6]。ハンブルク出身のある研究チームの主導によるザ・フューチャー・オカヴァンゴ(TFO)というプロジェクトではアンゴラのビエ州クセケ(Cusseque)とクアンド・クバンゴ州カイウンドという研究対象地に焦点が当てられたが、両者ともさらに西方のクバンゴ集水域に含まれており、一方はナミビア(マシャレ)、もう一方はボツワナのセロンガにある[6]。このプロジェクトはアンゴラのミオンボやバイキアエア・ブルケアウッドランドに関する理解を、移動耕作による攪乱後に起こる回復という観点からさらに進めることに貢献した[87][88][89]。アンゴラ南中央部草原の木本性の種や geoxylic な亜低木のチェックリストも作成され、潜在的な新種やアンゴラ国内としては初の記録を文書化したものとなっている[90][91][92][6]。さらなる植生や生態系の研究は Oldeland et al. (2013) により発表されている[6]。
東方のクイトおよびクアナヴァレ(Cuanavale)の集水域は、2015年より継続している国家地理オカヴァンゴ原生地域プロジェクト(英: National Geographic Okavango Wilderness Project)の焦点とされてきており、2017年にクバンゴ川上流での調査が開始されている[6]。
ギャラリー
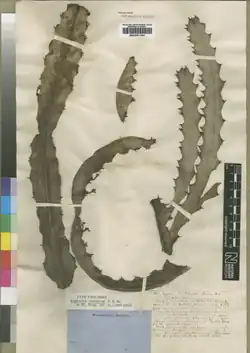 アンゴラ固有種の一つであるトウダイグサ科トウダイグサ属のエウフォルビア・カンデラブルム(Euphorbia candelabrum Welw.; シノニム: E. conspicua N.E.Br.)[93]のタイプ標本 (1855年、ヴェルヴィッチュによりルアンダ近郊にて採取; ロンドン自然史博物館所蔵)
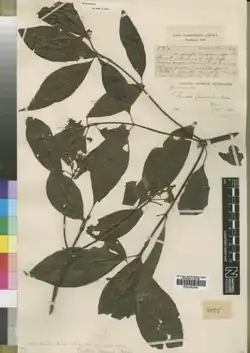 アンゴラ固有種の一つである[94]アカネ科キダチハナカンザシ属の Pavetta gossweileri Bremek.(Wikispecies) のタイプ標本 (1911年11月9日、ゴスヴァイラーによりクアンザ・ノルテ州にて採取; ロンドン自然史博物館所蔵)
脚注
注釈
- 英: phytochoria。これは複数形であり、単数形は phytochorion という。
- なお認められたエコリージョンの数が最多である国は南アフリカ共和国でその数は17種類であるが、同国のバイオームは5種類にとどまっている。
- この和名は 米倉 (2019:122) による。
- この和名は 平井, 信二 (1992). “内外樹木のいろいろ(6) インドカリン属の樹木 (その1)”. 木材工業 47 (1): 44.(NCID BB0224314X)によるが、米倉 (2019:126) ではインドシタン属とされている。
- 和名は 米倉 (2019:152) によるが、ヨツバネカズラ属という別名も併記されている。
- この属はモパーネあるいはモーパンと呼ばれる Colophospermum mopane (J.Kirk ex Benth.) J.Léonard(シノニム: Copaifera mopane J.Kirk ex Benth.)1種のみの属である。
- 和名は堀田ほか (1989:776)による。
- 和名は堀田ほか (1989:306)、米倉 (2019:158)による。
- 和名は梶田・高山 (2011:23)、瀬戸口 (2016:146)、米倉 (2019:142)による。ヤエヤマヒルギ属とも呼ばれる[38]。
- 和名は堀田ほか (1989:893)による。
- ただしここで固有とされた分類群の中には、2009年以降にアンゴラの近隣諸国で新たに記録されたものや、そもそも分類見直しにより独立性の否定されたものも存在する。その具体例に関してはアンゴラ固有の植物の一覧を参照。
- カビンダ産のものを含めればジョン・カークウッド(John Kirckwood)により1696年から1699年にかけて採取されたものも含まれる[58]。
- ただしこのうち第1回(1873年)はカビンダからコンゴを目指すというものであった。
- Figueiredo et al. (2008) を参照。
出典
- Goyder & Gonçalves (2019:84).
- Huntley & Matos (1994)
- Huntley (2019:19).
- Lawson, John & Price (1975)
- Anderson et al. (2012)
- Goyder & Gonçalves (2019:86).
- Burgess et al. (2004:19).
- Dinerstein et al. (1995:4).
- Olson et al. (2001:933).
- Huntley (2019:32–33).
- Huntley (2019:33).
- Huntley (2019:35–36).
- Burgess et al. (2004:231).
- Schulze & McGee (1978:28).
- Burgess et al. (2004:274–275).
- Burgess et al. (2004:293).
- Burgess et al. (2004:294–295).
- Huntley (1974a)
- Burgess et al. (2004:305).
- Frost (1996)
- Burgess et al. (2004:306–307).
- Burgess et al. (2004:308–309).
- Barnard (1998)
- Burgess et al. (2004:316).
- Burgess et al. (2004:318).
- Burgess et al. (2004:330).
- Huntley (1974b)
- Burgess et al. (2004:362).
- Burgess et al. (2004:364).
- Burgess et al. (2004:364–365).
- Teixeira (1968:193).
- Burgess et al. (2004:365).
- von Willert et al. (1992)
- Burgess et al. (2004:402).
- Burgess et al. (2004:408).
- Lovegrove (1993)
- Burgess et al. (2004:420).
- 堀田ほか 1989, p. 899.
- Huntley (2019:34).
- Goyder & Gonçalves (2019:79).
- Smith & Figueiredo (2017)
- Goyder & Gonçalves (2019:82).
- Goyder & Gonçalves (2019:82–83).
- Rejmánek et al. (2017)
- Goyder & Gonçalves (2019:83).
- Brenan (1978:472).
- Exell & Gonçalves (1973)
- Linder (2001)
- Figueiredo (2008:540).
- Goyder & Gonçalves (2019:88).
- Exell (1939)
- Martins (1994)
- Dandy (1958)
- Exell (1962)
- Mendonça (1962)
- Figueiredo et al. (2008:8).
- Goyder & Gonçalves (2019:80).
- Figueiredo et al. (2008:7).
- Figueiredo et al. (2008:10).
- Goyder & Gonçalves (2019:81).
- Warburg (1903)
- Figueiredo et al. (2009:185).
- Cavaco (1959)
- Goyder & Gonçalves (2019:81–82).
- Sosef et al. (2017).
- Website of RAINBIO GROUP. 2023年2月28日閲覧。
- Teixeira (1968:194).
- Huntley (1973)
- Huntley (2009)
- Mills et al. (2011)
- Huntley (2010)
- GoA (2011)
- Goyder & Gonçalves (2019:85).
- Lautenschläger & Neinhuis (2014).
- Neinhuis & Lautenschläger (2014)
- Müller (2015)
- Müller, Sollman & Lautenschläger (2018).
- Abrahamczyk et al. (2016)
- Göhre et al. (2016).
- Monizi Mawunu et al. (2016).
- Heinze et al. (2017).
- Lautenschläger et al. (2018).
- Darbyshire et al. (2014)
- Cheek, Lopez Poveda & Darbyshire (2015)
- Gonçalves & Goyder (2016).
- Hind & Goyder (2014).
- Wallenfang et al. (2015).
- Gonçalves et al. (2018)
- Gonçalves et al. (2017)
- Gonçalves, Tchamba & Goyder (2016).
- Revermann et al. (2017).
- Revermann et al. (2018)
- Figueiredo & Smith (2008:14, 71).
- Figueiredo (2008:577).
参考文献
英語
- Exell, A. W. (1939). “Notes on the flora of Angola. IV. 1. Collections from Angola in the Sloane Herbarium”. Journal of Botany 77: 146–147.
- Teixeira, J. Brito (1968) Angola. In: Hedberg, Inga & Hedberg, Olov (eds.) Conservation of vegetation in Africa south of the Sahara. Proceedings of a symposium held at the 6th plenary meeting of the “Association pour l’Etude Taxonomique de la Flore d’Afrique Tropicale” (A.E.T.F.A.T.) in Uppsala, Sept. 12th–16th, 1966. Acta Phytogeographica Suecica 54:193–197. NCID BA3845872X
- Brenan, J. P. M. (1978). “Some aspects of the phytogeography of tropical Africa”. Annals of Missouri Botanical Garden 65 (2): 437–478.
- Schulze, R. E.; McGee, O. S. (1978). “Climatic indices and classification in relation to the biogeography of southern Africa”. In Werger, M. J. A.. Biogeography and Ecology of Southern Africa. The Hague, The Netherlands: Dr. W. Junk Publishers. pp. 19–52. doi:10.1007/978-94-009-9951-0_2
- White, F. (1983). The Vegetation of Africa – A Descriptive Memoir to Accompany the UNESCO/AETFAT/UNSO Vegetation Map of Africa. Paris: UNESCO. ISBN 92-3-101955-4 356 pp
- Dinerstein, Eric; Olson, David M.; Graham, Douglas J.; Webster, Avis L.; Primm, Steven A.; Bookbinder, Marnie P.; Lebec, George (1995). A Conservation Assessment of the Ecoregions of Latin America and the Caribbean. Washington, DC: World Bank. doi:10.1596/0-8213-3295-3. ISBN 978-0-8213-3295-5
- Brummitt, R. K. (2001). World Geographical Scheme for Recording Plant Distributions (2 ed.). Pittsburgh: Hunt Institute for Botanical Documentation, Carnegie Mellon University
- Olson, David M.; Dinerstein, Eric; Wikramanayake, Eric D.; et al. (2001). “Terrestrial ecoregions of the World: a new map of life on Earth”. BioScience 51 (11): 933–938. doi:10.1641/0006-3568(2001)051[0933:TEOTWA]2.0.CO;2.
- Burgess, Neil; Hales, Jennifer D'Amico; Underwood, Emma; Dinerstein, Eric; Olson, David; Illanga, Itoua; Schipper, Jan; Ricketts, Taylor et al. (2004). Terrestrial Ecoregions of Africa and Madagascar – A Conservation Assessment. Washington DC: Island Press 499 pp - アフリカの生育地に関して近年で最も包括的な総合書であり、保全計画の基礎として広く採用されてきた上、アフリカのバイオーム、エコリージョン、生育地の研究にとって有用なものである(Huntley (2019:32))。
- Figueiredo, Estrela (2008). “The Rubiaceae of Angola”. Botanical Journal of the Linnean Society 156 (4): 537–638. doi:10.1111/j.1095-8339.2007.00750.x.
- Figueiredo, E.; Smith, G.F., eds (2008). “Plants of Angola/Plantas de Angola”. Strelitzia 22: 1–279.
- Figueiredo, E.; Matos, S.; Cardoso, J.F.; Martins, E.S. (2008). “List of collectors/Lista de colectores”. Strelitzia 22: 4–11. - Mendonça (1962) よりもさらに完全な採取者一覧であり、アンゴラの植物相研究に関連する有用な文献の一覧も含んでいる(Goyder & Gonçalves (2019:80))。
- Figueiredo, E.; Soares, M.; Seibert, G.; Smith, G.F.; Faden, R.B. (2009). “The botany of the Cunene-Zambezi Expedition with notes on Hugo Baum (1867-1950)”. Bothalia 39 (2): 185–211. doi:10.4102/abc.v39i2.244.
- Figueiredo, Estrela; Smith, Gideon F.; César, Joaquim (2009). “The flora of Angola: first record of diversity and endemism”. Taxon 58 (1): 233–236. doi:10.1002/tax.581022. JSTOR 27756837.
- Soares, Miguel; Abreu, Joana; Nunes, Helena; Silveira, Paulo; Schrire, Brian; Figueiredo, Estrela (2009). “The Leguminosae of Angola: diversity and endemism”. Systematics and Geography of Plants 77 (2): 141–212. doi:10.2307/20649738. JSTOR 20649738.
- Hind, D. J. Nicholas; Goyder, David J. (2014). “Stomatanthes tundavalaensis (Compositae: Eupatorieae: Eupatoriinae), a new species from Huíla Province, Angola, and a synopsis of the African species of Stomatanthes”. Kew Bullentin 69 ([4], 9545): 1–9. doi:10.1007/S12225-014-9545-6. JSTOR 24637584.
- Wallenfang, Johannes; Finckh, Manfred; Oldeland, Jens; Revermann, Rasmus (2015). “Impact of shifting cultivation on dense tropical woodlands in southeast Angola”. Tropical Conservation Science 8: 863–892. doi:10.1177/194008291500800402.
- Göhre, Anne; Toto-Nienguesse, Álvaro Bruno; Futuro, Macaia; Neinhuis, Christoph; Lautenschläger, Thea (2016). “Plants from disturbed savannah vegetation and their usage by Bakongo tribes in Uíge, Northern Angola”. Journal of Ethnobiology and Ethnomedicine 12: 42. doi:10.1186/s13002-016-0116-9.
- Gonçalves, Francisco Maiato Pedro; Goyder, David John (2016). “A brief botanical survey into Kumbira forest, an isolated patch of Guineo-Congolian biome”. PhytoKeys 65: 1–14. doi:10.3897/phytokeys.65.8679.
- Gonçalves, Francisco M.P.; Tchamba, José J.; Goyder, David J. (2016). “Schistostephium crataegifolium (Compositae: Anthemideae), a new generic record for Angola”. Bothalia 46 (1): a2029. doi:10.4102/abc.v46i1.2029.
- Heinze, Christin; Ditsch, Barbara; Congo, Manize Fausto; José, Inocêncio João; Neinhuis, Christoph; Lautenschlaeger, Thea (2017). “First Ethnobotanical Analysis of Useful Plants in Cuanza Norte North Angola”. Research & Reviews: Journal of Botanical Sciences 6 (2): 44.
- Revermann, Rasmus; Gonçalves, Francisco Maiato; Gomes, Amândio Luis; Finckh, Manfred (2017). “Woody species of the miombo woodlands and geoxylic grasslands of the Cusseque area, south-central Angola”. Check List 13 (1): 1–21. doi:10.15560/13.1.2030.
- Sosef, Marc S. M.; Dauby, Gilles; Blach-Overgaard, Anne; et al. (2017). “Exploring the floristic diversity of tropical Africa”. BMC Biology 15: 15. doi:10.1186/s12915-017-0356-8.
- Droissart, Vincent; Dauby, Gilles; Hardy, Olivier J.; et al. (2018). “Beyond trees: biogeographical regionalization of tropical Africa”. Journal of Biogeography 45 (5): 1153–1167. doi:10.1111/jbi.13190.
- Lautenschläger, Thea; Monizi, Mawunu; Pedro, Macuntima; Mandombe, José Lau; Bránquima, Makaya Futuro; Heinze, Christin; Neinhuis, Christoph (2018). “First large-scale ethnobotanical survey in the province Uíge, northern Angola”. Journal of Ethnobiology and Ethnomedicine 14: 51. doi:10.1186/s13002-018-0238-3.
- Müller, Frank; Sollman, Philip; Lautenschläger, Thea (2018). “A new synonym of Weissia jamaicensis (Pottiaceae, Bryophyta) and an extension of the range of the species from the Neotropics to the Palaeotropics”. Plant and Fungal Systematics 63 (1): 1–5. doi:10.2478/pfs-2018-0001.
- Huntley, Brian J. (2019). “Angola in Outline: Physiography, Climate and Patterns of Biodiversity”. In Huntley, Brian J.; Russo, Vladimir; Lages, Fernanda et al.. Biodiversity of Angola: Science & Conservation: A Modern Synthesis. Springer Nature, Cham. pp. 15–42. doi:10.1007/978-3-030-03083-4_2. ISBN 978-3-030-03082-7, ISBN 978-3-030-03083-4 - この文献は CC-BY 4.0 により提供されている。
- Goyder, David J.; Gonçalves, Francisco Maiato P. (2019). “The Flora of Angola: Collectors, Richness and Endemism”. In Huntley, Brian J.; Russo, Vladimir; Lages, Fernanda et al.. Biodiversity of Angola: Science & Conservation: A Modern Synthesis. Springer Nature, Cham. pp. 79–96. doi:10.1007/978-3-030-03083-4_5. ISBN 978-3-030-03082-7, ISBN 978-3-030-03083-4 - この文献は CC-BY 4.0 により提供されている。
ポルトガル語
- Lautenschläger, T.; Neinhuis, C., eds (2014). Riquezas Naturais de Uíge – uma breve introdução sobre o estado atual, a utilização, a ameaça e a preservação da biodiversidade. Dresden: Technische Universität Dresden. ISBN 978-3-86780-396-0
フランス語
- Monizi Mawunu; Kola Bongo; Afonso Eduardo; Makonzo M. Za Vua; Luyindula Ndiku; Pius T. Mpiana; Koto-te-Nyiwa Ngbolua (2016). “Contribution à la connaissance des produits forestiers non ligneux de la Municipalité d’Ambuila (Uíge, Angola): Les plantes sauvages comestibles [Contribution to the knowledge of no-timber forest products of Ambuila Municipality (Uíge, Angola): The wild edible plants”]. International Journal of Innovation and Scientific Research 26 (1): 190–204.
日本語
- 堀田満・緒方健・新田あや・星川清親・柳宗民・山崎耕宇『世界有用植物事典』平凡社、1989年8月25日。ISBN 4-582-11505-5。
- 梶田忠・高山浩司 著「汎熱帯海流散布種と固有種」、加藤雅啓・海老原淳 編『日本の固有植物』東海大学出版会、2011-03-20isbn=978-4-486-01897-1、22-23頁。
- 瀬戸口浩彰 著「ヒルギ科 RHIZOPHORACEAE」、大橋広好・門田裕一・木原浩・邑田仁・米倉浩司 編『改訂新版 日本の野生植物 3 バラ科~センダン科』平凡社、2016年9月20日、145-146頁。ISBN 978-4-582-53533-4。
- 米倉, 浩司『新維管束植物分類表』北隆館、2019年。ISBN 978-4-8326-1008-8。
関連文献
ドイツ語
- Warburg, O. (1903). Kunene-Sambesi-Expedition H. Baum 1903. Berlin: Kolonial-Wirtschaftliches Komitee. doi:10.5962/bhl.title.37083
ポルトガル語
- Gossweiler, J.; Mendonça, F.A. (1939). Carta Fitogeográfica de Angola. Lisboa
- Gossweiler, J. (1948). “Flora exótica de Angola. Nomes vulgares e origem das plantas cultivadas ou sub-espontâneas”. Agronomia Angolana 1: 121–198.
- Gossweiler, J. (1949). “Flora exótica de Angola. Nomes vulgares e origem das plantas cultivadas ou sub-espontâneas”. Agronomia Angolana 2: 173–255.
- Gossweiler, J. (1950). “Flora exótica de Angola. Nomes vulgares e origem das plantas cultivadas ou sub-espontâneas”. Agronomia Angolana 3: 143–167.
- Barbosa, L. A. Grandvaux (1970). Carta Fitogeográfica de Angola. Luanda: Instituto de Investigação Científica de Angola 343 pp
- Martins, E.S. (1994). “John Gossweiler. Contribuição da sua obra para o conhecimento da flora angolana”. Garcia de Orta, Série de Botânica 12: 39–68.
- GoA (Government of Angola) (2011) Plano Estratégico da Rede Nacional de Áreas de Conservação de Angola. Direcção Nacional da Biodiversidade, Ministério do Ambiente, Luanda, 35 pp
英語
- Airy Shaw, H. K. (1947). “The vegetation of Angola”. Journal of Ecology 35 (1–2): 23–48. doi:10.2307/2256498.
- Dandy, J. E. (1958). The Sloane Herbarium. An annotated list of the horti sicci composing it; with biographical accounts of the principal contributors. London: British Museum (Natural History). doi:10.5962/bhl.title.137366
- Exell, A.W. (1962). “Pre-Linnean collections in the Sloane Herbarium from Africa south of the Sahara”. In Fernandes, A.. Comptes Rendus de la IVe Réunion Plénière de l'Association pour l'Étude Taxonomique de la Flore d'Afrique Tropicale (Lisbonne et Coïmbre, 16–23 Septembre, 1960). Lisbon: Junta de Investigações do Ultramar. pp. 47–49
- Mendonça, F.A. (1962). “Botanical collectors in Angola”. In Fernandes, A.. Comptes Rendus de la IVe Réunion Plénière de l’Association pour l’Étude Taxonomique de la Flore d’Afrique Tropicale (Lisbonne et Coïmbre, 16–23 septembre, 1960). Lisbon: Junta de Investigações do Ultramar. pp. 111–121 - アンゴラで採取活動を行った人物の列伝で、初期に行われた数々の調査旅行について知る上で助けとなる(Goyder & Gonçalves (2019:80))。
- Exell, A.W.; Gonçalves, M.L. (1973). “A statistical analysis of a sample of the flora of Angola”. Garcia de Orta, Série de Botânica 1: 105–128.
- Huntley, B.J. (1973). Proposals for the creation of a strict nature reserve in the Maiombe forest of Cabinda. Report 16. Repartição Técnica da Fauna, Serviços de Veterinária, Luanda, Mimeograph report 10 pp
- Huntley, B.J. (1974a). Ecosystem conservation priorities in Angola. Report 28. Repartição Técnica da Fauna, Serviços de Veterinária, Luanda, Mimeograph report 22 pp
- Huntley, B. J. (1974b). “Outlines of wildlife conservation in Angola”. Journal of the Southern African Wildlife Management Association 4.
- Lawson, G.W.; John, D.M.; Price, J.H. (1975). “The marine algal flora of Angola: its distribution and affinities”. Botanical Journal of the Linnean Society 70 (4): 307–324. doi:10.1111/j.1095-8339.1975.tb01652.x.
- von Willert, D.J.; Eller, B.M.; Werger, M.J.A.; Brinckmann, E.; Ihlenfeldt, H.-D. (1992). Life Strategies of Succulents in Deserts. Cambridge, UK: Cambridge University Press. NCID BA20378391
- Lovegrove, B. (1993). The Living Deserts of Southern Africa. Cape Town, South Africa: Fernwood Press
- Huntley, B.J.; Matos, E.M. (1994). “Botanical diversity and its conservation in Angola”. Strelitzia 1: 53–74.
- Frost, P. (1996). “The ecology of miombo woodlands”. In Campbell, B.. The Miombo in Transition: Woodlands and Welfare in Africa. Bogor, Indonesia: Centre for International Forestry Research. pp. 11–58
- Barnard, P., ed (1998). Biological Diversity in Namibia: A Country Study. Windhoek, Namibia: Namibian National Biodiversity Task Force, Directorate of Environmental Affairs
- Linder, H. P. (2001). “Plant diversity and endemism in sub-Saharan tropical Africa”. Journal of Biogeography 28 (2): 169–182. doi:10.1046/j.1365-2699.2001.00527.x. JSTOR 2656095.
- Huntley, B.J. (2009). SANBI/ISCED/UAN Angolan biodiversity assessment capacity building project. Report on Pilot Project. Unpublished Report to Ministry of Environment, Luanda 全97ページ、27図版付き
- Huntley, B.J. (2010). Estratégia de Expansão de Rede da Áreas Protegidas da Angola/Proposals for an Angolan Protected Area Expansion Strategy (APAES). Unpublished Report to the Ministry of Environment, Luanda 全28 ページ、地図付き
- Mills, Michael S. L.; Olmos, F.; Melo, Martim; Dean, W. Richard J. (2011). “Mount Moco: its importance to the conservation of Swierstra’s Francolin Pternistis swierstrai and the Afromontane avifauna of Angola”. Bird Conservation International 21 (2): 119–133. doi:10.1017/S0959270910000493.
- Anderson, R.J.; Bolton, J.J.; Smit, A.J.; da Silva Neto, D. (2012). “The seaweeds of Angola: the transition between tropical and temperate marine floras on the west coast of southern Africa”. African Journal of Marine Science 34 (1): 1–13. doi:10.2989/1814232X.2012.673267.
- Oldeland, J.; Erb, C.; Finckh, M. et al., eds (2013). “Environmental assessments in the Okavango region”. Biodiversity & Ecology 5: 1–418. doi:10.7809/b-e.vol_05.
- Darbyshire, I.; Goyder, D.; Crawford, F.; et al. (2014). Update to the Report on the Rapid Botanical Survey of the Lagoa Carumbo Region, Lunda-Norte Prov., Angola for the Angolan Ministry of the Environment, following further field studies in 2013, incl. Appendix 2: checklist to the flowering plants, gymnosperms and pteridophytes of Lunda-Norte Prov, Angola. Luanda: Ministério do Ambiente
- Neinhuis, C.; Lautenschläger, T. (2014). The potentially natural vegetation in Uíge province and its current status – arguments for a protected area in the Serra do Pingano and adjacent areas. Unpublished Report to Ministry of Environment, Luanda 64 pp
- Cheek, Martin; Lopez Poveda, Lucia; Darbyshire, Iain (2015). “Ledermanniella lunda sp. nov. (Podostemaceae) of Lunda-Norte, Angola”. Kew Bulletin 70 ([1], 9559): 1–5. doi:10.1007/S12225-015-9559-8. JSTOR 24637623.
- Müller, Frank (2015). “About 150 years after Welwitsch – a first more extensive list of new bryophyte records for Angola”. Nova Hedwigia 100 (3–4): 487–505. doi:10.1127/nova_hedwigia/2014/0239.
- Abrahamczyk, Stefan; Janssens, Steven; Xixima, Lázaro; Ditsch, Barbara; Fischer, Eberhard (2016). “Impatiens pinganoensis (Balsaminaceae), a new species from Angola”. Phytotaxa 261 (3): 240–250. doi:10.11646/phytotaxa.261.3.3.
- Gonçalves, Francisco M. P.; Revermann, Rasmus; Gomes, Amândio L.; Aidar, Marcos P. M.; Finckh, Manfred; Jurgens, Norbert (2017). “Tree species diversity and composition of Miombo woodlands in south-central Angola, a chronosequence of forest recovery after shifting cultivation”. International Journal of Forest Research 2017 (Article ID 6202093). doi:10.1155/2017/6202093. 13 pp
- Rejmánek, Marcel; Huntley, Brian J.; Le Roux, Johannes J.; Richardson, David M. (2017). “A rapid survey of the invasive plant species in western Angola”. African Journal of Ecology 55 (1): 56–69. doi:10.1111/aje.12315.
- Smith, Gideon F.; Figueiredo, Estrela (2017). “Determining the residence status of widespread plant species: studies in the flora of Angola”. African Journal of Ecology 55: 710–713. doi:10.1111/aje.12368.
- Gonçalves, Francisco M.P.; Revermann, Rasmus; Cachissapa, Manuel J.; Gomes, Amândio L.; Aidar, Marcos P. M. (2018). “Species diversity, population structure and regeneration of woody species in fallows and mature stands of tropical woodlands of SE Angola”. Journal of Forestry Research 29: 1569–1579. doi:10.1007/s11676-018-0593-x. 2018年1月13日にインターネット公開。
- Revermann, Rasmus; Oldenland, Jens; Gonçalves, Francisco Maiato; Luther-Mosenbach, Jona; Gomes, Amândio Luis; Jürgens, Norbert; Finckh, Manfred (2018). “Dry tropical forests and woodlands of the Cubango basin in southern Africa – First classification and assessment of their woody species diversity”. Phytocoenologia 48 (1): 23–50. doi:10.1127/phyto/2017/0154.
フランス語
- Cavaco, A. (1959). Contribution à l'Étude de la Flore de la Lunda d'Après les Récoltes de Gossweiler (1946–1948). Publicações Culturais da Companhia de Diamantes de Angola. 42 230 pp
関連項目
- アンゴラ固有の植物の一覧
- ルエンゲ・ルイアナ国立公園