エオティラヌス
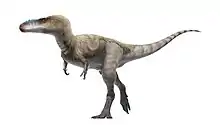
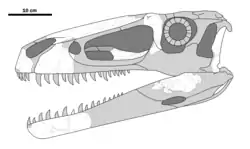
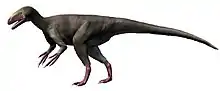
エオティラヌス(学名:Eotyrannus)は、ティラノサウルス上科に属する絶滅した獣脚類の恐竜の属。白亜紀前期にあたるイギリスのワイト島の南西の海岸に位置する Wealden 層群 Wessex 層から化石が発見されている。植物の堆積した粘土単層から発見された幼体から亜成体までの標本 MIWG1997.550 は様々な頭骨・椎骨・付属肢から構成されており、2001年にハットらが記載した[1]。属名は本属が初期のティラノサウルス上科に分類されることあるいは「暴君トカゲ」に由来し、種小名は化石の発見者を称えたものである。
| エオティラヌス | ||||||||||||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
 エオティラヌスの発見された化石 | ||||||||||||||||||||||||||||||||||||||||||||||||
| 地質時代 | ||||||||||||||||||||||||||||||||||||||||||||||||
| 白亜紀前期オーテリビアン | ||||||||||||||||||||||||||||||||||||||||||||||||
| 分類 | ||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||
| 学名 | ||||||||||||||||||||||||||||||||||||||||||||||||
| Eotyrannus Hutt et al., 2001 | ||||||||||||||||||||||||||||||||||||||||||||||||
| 種 | ||||||||||||||||||||||||||||||||||||||||||||||||
|
形態
ホロタイプ標本に存在する数多くの特徴はエオティラヌス属特有のものとされた。歯骨の吻側の端は最も近心の歯槽が存在する窪みを持ち、窪みの吻側内側の縁には背側へ向いた突起が存在する。歯骨の側面には湾曲した横方向の筋が走る。上角骨の吻側背側の縁の近くには肥大した溝状の窪みが存在し、窪みの後端では上角骨に孔が貫通している。尾側背側に位置する窪んだ部位には上角骨の低い筋突起が存在する。尺骨と橈骨の軸中央の断面は涙滴形をなす。
ホロタイプ標本は化石化する前に繋がりが断たれ、数多くの骨が飛散した。一切の脊柱が繋がって保存されておらず、脊椎は分断された椎体と神経棘から構成され、1個体であることが推測されている。
骨格の保存状態が悪いため、数多くの破片の同定が困難な状況にある。未同定胴体部の骨は多く、脛骨の遠位部であると考えられていた尺骨も存在する。この骨が適切に同定される以前には、エオティラヌスはより長い脛骨を持つと考えられており、エオティラヌスの初期の復元に影響を及ぼした。
2001年のハットによる診断でエオティラヌス特有の形質とされた特徴には、実際にはティラノサウルス上科に広く共通する形質であることが判明したものもある。例を挙げると、前上顎骨のD字型断面の歯にある鋸歯状構造はエオティラヌス・レンギ特有の形質からは程遠く、前眼窩窓の卓越した隆起や水平方向に平坦化した上顎骨なども本属特有のものではなかった[2]。
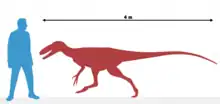
エオティラヌスのホロタイプは全長4メートルほどと推定されている。
発見と命名
ホロタイプ標本が発見された正確な場所は、その重要性と海岸線の後退により新たな化石が産出する可能性により明らかになっていない。記載論文での言及によると、ワイト島の南西部の海岸で1995年に Atherfield Point と Hanover Point の間で標本が発見され、地元の化石収集家ギャビン・レングが海岸で発見した鉤爪を Sandown のワイト島の地質博物館に勤務するスティーブ・ハットの下へ持参した。ギャビン・レングは鉤爪を発見した場所を公開し、その後数週間にわたって慎重な調査が進められ、化石が硬い母岩から取り出された。ポーツマス大学の科学者とロンドン自然史博物館からの助手が、数年をかけて注意深く標本を調査した[3]。
2000年にギャビン・レングの名誉にちなんでエオティラヌスが命名され、ハットらは2001年に手短に化石を記載した。2018年7月には、最初の記載に協力したハットの研究仲間であるダレン・ナイシュが、エオティラヌスの学術論文を公開するために GoFundMe fundraiser を作り、その目的が達成された。現在はオープンアクセスで閲覧可能である。
2021年にはダイナソー・アイルと福井県立恐竜博物館が共同で頭骨を立体的に復元した。立体復元頭骨は福井県立恐竜博物館で世界初公開された[4]。
系統発生
エオティラヌスの発見は、初期のティラノサウルス上科が長い四肢と3本の手の指を有した華奢な動物であることと、そしてその中ではエオティラヌスは幾分大型であることから、ティラノサウルス上科が初期の進化で大型化したかエオティラヌスが独自に大型化したことを裏付けている[5]。また、発見地がヨーロッパであったことにより、北アメリカのストケソサウルスやヨーロッパのアヴィアティラニスとともにティラノサウルス上科のアジア起源説に一石が投じられた[6]。
以下は、大半のティラノサウルス上科の系統関係を示した Loewen による2013年のクラドグラム[6]。
| ティラノサウルス上科 |
| |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||
2014年には、メガラプトルに近縁なメガラプトル類にエオティラヌスを分類する研究が発表された[7]。
| メガラプトル類 |
| |||||||||||||||||||||
しかしメガラプトル科の分類は依然として混迷を極めており、現状ではカルノサウルス類かティラノサウルス上科(もしくは、それを内包するコエルロサウルス類)の何処に位置するのかは不明である。
2016年にはブルサッテとトーマスが共同でティラノサウルス上科全体の系統解析を行った。それによると、やはり E. lengi はティラノサウルス上科(特に後のパンティラノサウリア)に含まれ、ティラノサウルス上科内において進化の中間段階にある種だとされた[8]。こうした中間段階にはティムルレンギアやススキティラヌスが挙げられる。
古生態学
食性
エオティラヌスは周辺に生息した様々な小型から中型動物を獲物とする肉食動物だった[9]。前者の例としては哺乳類のスパラコテリウム科(例ヤヴェルレステス)やエオバアタル科(例エオバアタル)が狙われた可能性があり、後者の例としては鳥脚類のヒプシロフォドンやコンプソグナトゥス科のアリストスクスが狙われた可能性がある[10]。加えて周辺の大型恐竜(例マンテリサウルス)の幼体も狙われていたとされる[11]。また獣脚類の多くで確認されているように、本種も共食いを行っていた可能性がある[注 1]。
他種との競争
多くの肉食動物がそうであるように、本種も共存した大小様々な肉食動物と競合していたと考えられている。こうした競争は生態系が程々に豊かで、尚かつ捕食者同士の食性や体格が似通っている場合に発生しやすい[12]。本種の上位には大型獣脚類のネオヴェナトルやバリオニクスが位置しており、とりわけネオヴェナトルは地上性の捕食者だったため、本種にとっては大きな脅威だったと考えられている。こうした相手には長い脚を活かした俊足で危険を回避していた[10]。上記2属のような大型獣脚類の存在により、本種は生態系において二次捕食者のニッチを占めていたと考えられている[13][注 2]。
上位からの圧がある一方で、近いニッチの種とは獲物や棲家を巡って争う関係にあった。競争相手には小型獣脚類のコンプソグナトゥス科(例アリストスクス)が挙げられる[14]。そうした競合の結果、本種は比較的大きな体格や頑丈な頭部を発達させていた。これは両者の食性に違いがあった事を示唆しており、こうした食べ分けは現在のネコ科でも確認されている[15]。
一方で身体の大きさや頭部の強度を元に考えると[注 3]、本種はアリストススクスのような2-3メートル大の捕食者よりも上位に位置していた可能性がある[10]。コエルロサウルス類では似たような例として、大型のシノカリオプテリクスと小型のシノルニトサウルスが捕食-被食関係にあった事が確認されている。
古環境
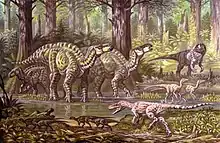
エオティラヌスが発見された Wessex 層は、現在の地中海と同様に温暖で蒸し暑い環境だったと考えられている。しかしながら、エオティラヌスが生息していたバレミアン後期からアプチアン前期にかけて乾季が増加していた証拠が確認されている。Wessex 盆地においては堆積学的証拠である泥のひび割れといった化石が発見され、この地域が短い雨季を伴う年間平均気温20 - 25℃という温暖な古気候にあったことが示されている。ワトソンとアルヴィンによる1996年の論文ならびにアレンによる1998年の論文では、Wessex 層の植物相が耐火性と耐乾性を示し、顕著な乾季を伴う季節性の気候に適応していたとされている。なお、雨季が存在した根拠は、植物の堆積層から得られる植物のサンプルに腐敗した菌が高頻度で確認されることである[16]。
Wessex 層には幅広い動物相が見られ、カルカロドントサウルス科のネオヴェナトルやコンプソグナトゥス科のアリストスクス、基盤的新鳥盤類のヒプシロフォドンとマンテリサウルスならびにヴァルドサウルス、竜脚類のオルニトプシスやエウカメロトゥスおよびイウティコサウルス、曲竜類のポラカントゥスなどがいた。エオティラヌスが捕食していたとされる哺乳類も数多く共存しており、スパラコテリウム科のヤヴェルレステスやエオバアタル科のエオバアタルがいた。
脚注
出典
- Hutt, S.; Naish, D.; Martill, D.M.; Barker, M.J.; Newbery, P. (2001). “A preliminary account of a new tyrannosauroid theropod from the Wessex Formation (Cretaceous) of southern England”. Cretaceous Research 22: 227–242. doi:10.1006/cres.2001.0252.
- Naish, D., 2006. The Osteology and Affinities of Eotyrannus lengi and Other Lower Cretaceous Theropod Dinosaurs From England. Unpublished Ph.D. Thesis, University of Portsmouth.
- “Eotyrannus lengi”. ダイナソー・アイル. 2020年4月26日閲覧。
- 「復元頭骨を世界初公開 英国“恐竜の島”で発掘されたティラノサウルス類「エオティラヌス」 福井県立恐竜博物館「海竜展」」『福井新聞』、2021年7月13日。2021年7月17日閲覧。
- Holtz, T. R. Jr. (1994). “The phylogenetic position of the Tyrannosauridae: implications for theropod systematics”. Journal of Paleontology 68: 1100–1117.
- Loewen, M.A.; Irmis, R.B.; Sertich, J.J.W.; Currie, P. J.; Sampson, S. D. (2013). Evans, David C. ed. “Tyrant Dinosaur Evolution Tracks the Rise and Fall of Late Cretaceous Oceans”. PLoS ONE 8 (11): e79420. doi:10.1371/journal.pone.0079420. PMC 3819173. PMID 24223179.
- Juan D. Porfiri; Fernando E. Novas; Jorge O. Calvo; Federico L. Agnolín; Martín D. Ezcurra; Ignacio A. Cerda (2014). “Juvenile specimen of Megaraptor (Dinosauria, Theropoda) sheds light about tyrannosauroid radiation”. Cretaceous Research 51: 35–55. doi:10.1016/j.cretres.2014.04.007.
- Stephen L. Brusatte; Thomas D. Carr (2016-02-02). “The phylogeny and evolutionary history of tyrannosauroid dinosaurs”. Scientific Reports 6 (20252). doi:10.1038/srep20252.
- スティーブ・ブルサッテ 著、黒川耕大、 訳『恐竜の世界史』土屋健(監修)、みすず書房、2019年8月19日。ISBN 978-4622088240。暴君恐竜の章
- トーマス・R・ホルツ、ルイス・V・レイ『ホルツ博士の最新恐竜辞典』小畠郁生(監訳)、朝倉書店、2010年2月15日。ISBN 978-4-254-16263-9。17章ティラノサウルス類の項
- ダレン・ナイシュ、ポール・バレット 著、吉田三知世 訳『恐竜の教科書』小林快次・久保田克博・千葉謙太郎・田中康平(監訳)、創元社、2019年2月20日、137頁。
- Extermination of red foxes and raccoon dogs by lynxes and wolves in forested terrains, and the peculiarities of local populations of these medium-sized carnivores https://sidorovich.blog/2020/02/13/extermination-of-red-foxes-and-raccoon-dogs-by-lynxes-and-wolves-in-forested-terrains-and-the-peculiarities-of-local-populations-of-these-medium-sized-carnivores/amp/?__twitter_impression=true
- Thomas R. Holtz Jr (2006年2月8日). “A Jurassic tyrant is crowned”. Nature. 2020年4月26日閲覧。
- トーマス・R・ホルツ、ルイス・V・レイ 著、小畠郁生 訳『ホルツ博士の最新恐竜辞典』朝倉書店、2010年2月15日。ISBN 978-4-254-16263-9。16章コエルロサウルス類、17章ティラノサウルス類
- Cat Fight https://www.saevus.in/cat-fight/
- Sweetman, Steven; N. Insole, Allan (2010title=The plant debris beds of the Early Cretaceous (Barremian) Wessex Formation of the Isle of Wight, southern England: Their genesis and palaeontological significance). Palaeogeography, Palaeoclimatology, Palaeoecology 292: 409-424. doi:10.1016/j.palaeo.2010.03.055.
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||