バガラアタン
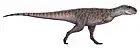
バガラアタン(学名:Bagaraatan、「小さな猛獣」の意)[2]またはバガラータン[3]は、モンゴル国で化石が産出した、後期白亜紀に生息したコエルロサウルス類に属する獣脚類の恐竜の属[2]。未成熟個体に由来する部分的な骨格が発見されており、華奢な構造の体を持ち、尾が堅かったことが解剖学的特徴として挙げられる[3]。未成熟個体は全長3メートルから3.5メートルと推定され[4]、成体の体サイズは不明[3]。産出層準は上部白亜系のネメグト層であり、季節的な降雨の発生する湿潤な森林地帯に生息していたとされる[3]。
| バガラアタン | |||||||||||||||||||||||||||||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
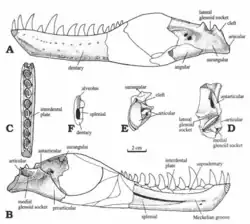 バガラアタンの下顎 | |||||||||||||||||||||||||||||||||||||||||||||||||||
| 地質時代 | |||||||||||||||||||||||||||||||||||||||||||||||||||
| 後期白亜紀前期マーストリヒチアン期[1] | |||||||||||||||||||||||||||||||||||||||||||||||||||
| 分類 | |||||||||||||||||||||||||||||||||||||||||||||||||||
| |||||||||||||||||||||||||||||||||||||||||||||||||||
| 学名 | |||||||||||||||||||||||||||||||||||||||||||||||||||
| Bagaraatan Osmolska, 1996 | |||||||||||||||||||||||||||||||||||||||||||||||||||
| 種 | |||||||||||||||||||||||||||||||||||||||||||||||||||
|
本属はタイプ種バガラアタン・オストロミ(学名:Bagaraatan ostromi)が知られる[2]。タイプ標本であるZPAL MgD-I/108はBrusatte and Carr (2016)でキメラ標本の可能性が指摘され[5]、その後Słowiak et al. (2024)でカエナグナトゥス科の個体の骨とティラノサウルス科の個体の骨が混在していることが報告された[4]。ティラノサウルス科に由来する部位は、2024年時点で最も小型のティラノサウルス科の幼体標本群の1つとされている[4]。
発見と命名
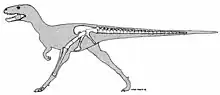
バガラアタンの化石は、1970年に実施されたポーランドとモンゴル人民共和国との合同古生物学調査において発見された[6]。ポーランドとモンゴルの合同調査は1963年から1965年にかけて行われており、バガラアタンが発見された1970年の調査は休止期間を挟んで復活したものであった[7]。Osmolska (1996)によると、バガラアタンは未定種も含めてモンゴルから発見された12番目の獣脚類である[6]。
発見地はネメグト地域であり、産出層準は当該地域に分布するネメグト層の砂岩層である[6]。回収された化石は不完全な左の下顎骨、近位の25個の尾椎、断片的な骨盤、足の大部分を欠く左後肢から構成されており、不完全ではあるもののOsmolska (1996)時点で新属新種の設立に十分な標徴形質を確認できるものであった[6]。ただし、左後肢はSłowiak et al. (2024)でカエナグナトゥス科の個体に由来するものとして同定されており、2024年時点ではティラノサウルス類の個体の要素として認められていない[4]。
タイプ種バガラアタン・オストロミ(Bagaraatan ostromi)は、タイプ標本ZPAL MgD-I/108に基づいてOsmolska (1996)により命名された[6]。属名はモンゴル語で「小さな」を意味するбагаと「猛獣」を意味するараатанに由来し、全体で「小さなハンター」のような意味合いになる[2]。種小名は古生物学者のジョン・オストロムへの献名である[2]。
特徴
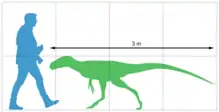
バガラアタンは推定全長3メートルから3.5メートルに達する小型の標本が知られている[4]。この標本は主にティラノサウルス科の幼体から構成されるものであり、同科の幼体の中では最小級の個体であるとされる[4]。
Osmolska (1996)時点でのバガラアタンの記相は、2個の上角孔・傾斜した後側面・短い後関節突起を伴う下顎骨、空洞で薄壁性の椎体を伴う尾椎、16個以上の近位尾椎の椎体に存在する頑強なhyposphene - hypantrum関節、外側面上に稜を伴う近位尾椎の前関節突起、2個の深い窩と1個の稜状の突起を後寛骨臼突起の外側面に持つ腸骨、小転子の下に前側稜を持つ大腿骨、遠位で互いに癒合した脛骨と腓骨、および癒合した距骨と踵骨とされる[6]。Holtz (2004)はこのうち2個の上角孔と強固なhyposphene - hypantrum関節を固有派生形質として挙げ、また距骨と踵骨の癒合を鳥類やケラトサウルス類との共通点として挙げている[1]。
Słowiak et al. (2024)はバガラアタンの標本の再評価を行い、2個の上角骨と腸骨外側の稜が標徴形質の可能性があるとした[4]。しかし、これらの形質状態は個体成長段階や種内差を反映する可能性もあり、一概に分類群を解剖学的に特徴づける形質とは判断できないともされている[4]。Słowiak et al. (2024)は本標本をティラノサウルス科に分類する8つの根拠を列挙しており、それは顎の先端部に突出部が存在すること、歯骨の前側-腹側の移行部が第4歯槽の下部に存在すること、背腹方向に低いメッケル溝が歯骨の内側に深く刻まれていること、関節骨の後関節突起が極端に矮小化していること、上角骨のshelfが発達すること、恥骨の前縁が凸であること、頸椎にhypapophysisが存在すること、posterior centrodiapophyseal laminaeが厚いことである[4]。
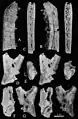 バガラアタンの下顎
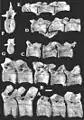 バガラアタンの尾椎
分類
Osmolska (1996)の原記載において、バガラアタンはモザイク状の形質状態を示し、他の獣脚類との類縁関係を断定できないものであるとされた[6]。例えば、下顎の構造や後肢の細さはドロマエオサウルス科と共通する一方、骨盤の恥骨が前方を向くこと[注 1]や、尾椎の前関節突起が短いこと、尾椎が一まとまりに骨化していないことは既知のドロマエオサウルス科との相違点とされた[6]。また下顎の先端部の頑強性や2か所のglenoid processはティラノサウルス科と共通する一方、大腿骨の小転子と大転子が癒合していることや近位の後側転子が発達することはティラノサウルス科と対照的であるとも指摘された[6]。またこれらの転子の特徴に加え、大腿骨遠位部で脛腓骨稜の基部には深い溝が存在し、頭側の顆間溝が存在しない点は、"Iren Nor avimimid"とされたトロオドン類との共通点であった[4][9]。Osmolska (1996)時点では、バガラアタンはアヴェテロポーダ類との共通点を示すテタヌラ類として暫定的に同定された[6]。
その後、バガラアタンの分類学的位置付けには議論があった[4]。Csiki and Grigorescu (1998)は、ハツェグ島のエロプテリクスとブラディクネメに言及し、バガラアタンがこれらの分類群と共に鳥類に近縁な小型獣脚類の新たな分岐群を形成する可能性を指摘した[9]。その後はRauhut and Xu (2005)のシンジャンゴベナトルの記載に際してバガラアタンが派生的獣脚類に属する可能性が指摘された一方[4]、Holtz (2004)ではバガラアタンがドリプトサウルスやエオティラヌスおよびストケソサウルスと共に非ティラノサウルス科型ティラノサウルス上科の属として取り扱われた[1]。バガラアタンと当時において既知であったティラノサウルス科の属との間では、上角骨の外側への発達や、後関節突起が縮小してかつ幅広になっていること、恥骨のischial peduncleに突縁が存在することが共通点として挙げられている[1]。『グレゴリー・ポール恐竜事典 原著第2版』においてもバガラアタンはティラノサウルス上科に置かれている[3]。
Barusatte and Carr (2016)は、スティーヴン・ブルサッテの博士論文を典拠として、バガラアタンの標本がキメラ標本である可能性を指摘してティラノサウルス上科の系統解析から除外した[5]。Słowiak et al. (2024)はZPAL MgD-I/108の観察を実施し、大腿骨、脛足根骨、1本の趾骨、および未記載の部位の大部分が実際には未同定のカエナグナトゥス科のものであることを明らかにした[4]。同時に下顎骨、頚椎、骨盤、尾椎、別の1本の趾骨はティラノサウルス科との共通点が認められ、また系統解析からも支持された[4]。
以下はSłowiak et al. (2024)に基づいてバガラアタンと他のティラノサウルス上科の類縁関係を示すクラドグラム。バガラアタンを含むティラノサウルス科は多分岐をなしている[4]。
| |||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||||



古環境
バガラアタンの生息した環境は森林地帯であり、季節性の降雨を伴い、また冬季は寒冷であったとされる[3]。バガラアタンのタイプ標本が産出したネメグト層は後期白亜紀のカンパニアン期後期からマーストリヒチアン期にかけて堆積したとされ、蛇行河川やその周辺環境に起源を持つと考えられる堆積物で形成されている[10]。ネメグト層の動物相としては、バガラアタンと同じくティラノサウルス科に属するタルボサウルスのほか、鳥脚類のサウロロフスや竜脚類のオピストコエリカウディアなどが知られている[10]。
脚注
注釈
- ただし、1999年に記載されたドロマエオサウルス科のアキロバトルは恥骨が前側に向く固有派生形質が知られている[8]。
出典
- Holtz, T. R. (2004). Tyrannosauroidea. The dinosauria, 111-136.
- 松田眞由美『語源が分かる恐竜学名辞典』小林快次、藤原慎一 監修、北隆館、2017年1月20日、183頁。ISBN 978-4-8326-0734-7。
- グレゴリー・ポール 著、東洋一、今井拓哉、河部壮一郎、柴田正輝、関谷透、服部創紀 訳『グレゴリー・ポール恐竜事典 原著第2版』共立出版、2020年8月30日、115頁。ISBN 978-4-320-04738-9。
- Słowiak, Justyna; Brusatte, Stephen L; Szczygielski, Tomasz (2024-02-16). “Reassessment of the enigmatic Late Cretaceous theropod dinosaur, Bagaraatan ostromi” (英語). Zoological Journal of the Linnean Society. doi:10.1093/zoolinnean/zlad169. ISSN 0024-4082.
- Brusatte, S. L., & Carr, T. D. (2016). The phylogeny and evolutionary history of tyrannosauroid dinosaurs. Scientific Reports, 6(1), 20252.
- Osmolska, H. (1996). "An unusual theropod dinosaur from the Late Cretaceous Nemegt Formation of Mongolia". Acta Palaeontologica Polonica 41; 1-38
- 冨田幸光 著「第3章 アンドリュースに続け、世界の恐竜ハンター」、日本経済新聞社、日経サイエンス 編『特別展 化石ハンター展 ゴビ砂漠の恐竜とヒマラヤの超大型獣』木村由莉 総合監修、日本経済新聞社、BSテレビ東京、2022年、47頁。
- Turner, A. H., Makovicky, P. J., & Norell, M. A. (2012). A review of dromaeosaurid systematics and paravian phylogeny. Bulletin of the American museum of natural history, 2012(371), 1-206.
- CSIKI, Z., & GRIGORESCU, D. (1998). SMALL THEROPODS FROM THE LATE CRETACEOUS OF THE HATEG BASIN OryESTERN ROMANIA). AN UNEXPECTED DIVERSITY AT THE TOP OF THE FOOD CHAIN.
- 国立科学博物館、読売新聞社 編「CHAPTER 4 待ち伏せの崖 ブギンツァフ」『大恐竜展 - ゴビ砂漠の驚異』坂田智佐子 編集協力、読売新聞社、2013年、79頁。
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||||||||||||||